محمد بهمن بیگی
غروب غم انگیز مدیر کل افسانه ونامدارترین مرد قشقایی در دوران معاصر
ماهم به یاد رفتن آن عزیز که منبع علم ودانش بود و عشق و تفکر را رابه عشایر عطاء کرد به ماتم می نشینیم
واینک قشقایی یکی دیگر از بزرگان علم و معرفت خویش را ازدست میدهد

غروب غم انگیز مدیر کل افسانه ونامدارترین مرد قشقایی در دوران معاصر
ماهم به یاد رفتن آن عزیز که منبع علم ودانش بود و عشق و تفکر را رابه عشایر عطاء کرد به ماتم می نشینیم
واینک قشقایی یکی دیگر از بزرگان علم و معرفت خویش را ازدست میدهد

مقدمه
آبیاری به معنی پخش آب روی زمین جهت نفوذ در خاک برای استفاده گیاه و تولید محصول میباشد. آبیاری و مدیریت آب در مزرعه در عین سادگی هنوز هم از پیچیدهترین و به عبارتی از مشکلترین عملیات کشاورزی به شمار میرود. بسیاری از متخصصان کشاورزی آبیاری را یک هنر میدانند تا علم ، و برخی آن را یک فن قلمداد میکنند.
مزایای آبیاری بارانی
· امکان استفاده در زمنیهای پر شیب.
· توزیع یکنواخت آب آبیاری در تمام نقاط مزرعه.
· کمک به رشد بهتر گیاهان با لطیف کردن محیط اطراف گیاهان.
معایب آبیاری بارانی
· سموم آفت کش و قارچ کش را از روی برگها میشوید.
· تاثیر نامطلوب باد در توزیع یکنواخت آب در این نوع از روشهای آبیاری.
· هزینه سرمایه گذاری اولیه نسبتا زیاد.
انواع روشهای آبیاری بارانی
یکی از روشهای آبیاری است که آب را توسط آب پاشها به صورت قطرات ریز باران در آورده و در سطح زمین پخش مینمایند و رطوبت مورد نیاز گیاه تامین میشود. روشهای آبیاری بارانی بر اساس نوع حرکت بال آبیاری به چهار دسته تقسیم میشوند: سیستمهای آبیاری بارانی ثابت ، سیتمهای بارانی نیمه ثابت ، آبیاری بارانی با جابجایی متناوب ، آبیاری بارانی با جابجایی مداوم.
آبیاری بارانی ثابت
در این روش ، به تعداد کافی بال آبیاری و آبپاش وجود دارد بطوریکه احتیاجی به جابجایی بالهای آبیاری و آبپاشها در طول فصل زراعی نمیباشد. در سیستمهای ثابت ممکن است بالهای آبیاری به صورت ثابت در زیر زمین کار گذاشته شود یا این بالها در ابتدای فصل رشد روی زمین چیده شود و در انتهای فصل رشد جمع شوند.
آبیاری بارانی نیمه ثابت
در این روش ، بالهای آبیاری زیرزمین قرار میگیرند و پس از هر آبیاری فقط آبپاشها برروی بال آبیاری جابجا میشوند. این کار توسط شیرهای خودکاری که روی بالهای آبیاری نصب شده صورت میگیرد.
آبیاری بارانی با جابجایی متناوب
در این روش ، بال آبیاری در حالیکه آب پاشها روی بال آبیاری ثابت میباشند، پس از انجام هر آبیاری جابجا شده و به محل اسقرار بعدی منتقل میشوند. پس از هر آبیاری ، بال آبیاری از لوله اصلی جدا شده و به محل بعدی منتقل میشود. براساس روش انتقال بال آبیاری سیستمهای آبیاری بارانی با جابجایی متناوب به سه دسته تقسیم میشوند.
سیستم آبیاری بارانی جابجایی با دست
در این روش ، لولههای اصلی در طول فصل آبیاری ثابت بوده ولی بالهای آبیاری پس از هر آبیاری به همراه آب پاشهای نصب شده روی آنها توسط دست جابجا میشوند.
سیستم آبیاری بارانی قطرهای کوچک
در این روش ، بال آبیاری شامل لولههایی است که به دور قرقرهای پیچیده شده و در فواصل معینی روی لوله اصلی نصب میشود. در انتهای هر یک از لولهها ، آبپاشها توسط ارابه کوچک وصل شدهاند، این آبپاشها در ابتدای آبیاری به انتهای زمین کشیده میشوند بطوریکه در این زمان قرقره کاملا باز شده است.
آبیاری بارانی آبفشان غلتان
این نوع سیستم شبیه سیستم آبیاری بارانی جابجایی با دست است با این تفاوت که مجموعه یک بال آبیاری روی چرخهای فلزی سوار شده و کل این مجموعه دارای یک موتور بنزینی است.
سیستم آبیاری بارانی با جابجایی مداوم
در این روش بال آبیاری در موقع عمل آبیاری دارای یک حرکت مداوم و پیوسته است. این سیستم آبیاری شامل سه دسته سیستم آبیاری بارانی آبفشان دوار ، آبفشان خطی و آبفشان قرقرهای است.
سیستم آبیاری بارانی آبفشان دوار
در این روش ، بال آبیاری شامل یک سازه بزرگ فلزی است که توسط برجکهایی در ارتفاع بلندتر از گیاه قرار گرفته و حول نقطه مرکزی که در همان نقطه اتصال بال به لوله اصلی است دوران میکند. با توجه به نوع حرکت دورانی بال آبیاری ، آبیاری مزارع به صورت دایرهای شکل صورت میگیرد.
سیستم آبیاری بارانی آبفشان خطی
از لحاظ شکل ظاهری شبیه سیستم آبیاری بارانی آبفشان دوار است با این تفاوت که در این روش ، خط لوله اصلی در کنار زمین قرار گرفته و بال آبیاری در کنار آن حرکت رفت و برگشتی دارد.
سیستم آبیاری بارانی آبفشان قرقرهای
در این روش بال آبیاری شامل یک لوله است که از یک طرف به دور یک قرقره بزرگ پیچیده شده و از طرف دیگر به ارابه بزرگی که آبپاش روی آن قرار گرفته متصل میشود. برای شروع آبیاری ، معمولا قرقره و ارابه را به کنار زمین و جایی که شیر آب از لوله اصلی وجود دارد منتقل کرده و پس از اتصال قرقره به شیر آب ، ارابه را توسط تراکتور کشیده و به انتهای زمین انتقال میدهند.
در این حالت لوله از دور قرقره باز میشود. با برقرار شدن جریان لوله توسط موتور ، شیلنگ به دور قرقره جمع میشود و ارابه را به طرف قرقره میکشد با حرکت ارابه از انتهای زمین به طرف قرقره ، آبیاری یک نوار کامل از عرض زمین انجام میگیرد.
آبیاری بارانی : روش آبیاری بارانی (Sprinkler irrigation) که آب به زمین پاشیده می شود برای بسیاری از گیاهان و در تمام وضعیت خاک از نظر بافت، پستی و شیب قابل استفاده است. مقدار آب مصرفی در این روش قابل کنترل و اندازه گیری است و تلفات آب در آن پائین است. در این روش احتیاج به تسطیح و آرایش زمین نیست و در اراضی مواج و یا شیب دار و یا مسطح قابل اجرا است در ضمن بعلت حذف شدن انهار و جویچه ها، تمام مزرعه کشت می شود در آبیاری بارانی می توان کودهای محلول و یا بعضی مواد ضد عفونی کننده راهمراه آب آبیاری روی گیاه و یا خاک پاشید، با شستشوی سطح برگها، عمل فتوسنتز و تنفس گیاه نیز بهتر صورت می گیرد. با استفاده از آبیاری بارانی ضمن صرفه جوئی در مصرف آب تا حدد 50 درصد نسبت به آبیاری سطحی، شستشو و فرسایش در خاک نیز ایجاد نخواهد شد. تلفات آب ، بعلت عدم نفوذ آب در اعماق خاک و عدم تبخیر در کانالهای آبرسانی، نسبت به روشهای آبیاری سطحی (غرقابی یا نشتی) خیلی کمتر است. در برخی از گیاهان ، نظیر یونجه ، چغندرقند و اغلب سبزیجات که در مرحله جوانه زنی به شوری خاک حساس هستند، می توان از آبیاری بارانی برای شستشوی موثر نمک کمک گرفت تا جوانه زنی مطمئن و سریع امکان پذیر گردد. این روش آبیاری در اراضی شنی و زمینهائی که هموار کردن آنها مشکلاتی در بر خواهد داشت کاملاً مناسب می باشد آبیاری بارانی برای خنک کردن گیاهان به هنگام دمای بالا و یا کنترل شبنم به هنگام دمای زیر صفر و جلوگیری از یخ زدگی گیاه قابل استفاده است. از معایب آبیاری بارانی به هزینه زیاد تاسیسات اولیه، اشکال در آبیاری به هنگام وزش باد، تبخیر بخشی از آب پاشیده شده و همچنین رشد و تکثیر بیشتر علف های هرز و بیماریهای گیاهی می توان اشاره کرد.
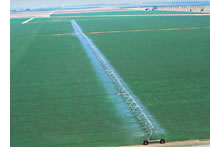
آبیاری بارانی عقربه ای(center pivot)
بدلیل تشابهی که چرخش لوله دراین روش آبیاری باعقربه ساعت داردنام "عقربه ای" برروی آن گذاشته شد.
سیستم آبیاری بارانی عقربه ای برای اولین باردرسال 1952ابداع شد.مهمترین حسن این سیستم اتوماتیک بودن ونیازکم آن به کارگراست .درعین حال درمقایسه با سیستم آبیاری بارانی ثابت به لوله وآبپاش کمتری نیازدارد.سیستم آبیاری بارانی عقربه ای تشکیل شده ازیک لوله نسبتاً طویل که آبپاش هابرروی آن قرارگرفته اند.این لوله بوسیله موتوری درمرکززمین حول مرکزچرخیده ودرنتیجه مزرعه ای بشعاع تقریباً طول ودایره ای شکل راآبیاری میکند.آب درمرکززمین واردلوله شده به آبپاش هائی که برروی آن قرارگرفته اندمنتقل می شود.
هزینه اولیه آبیاری بارانی عقربه ای بیشترازسیستم های متحرک ونیمه متحرک است.قسمت قابل توجهی ازاین هزینه صرف اتوماتیک کردن سیستم می شود. باتوجه به نکات فوق الذکر، درکشورهائی که اصولاًدولت بدنبال طرح های اشتغال زادربخش کشاورزی باشداستفاده ازاین آبیاری مناسب نسیت.درکشورهائی مثل ایران ،که قسمت اعظم زمینهای زراعی کوچک هستندوازطرف دیگراستفاده از تکنولوژیهای پیچیده دربخش کشاورزی همراه بااشکال است ،استفاده اراین روش آبیاری قابل توصیه نیست. سیستم آبیاری بارانی عقربه ای جزو ماشینهای آبیاری به حساب می آید.
هرواحدآبیاری بارانی عقربه ای می تواندزمینی حداکثربه مساحت 100هکتارراآبیاری کند. بطورمعمول شعاع (طول لوله) آبیاری بارانی عقربه ای را400مترمی گیرندکه زمینی به مساحت 50هکتارراآبیاری می کند.
لوله بوسیله پایه هایی درهواوبالاترازگیاه قرارمی گیرد.این پایه هابرروی چرخهایی سوارمی شوندکه حرکت دورانی لوله بوسیله این چرخهامیسرمی گردد.فاصله بین پایه هامعمولاً 30تا60متراست.

محاسن عمده سیستم آبیاری بارانی عقربه ای عبارتنداز:
1-درمقایسه باآبیاری بارانی متحرک ونیمه متحرک که لوله های جانبی بطورمرتب جابه جامی شوندوآب درنقاط مختلف به این لوله هاواردمی شود،درآبیاری بارانی عقربه ای آب لازم فقط به یک نقطه درمرکززمین منتقل شده ودرآنجاواردلوله آبیاری می شود.
2-لوله آبیاری بارانی عقربه ای پس ازیک دورآبیاری دوباره درنقطه شروع قرارمی گیردونیازی به جابه جائی لوله بادست یاهروسیله دیگرنیست.
3-درصورتیکه سیستم آبیاری خوب طراحی شده باشد،می توان یکنواختی توزیع آب بالائی راانتظارداشت.
معایب سیستم آبیاری بارانی عقربه ای بقرارزیرمی باشد:
1-زمینهای زراعی معمولاً بشکل مستطیل یامربع(یاشکلهای دیگرغیرازدایره) می باشددرصورتیکه آبیاری بارانی عقربه ای زمینی بشکل دایره راآبیاری می کند.این شرایط باعث می گرددکه قسمتس ازمزرعه زیرپوشش عمل آبیاری قرارنگیرد.
2-آبپاشهائی که درقسمت انتهائی لوله قرارمی گیرندشعاع بزرگتری راطی می کنندوبایدآبدهی زیادتری نسبت به آبپاشهائی که درمرکزمزرعه قرار می گیرندداشته باشند.باین ترتیب احتمال آبدوی برروی مزرعه واتلاف آب بیشترمی شود .
برای رفع این اشکال پیشنهادمی شودکه تعداددفعات آبیاری بیشترشده ومقدارآب آبیاری درهردفعه کاهش پیداکند.این عمل باعث می شودکه تعداد دوردرروزلوله که معمولاً یک است بیشترشودکه دربعضی مواقع اشکال ایجادمی کند.
3-چون درقسمتهای مرکزی مزرعه هرواحدطول سطح کمتری رادرمقاسیه باانتهای لوله آبیاری می کند، بنابراین بخش اعظم آب به انتهای لوله منتقل شده وافت اصطکاکی زیادی راباعث می گردد.
4-درزمینهای شیب داردریک زمان لوله درشیب مثبت ودرحالت مقابل درشیب منفی قرار
می گیرد.به این ترتیب طرح هیدرولیکی سیستم مشکل ترشده یکنواختی توزیع آب درمزرعه کاهش پیدامی کند.اگرمزرعه شیب زیادداشته باشددرحالتیکه لوله درشیب منفی قرار میگیرد حتی ممکن است آب به آبپاشهای انتهائی نرسد.
منابع تأمین نیروبرای حرکت لوله نیروی لازم جهت حرکت دورانی لوله به یکی از5طریق زیر تأمین میشود.
1- هیدرولیکی آبی ، که ممکن است مثل پیستون عمل کند ویا چرخشی باشد.
درروش پیستونی برروی هرمجموعه چرخ یک پیستون سوارمیشودکه نیروی لازم جهت حرکت پیستون ازآبی که درلوله آبیاری درجریان است تأمین میگردد.پیستون یک سری میله هائی را به حرکت درمی آوردکه این میله ها نیزبنوبه خودباعث چرخش چرخها ودرنتیجه حرکت دورانی لوله میگردد. درروش چرخشی، یک موتوربرلوله ای سوارمیشودکه چرخها رابحرکت درمی آورد.این حرکت ممکن است بوسیله چرخ دنده ویا زنجیرازموتوربه چرخها منتقل شود.
2- هیدرولیکی روغنی – دراین روش نیزطرزکارمثل روش اول است وفقط بجای آب ازروغن استفاده میشود.
3- موتورهای الکتریکی – دراین روش برروی هرکدام ازچرخها یک موتورباقدرت نیم تایک ونیم اسب بخارسوارمیشود.این موتورها وسیله یک ژنراتورکه درمرکززمین قرارگرفته بکارمی افتد.اگرشبکه سرتاسری برق درمنطقه وجود داشته باشد احتیاج به ژنراتورنبوده وبرق لازم ازشبکه تأمین میشود.
4- فشارهوا- سیستم هائی که انتقال چرخ درآنها بوسیله هواصورت میگیرداحتیاج به یک کمپرسورقوی دارند.کمپرسورهوای فشرده رابه سیلندرمیفرستدونیروازآنجا به میله هائی منتقل میشودکه چرخها رابه حرکت درمی آورد.
5- نیروهای مکانیکی – این سیستم ها دارای یک سیلندرروغنی میباشندکه درقسمت مرکزی سیستم آبیاری بارانی عقربه ای قرار میگیرد.نیروبوسیله سیم بوکسوربه چرخها رسیده ودر نهایت باعث حرکت آنها وچرخش لوله میشود.
دبی آبپاش ها
باتوجه به حرکت دورانی لوله های آبیاری بارانی عقربه ای میتوان گفت که آن قسمت ازلوله که بمرکززمین نزدیکتراست دایره کوچکتروقسمتهای انتهائی لوله دایره بزرگتری رامی پیماید.با توجه به نکته فوق، هرچه فاصله آبپاش برروی لوله ازمرکززمین زیادتر باشددبی آن نیزباید بیشترگردد.
اگرآبپاش هابفاصله مساوی برروی لوله قرارگیرندبایددبی آنها بازیاد شدن فاصله آنها ازمرکز زمین افزایش یابد.
نکات مهمی که درطراحی سیستم آبیاری بارانی عقربه ای باید درنظرگرفته شوندعبارتنداز:
1-ماکزیمم تبخیروتعرق روزانه درمحل
2-کاربرد ماشین
3-خصوصیات فیزیکی خاک
4-طرح هیدرولیکی ماشین آبیاری عقربه ای
درطراحی سیستم آبیاری بارانی عقربه ای ، سرعت چرخش لوله آبیاری عقربه ای (تعدادچرخش درروز)، طول لوله وقطرآن ، دبی کل ، فشارلازم ،تعداد آبپاش ها وفاصله آنها وسیله طراح تعیین میگردد.
باتوجه به نتایج حاصل ازمسئله فوق میتوان به این نتیجه رسیدکه اگرسیستم آبیاری عقربه ای درزمینهائی باشیب زیادایجادشودیکنواختی توزیع آب بسیارپائین بوده وحتی ممکن است در نتیجه افت بارثقلی بیش ازاندازه آب به آبپاشهای انتهائی نرسد.همین موضوع استفاده ازآبیاری بارانی عقربه ای رادرزمینهای شیبدارمحدود میکند.درصورتیکه محاسبات مشابه برای شیب مثبت زمین انجام گیردمشاهده خواهدشدکه دبی درمقایسه بازمین مسطح افزایش پیدا میکند .دراین حالت نیزیکنواختی توزیع آب بسیارپائین است. بعلاوه درشیبهای مثبت باافزایش دبی امکان آبدوی درمزرعه بیشترمیگردد.

كاهش تلفات آب و افزايش بازده آبياري، يكي از اصول اساسي در توسعه كشاورزي مي باشد. بررسي و شناخت مديريتهاي مختلف و عملكرد آنها مهمترين عامل براي ارزيابي و بهبود شرايط نامطلوب و نهايتا افزايش بازده آبياري محسوب مي گردد. در اين راستا براي دستيابي به اهداف مذكور عملكرد سيستم هاي آبياري باراني چرخدار و ثابت با آبپاش هاي متحرك در مزارع تحت شبكه آبياري دشت قزوين در سال 1384 بررسي شد. براي اين منظور دو مزرعه يونجه تحت مديريت زارعين انتخاب شد و با اندازه گيري رطوبت خاك در قبل و بعد ازآبياري و همچنين اندازه گيري آب پخش شده در روي زمين و تعيين ميزان آب خارج شده از آبپاشها وتعيين خصوصيات فيزيكي خاك، مقادير AELQ, PEQ, CU, DU در اين دو مزرعه تعيين گرديد. براي مقايسه بهتر دو سيستم اين آزمايشها در پنج نوبت آبياري و در طول فصل رشد انجام شد. با محاسبات صورت گرفته مقادير متوسط و حد پايين و حد بالاي شاخصهاي مذكور تعيين شد. در سيستم ابياري باراني چرخدار دامنه شاخص AELQ بين 3/28 تا 2/41 درصد كه بطور متوسط 8/33% و شاخص PELQ بين 6/51 تا 1/75 درصد كه بطور متوسط 2/62% و شاخص CU بين 5/73 تا 1/87 درصد كه بطور متوسط 0/81% و شاخص DU بين 3/58 تا 3/79 درصد كه بطور متوسط 5/71% تعيين گرديد. براي سيستم آبياري باراني ثابت با آبپاش هاي تحرك دامنه شاخص PELQ بين 1/32 تا 6/62 درصد كه بطور متوسط 8/46% و شاخص CU بين 6/40 تا 01/78 درصد كه بطور متوسط 0/68% و شاخص DU بين 6/35 تا 5/73 درصد كه بطور متوسط 7/55% تعيين گرديد

سيستم آبياري باراني تحت فشار سنتر پيوت (Center Pivot)با بهره گيري از طرح Lock Wood آمريكا. با طراحي مناسب با مزارع ايران. باراندمان بالاي آبياري و هزينه نگهداري و استهلاك بسيار پايين. قابليت مانيتورينگ سيستم و كنترل توسط امواج راديويي و موبايل شما. توانايي تزريق كود و سموم شيميايي. توانايي آبياري و كود دهي و پاشش سموم بدون نياز به كارگر.
| روشهاي مختلف آبياري لینیر |
|
دستورالعمل استفاده از دستگاه براي روشهاي مختلف آبياري تيپ (نوار) بارانی کلاسيک |
با توجه به اينکه استفاده از سموم شيميايي اثرات زيست محيطي و آلودگي هاي منابع آب و خاک را به همراه دارد، در سال هاي اخير روش کنترل بيولوژيکي بسيار مورد توجه قرار گرفته است.
هنوز بسیاری از مردم نمی دانند که کفشدوزکها حشرات مفیدی هستند، البته همه کفشدوزکها نه، ولی اغلب آنها
حشراتی بسیار سودمندند.
کفشدوزکها، حشرات مضر مانند شته ها را شکار می کنند. آنها قدرت پرواز زیادی دارند. با فرا رسیدن فصل سرما به محلهای زمستانه خود مهاجرت می کنند اما دوباره در بهار سر و کله شان لابه لای بوته های سبزیجات و شاخ و برگ درختان پیدا می شود که به دنبال شکار هستند.
کفشدوزکها به وسیله حشره شناسان تقسیم بندی گشته و از روی نقطه های روی بالهایشان شناسایی می شوند. بعضی از آنها فقط از حشره بخصوصی تغذیه می کنند مثلاً نوعی کفشدوزک که فقط به خوردن شپشک استرالیایی علاقه مند است اما برخی دیگر از کفشدوزکها تغذیه از انواع شته را ترجیح می دهند. با همه اینها وقتی کفشدوزک گرسنه باشد دیگر نوع شکار برایش زیاد فرقی نمی کند، تا جایی که اگر با بی غذایی روبه رو شود ممکن است نوزادان و لاروهای جوان خود را نیز مورد حمله قرار دهد. ضمنا آنها بدشان نمی آید که گاه گداری سری به لانه مورچه ها بزنند و میهمانشان شوند. در این صورت مواد غذایی مورچه ها را نیز نوش جان می کنند.
همان طور که گفته شد همه کفشدوزکها مفید نیستند. مثلاً کفشدوزکهای جالیز، آفاتی جدی برای خربزه و سایر گیاهان جالیزی به حساب می آیند. همچنین کفشدوزک چغندر که خسارت قابل توجهی روی برگهای چغندر و اسفناج به بار می آورد، اما از آنجایی که اکثر آنها سودمند هستند امروزه انواع مفید را شناسایی و در آزمایشگاه تکثیر نموده و در مزارع و باغات رها می کنند.
عبارتند از:
کفشدوزکهای نوزده نقطه ای، یازده نقطه ای، دو نقطه ای، ده نقطه ای، چهار لکّه ای و کفشدوزکهای کروی.
مهمترین کفشدوزک مفید، کفشدوزک هفت نقطه ای است. این حشره در مدت یک ماه می تواند سیصد عدد تخم بگذارد، جالب اینکه هر کفشدوزک توان نابود نمودن چهارصد شته را دارا است.
با شته ها:
کفشدوزکهای مفید با حرص و ولع زیاد به سوی شته ها حمله ور گشته و لاروهای جوان و نوزادان شته ها را می خورند، اما برای تخمگذاری نیز شته ها را شکار کرده و تخمهای خود را در داخل شکم شته ها قرار می دهند. به این ترتیب تخم کفشدوزکها، از مواد غذایی داخل شکم شته ها تغذیه نموده و رشد می کنند، اما شته هایی که مورد حمله قرار گرفته اند به سرعت نابود خواهند شد. مورچه ها تخم شته ها را به لانه خود می برند تا وقتی تخمها رشد کردند و به شته کامل تبدیل شدند از مدفوع آنها که عسلک نامیده می شود تغذیه کنند. در بسیاری از اوقات کفشدوزکها تخمهای شته ها را از چنگ مورچه ها خارج ساخته و از آن خود می سازند.
شته :اين آفت ، از مهم ترين آفات گياهان زراعي و درختان ميوه، گل ها و درختان جنگليس محسوب مي شود. بعضي از شته ها در انتقال بيماري هاي گياهي، به خصوص بيماري هاي ويروسي نقش مهمي بازي مي كنند. از مهم ترين انواع شته، شته سياه باقلا، شته سبز سيب، شته سياه هلو و ... را مي توان نام برد.
شته ها در زمستان به صورت تخم روي گياه ميزبان و يا در داخل لانه مورچه ها به سر مي برند و در بهار همزمان با شروع رشد گياه ميزبان، تخم ها باز شده، پوره ها در قسمت هاي مناسب گياه مشغول تغذيه و وارد كردن خسارت مي شوند. اين نوزادان همگي ماده اند و تبديل به ماده هاي بالغ شده و شروع به توليد مثل مي كنند. نوزادان به وجود آمده همگي ماده هستند و بدون نياز به حشرات نر قادر به توليد مثل مجدداند. اين نوع توليد مثل «دختر زايي» يا «بكرزايي» ناميده مي شود.
در مباريه بيولوژيكي از دشمنان طبيعي شته استفاده مي شود. نظير كفشدوزك 7 نقطه كه از شته ها تغذيه مي كنند.
در مبارزه شيميايي سم پاشي با انواع سموم گياه مناسب، متداولترين روش مبارزه است.
شته سبز هلو
این آفت به نام شته سبز اسفناج نیزمشهور است در کلیه مناطق ایران وجود دارد. شته سبز هلو روی درختان هلو، مرکبات، گوجه، آلو، سیب، زردآلو و بعضی گیاهان زراعی از جمله سیب زمینی، چغندرقند، گوجه فرنگی، توتون، رازک، گل کلم، کلم پیچ و گون های مختلف غلات و در سال های اخیر روی کلزا نیز فعالیت کرده و خسارت وارد می کند. (7)
مشخصات
ماده بدن بال و بکرزا، بطول 4/2 ـ 3/2 میلی متر بوده، رنگ بدن سبز روشن تا سبز متمایل به زرد، روی شکم نوارهای رنگین تری به طور مشخص دیده می شود. روی سرحشره در ناحیه پیشانی دو غده شاخک مانند مجموعاً شیار عمیقی را می سازند وجود دارد. آخرین بند شاخک، کورنیکول ها و دم شته کمی
تیره تر از رنگ سایر قسمتهای بدن است. کورنیکول ها به رنگ سبز در وسط کمی متورم و انتهای آن
قهوه ای روشن می باشد دم دارای سه جفت مو در قسمت انتهایی و عقبی قرار دارد و کوتاه تر از کورنیکول ها و به رنگ روشن است (5و7).
در ماده های بالدار و بکرزا شکم نستباً براق، سر و قفسه سینه نیز مایل به سیاه یا قهوه ای روشن می باشد. طول تقریباً 3/2 میلی متر، شاخک ها تقریباً برابر طول بدن و به رنگ سیاه، رنگ بدن سبز زیتونی و دارای لکه های تیره روی مفصل های سوم وششم می باشد در اطراف این لکه ها نیز نقاط و خطوط کوچک و پراکنده ای وجود دارد. کونیکول های ماده بالدار کوتاه تر از کورنیکول های ماده بی بال می باشد. رنگ کورنیکول ها مایل به سیاه و یا قهوه ای روشن، طول دم 2.3 طول کونیکول ها به رنگ تیره است طول بدن به اندازه تقریبی فرم های بی بال است
زیست شناسی: شته سبز هلو زمستان را به صورت تخم های سیاه براق بر روی شاخه های درختان میزبان می گذارند. در بهار بسته به مناطق مختلف، تخم ها از اواسط بهمن ماه تا اواخر فروردین ماه تفریخ
می شوند. شته های ماده مؤسس این نسل، به تولیدمثل به روش بکرزایی می پردازند و چندین نسل آن روی درختان میزبان زندگی می کند.
حشرات بالدار از اواخر فروردین تا اوایل خردادماه ظاهر شده و با ترک میزبان های اصلی به روی
میزبان های ثانویه مهاجرت می کنند. روی این گیاهان افراد بالدار چندین نسل به روش بکرزائی ایجاد کرده و موجب خسارت در گیاهان زراعی می شوند. این افراد در پاییز بسته به مناطق مختلف از اواسط شهریور ماه تا اوایل آذر ماه مجدداُ به روی میزبان های اصلی باز می گردند و همزمان با این مهاجرت افراد نر و ماده حقیقی ظاهر شده و ماده بعد از جفتگیری، تخم های خود را به طور انفرادی در روی شاخه های باریک به ویژه در قاعده جوانه ها و یا در کنار آنها قرار می دهند. تخم گذاری از اواسط مهر تا اوایل آذر ماه ادامه داشته و هر ماده 5 الی 10 تخم تولید می کند و تا بهار و زمستان گذرانی می کند (7).
مراحل زندگی این آفت در مناطق با زمستان های معتدل به صورت هولوسیکلیک*[1]بوده در این مناطق
ماده ها در طول سال به طریق بکرزایی زاد و ولد می کنند. ولی در بعضی مناطق با زمستان های مساعد تعدادی از افراد موجود به زندگی «آن هولوسیکلیک» و در بعضی دیگر نیز به زندگی هولوسیکلیک ادامه می دهند. به این ترتیب زیست شناسی این شته وضعیت بسیار پیچیده ای را نشان می دهد و با شرایط آب و هوایی، غذا، و روشنایی در ارتباط می باشد. شته سبز هلو در مناطق سردسیر و نیمه سردسیر در اواخر فصل (گل و رسیدن دانه کلزا) ظاهر می شود و به ندرت قبل از آن احتمال خسارت دارد، ولی در مناطق گرمسیر محدودیت فوق از بین می رود. (9)
شته سبز هلو در طبیعت دارای دشمنان متعددی از جمله کفشدوزک ها، لارو مگس های سیرفید، بعضی زنبورهای پارازیت، همچنین 2 نوع کنه و 10 نوع قارچ بیماری زا می باشد. به رغم فزونی دشمنان طبیعی این آفت به علت زاد و ولد سریع این حشهر آنها هرگز قادر به رقابت با شته ها نیستند به علت دوره
نشو و نمای بسیار کوتاه و سرعت جابه جایی شته ها این آفت سریعاً پخش و گسترش می یابد. شته سبز هلو در انتقال بیماری های ویروسی در گیاهان مختلف نقش مهم و خطرناکی دارد.
عوامل محیطی مختلف در کاهش جمعیت شته ها تاثیر قابل ملاحظه ای دارد. به طوری که باران های شدید قسمت اعظم افراد بالدار را تلف کرده و همچنین سبب شسته شدن پوره ها و افراد بی بال از روی گیاه می شود. بنابراین بعد از باران های شدید کاهش قابل ملاحظه در جمعیت شته ها امری طبیعی
می باشد. بعلاوه فرارسیدن سرمای زودرس پاییزه قدرت تکثیر ماده ها را به میزان زیادی تقلیل می دهد.
خسارت شته ها ـ شته ها به ترتیب اولویت، شته خاکستری Brevicoyne. Brassica و شته سبز هلو Myzus.persica و شته شلغم Lipaphis crysimi (که توسط متخصصان از اکثریت نقاط کشت کلزای کشور گزارش شده) به طور منفرد یا مجتمع ـ در حالت های مختلف موجب خسارت اقتصادی هستند. میزان خسارت شته ها بویژه شته مومی در مناطق سردسیر و نیمه سردسیر به دقت بررسی نشده است. در صورت عدم مبارزه دقیق و سریع ـ خسارت بسرعت با توجه به تعدد نسل ها انتشار می یابد. بوته های آلوده از رشد بازمانده و تشکیل گل و غلاف در آن به شدت تقلیل یافته یا مختل می شود،
غلاف ها اکثراً تشکیل نشده (به علت ضعف مفرط گیاه) و یا خمیده و بد شکل شده، دارای دانه های بسیار اندک در حد 5 ـ 3 عدد (در مقابل 35 ـ 26 در شرایط معمولی) بوده و طول غلاف کم می شود. غنچه ها در رسیدن به مرحله شکوفایی دچار تاخیر شده و شاخه بندی ها متوقف و یا بسته به شدت آلودگی و دیگر فاکتورهای محیطی قطع می شود. با توجه به تصویر، هنگامی که شدت تراکم آفت زیاد است، غلاف ها اصلاً تشکیل نمی شود و تمام پایه غلاف ها خالی باقی می ماند. (غلاف ریزی)
در صورت انجام مبارزه و حذف کامل آفت، گیاه شروع به رشد مجدد می کند. بوته های آفت زده در یک جامعه در مقایسه با بوته های سالم بین 45 ـ 20 روز در رسیدن تاخیر دارد و توام با کاهش شدید محصول است.
آلودگی مصنوعی در مرحله به ساقه رفتن و مبارزه قطعی با آفت در مرحله غلاف بندی، باعث کاهش محصول از 2/4 تن به حد 200 کیلوگرم در هکتار (420 گرم در متر مربع به 20 گرم در متر مربع) شد، وزن هزار دانه بسرعت پایین آمد و دانه ها پوک شدند. (2/95% خسارت)
تحقیقات انجام شده در امریکا نشانگر گسترش آلودگی ها در سال های متوالی است. در یک بررسی در سال اول 9/9% آلودگی، سال دوم 4/30% و سال سوم 8/34% بوده است.
بر خلاف آنچه در کاهش جمعیت آفت در اثر بارندگی ها در مورد شته ها عنوان شد ـ استرس آب ـ و فقدان رطوبت کافی در خاک باعث تجزیه بخشی از پروتیین ها به اسیدهای آمینه و در نتیجه افزایش آفت محصول می شود برگ ها بنفش رنگ و حرارت سطح آنها زیاد می شود. رشد و نمو و تولیدمثل شته ها سرعت پیدا می کند. در مزارع تحت استرس، جمعیت شته زیاد و در نهایت، خسارت وارده بیشتر
می شود.
کفش دوزک
نام علمي: Coccinelidae
كفش دوزك با رنگهاي شادي كه دارد توجه شكارگران حشرات را به خود جلب ميكند و هنگامي كه حيواني مزاحم او ميشود مايع بدبو و نامطبوعي از خود ترشح ميكند. يعني زماني كه احساس خطر ميكند مقدار كمي مايع روغني، زرد و بدبو از پاهايش ترشح ميشود كه اخطاري براي شكارگران آينده او مثل مورچهها و پرندگان است.
طول اين حشرات بين 15 - 1 ميليمتر است. كفش دوزكها جز سوسكها پاكوتاه و گرد به حساب ميآيند و داراي دو شاخك در سر ميباشند.
كفش دوزكهاي هفت خال، سه خال و نيم در هر يك از طرفين بالها دارند. سينه سياه با دو علامت سفيد در پهلو و سر كوچك و سياه دارند. بالها مخفي است كه در هنگام پرواز باز شده و ظاهر ميشوند.
نوزاد كفش دوزك پوستي به رنگ آبي - خاكستري و خالهاي زردي در طرفين بدن دارد. اين حشرات در باغها، جنگل، بيشهزارها و علفزارها زندگي ميكنند. كفش دوزك هفت خال بيشتر در اروپا ديده ميشود.
از حشرات مختلفي تغذيه ميكنند اما از خوردن شپشها و شتهها بيشتر لذت ميبرند. اين حشرات به عنوان دوست باغبان شناخته شدهاند چون آفتهاي باغ را ميخورند. به طور متوسط كفش دوزك هفت خال بيش از 5000 شته را در طول عمر خود ميخورد.
كفش دوزكها در گروههاي بزرگ در محلهايي كه معمولاً هر سال در آنجا اتراق ميكنند به خواب زمستاني ميروند. زيستشناسان عقيده دارند كه تجمع كفش دوزكها در محل خواب زمستاني سبب جلب كفش دوزكهاي ديگر براي خواب زمستاني در همان محل ميشود. كفش دوزكها گروهي و جمعي به طور مطبق (طبقات مختلف) به خواب زمستاني ميروند. اين خواب زمستاني كه به صورت گروهي انجام ميشود احتمالاً سبب ميشود كه گرماي كمتري از دست بدهند و شانس آنها را براي تحمل و به پايان رساندن زمستان سرد افزايش دهد.
فصل جفتگيري مي و ژانويه است و جفتگيري كفش دوزكهاي هفت خال بسيار ديدني است. كفش دوزك ماده در دوران زندگي كوتاه خود بيش از 2000 تخم زرد كوچك ميگذارد و به اين دليل نياز به تغذيه كافي از شته دارد. اين تخمها چسبنده بوده و به صورت تك تك يا تجمع كوچك روي گياهان و نباتات ديده ميشود.
تعدادي از گونهها گياهخوارند و بالغها بيشتر شكارگران حشرات نرمتن هستند. در نتيجه براي كنترل آفات مفيد ميباشند. نام كفش دوزك از زمان قرون وسطي آمده. به كفش دوزك اصطلاحاً بانوي سوسكها (Lady beetle) يا بانوي حشرات (Lady bugs) هم ميگويند.
عکس کفشدوزک هفت نقطه ای با نام علمی Coccinella septempunctata
کفشدوزکها ، جز سوسک ها به حساب میآیند و دارای دو شاخک در سر هستند.
این کفش دوزک با رنگهای شادی كه دارد، توجه شكارگران حشرات را به خود جلب ميكند و هنگامي كه حيوانی مزاحم او ميشود، مايع بدبو و نامطبوعي از خود ترشح ميكند. يعني زماني كه احساس خطر ميكند مقدار كمي مايع روغني، زرد و بدبو از پاهايش ترشح ميشود كه اخطاري براي شكارگران او مثل مورچه ها و پرندگان است.
کفشدوزک 7 نقطهای
Coccinella septempunctata L.
Coleoptera: Coccinellidae
کفشدوزک هفت نقطه ای از فراوان ترین و معروف ترین گونه های حشرات شکارچی است که در تمام نقاط مختلف دنیا در مبارزه بیولوژیک کاربرد فراوانی داشته است. لارو و حشرات بالغ از انواع شته های آزاد، گالزا و حتی شته های ریشه، شپشک های نباتی، پسپل ها، تخم و لارو جوان سایر حشرات تغذیه می کند، هر کفشدوزک در دوره لاروی، هزار و هر حشره کامل تا 9000 شته را طعمه خود قرار می دهد.
شکل شناسی
حشره بالغ: نسبتاً بزرگ و به طور 8 ـ 5/5 میلی متر، محدب، با سرسیاه رنگ که از دو طرفین دو چشم پیشرفتگی پیدا نموده است در حاشیه جلویی سرنوار باریک قرمزرنگی مشاهده می شود، شاخک ها دارای قاعده سیاه و بندهای خرمایی رنگ است. سینه سیاه رنگ و دارای حاشیه جلویی صاف که از دو طرف چشم ها را می پوشانند. حاشیه عقبی سینه قوسی است. بالپوش ها به رنگ قرمز نارنجی، کاملاً محدب با حاشیه های صاف و انتهای آن گرد است. سپرچه مثلثی و سیاه رنگ می باشد. روی هر بالپوش سه نقطه سیاه رنگ و یک نقطه سیاه رنگ دیگر نیز به صورت مشترک بین دو بالپوش قرار دارد. سطح زیرین بدن و پاها، سیاه و پوشیده از موهای ظریف و سفید رنگ است.
تخم: تخمها کشیده، و در ابتدا زرد روشن است که به تدریج نارنجی می شود. طول تخم 73/0 ـ 67/0 میلی متر است.
لارو: لارو به رنگ زرد مایل به قهوه ای تا خاکستری مایل به سیاه، به طول 13 ـ 11 میلی متر و دارای لکه های نارنجی رنگ در امتداد طول بدن می باشند. نیم حلقه های پشتی بدن در ناحیه جانبی دارای برجستگی هایی است که روی آنها موهای کوتاه دیده می شود
شفیره: شفیره به طول 7 ـ 6 میلی متر و از انتهای بدن به برگ متصل می شود.
زیست شناسی
این کفشدوزک به صورت حشره کامل در پناهگاه ها نظیر زیر پوست درختان و شکاف دیواره ها زمستان گذرانی می کند. در بهار هنگامی که دما به 12 ریسد کفشدوزک ها از پناهگاه ها خارج و شروع به تغذیه می نمایند. سپس حشرات بالغ، جفت گیری کرده و در دمای بین 30 ـ 20 درجه سانتی گراد بعد از 4 روز تخمگذاری می نمایند، تخم ها به صورت دسته ای (100 ـ 50 عدد) در زیر برگهای گیاهان قرارمی گیرد. تعداد تخم بین 300 ـ 70 عدد و حداکثر تا 3000 عدد گزارش شده است، لاروهای جوان از تخم خارج شده و در قسمت های مختلف گیاه به جستجوی طعمه می پردازد. این حشره دارای 5 سن لاروی بوده که 10 تا 7 روز طول می کشد. شفیره ها در زیر برگ یانقاط دیگر ثابت شده و پس از یک هفته تا ده روز به حشره بالغ تبدیل می شوند . این کفشدوزک دارای 5 تا 3 نسل در سال است.
شود.
منابع وماخذ
نشريه آفات و بيماريهاي گياهي، جلد 66، شماره 1 و 2.
2- امامي، محمدسعيد؛ صحراگرد، احد و جليل حاجيزاده. 1378. بررسي واكنش تابعي كفشدوزك Scymnus syriacus به تراكمهاي مختلف شته سبز مركبات Aphis spiraecola. نشريه آفات و بيماريهاي گياهي، جلد 67، شماره 1 و 2.
3- امامي، محمدسعيد؛ صحراگرد، احد و جليل حاجيزاده. 1383. زيست شناسي و تغييرات جمعيت كفشدوزك Scymnus syriacus دراستان گيلان. نشريه علمي پژوهشي پژوهش و سازندگي، شماره 63، صفحات 17 تا 20.
آدرس سایت برای اطلاعات بیشتر (بر روی لینک زیرکلیک کند)
http://sid.ir/fa/vewssid/j_pdf/560138362m03.pdf
تعریف انسان شناسی
هر منظومه معرفتی را که به بررسی انسان یا بعد یا ابعادی از وجود او، یا گروه و قشر خاصی از انسان ها می پردازد می توان انسان شناسی نامید . سنت نبوی.
انسان شناسی و انواع مختلف و متنوعی دارد که به لحاظ روش یا نوع نگرش از یکدیگر متمایز می شوند.
انواع انسان شناسی
این مقوله را می توان بر اساس روش به انسان شناسی تجربی ،عرفانی ،فلسفی و دینی تقسیم نمود.
اما با توجه به نوع نگرش به انسان شناسی کلان یا کل نگر و انسان شناسی خرد یا جزء نگر تقسیم کرد.
اندیشمندان برای حل معماها و پرسش های مطرح شده درباره انسان در طول تاریخ بشر راههای مختلفی را در پیش گرفته اند. و انسان شناسی در مکاتب نتیجه بررسیهای آنان می باشد.
برخی به بررسی مسأله با روش تجربی پرداخته و انسان شناسی تجربی را بنیان نهاده اند که دربرگیرنده همه رشته های علوم انسانی است .
گروهی راه درست شناخت انسان را سیر وسلوک عرفانی و دریافت شهودی دانسته و با تلاش هایی که از طریق انجام داده اند به نوعی شناخت از انسان که می توان آن را انسان شناسی عرفانی نامید دست یافته اند.
جمعی دیگر از راه تعقل و اندیشه فلسفی به بررسی زوایای وجود انسان دست یازیده و او را از این منظر مورد تحقیق قرار داده و نتیجه تلاش فکری خود را انسان شناسی فلسفی نامیده اند .
سرانجام گروهی با استمداد از متون دینی و روش نقلی درصدد شناخت انسان برآمده و انسان شناسی دینی را پایه گذاری کرده اند .
انسان در اسلام
انسان در جهان بینی اسلامی داستانی شگفت دارد . انسان اسلام تنها یک حیوان مستقیم القامه که ناخنی پهن دارد و با دو پا راه میرود و سخن میگوید نیست . انسان و حیوان یکی نیستند.
این موجود از نظر قرآن ژرفتر و مرموزتر از این است که بتوان آن را با این چند کلمه تعریف کرد .
قرآن انسان را مدحها و ستایشها کرده و هم مذمتها و نکوهشها نموده است .
عالیترین مدحها و بزرگترین مذمتهای قرآن دربارهء انسان است ، او را از آسمان و زمین و از فرشته برتر و در همان حال از دیو و جار پایان پستتر شمرده است . از نظر قرآن انسان موجودی است که توانایی دارد جهان را مسخر خویش سازد و فرشتگان را به خدمت خویش بگمارد ، و هم میتواند به " اسفل سافلین " سقوط کند . این خود انسان است که باید در بارهء خود تصمیم بگیرد و سرنوشت نهایی خویش را تعیین نماید .
سخن خویش را از ستایشهای انسان در قرآن تحت عنوان " ارزشهای انسان " آغاز میکنیم .
ارزشهای انسان
. 1 انسان خلیفهء خدا در زمین است .
" روزی که خواست او را بیافریند ، اراده خویش را به فرشتگان اعلام کرد . آنها گفتند :
آیا موجودی میآفرینی که در زمین تباهی خواهد کرد و خون خواهد ریخت ؟
او گفت : من چیزی میدانم که شما نمیدانید " بقره / . 30 ) .
" اوست که شما انسانها را جانشینهای خود در زمین قرار داده تا شما را در مورد سرمایههایی که داده است در معرض آزمایش قرار دهد " انعام / . 165 .
. 2 ظرفیت علمی انسان بزرگترین ظرفیتهایی است که یک مخلوق ممکن است داشته باشد .
" تمام اسماء را به آدم آموخت ( او را به همهء حقایق آشنا ساخت ) .
آنگاه از فرشتگان ( موجودات ملکوتی ) پرسید : نامهای اینها را بگویید چیست .
گفتند : ما جز آنچه تو مستقیما به ما آموختهای نمیدانیم ( آنچه را تو مستقیما به ما نیاموخته باشی ما از راه کسب نتوانیم آموخت ) .
خدا به آدم گفت : ای آدم ! تو به اینها بیاموز و اینها را آگاهی ده .
همینکه آدم فرشتگان را آموزانید و آگاهی داد ، خدا به فرشتگان گفت :
نگفتم که من از نهانهای آسمانها و زمین آگاهم ( میدانم چیزی را که حتمانمیدانید ) و هم میدانم آنچه را شما اظهار میکنید و آنچه را پنهان میدارید ؟ " (بقره / 31 - . 33 )
. 3 او فطرتی خدا آشنا دارد .
به خدای خویش در عمق وجدان خویش آگاهی دارد . همهء انکارها و تردیدها ، بیماریها و انحرافهایی است از سرشت اصلی انسان یا همان فطرت انسان .
" هنوز که فرزندان آدم در پشت پدران خویش بوده ( و هستند و خواهند بود ) خداوند ( با زبان آفرینش ) آنها را بر وجود خودش گواه گرفت و آنها گواهی دادند " (اعراف / . 172 ).
" چهرهء خود را به سوی دین نگهدار ، همان که سرشت خدایی است و همهء مردم را بر آن سرشته است " (روم / . 43 ).
. 4 در سرشت انسان علاوه بر عناصر مادی که در جماد و گیاه و حیوان وجود دارد ، عنصری ملکوتی و الهی وجود دارد .
انسان ترکیبی است از طبیعت و ماورای طبیعت ، ماده و معنی ، جسم و جان . به عبارت دیگر روح بعد غیر مادی انسان انسان است.
" آن که هر چه را آفرید نیکو آفرید و آفرینش انسان را از گل آغاز کرد ، سپس نسل او را از شیرهء کشیدهای که آبی پست است قرارداد ، آنگاه او را بیاراست و از روح خویش در او دمید " (سجده / 7 - . 9 ) .
. 5 آفرینش انسان، آفرینشی حساب شده است ، تصادفی نیست . انسان موجودی انتخاب شده و برگزیده است .
" خداوند آدم را بر گزید و توبهاش را پذیرفت و او را هدایت کرد " (طه / . 121 ) .
. 6 او شخصیتی مستقل و آزاد دارد ، امانتدار خداست ، رسالت و مسؤولیت دارد ، از او خواسته شده است با کار و ابتکار خود زمین را آباد سازد و با انتخاب خود یکی از دو راه سعادت و شقاوت را اختیار کند .
آزادی و اختیار انسان لازمه مسئولیت اوست.
" همانا امانت خویش را بر آسمان و زمین و کوهها عرضه کردیم ، همه از پذیرش آن امتناع ورزیدند و از قبول آن ترسیدند ، اما انسان بار امانت را به دوش کشید و آن را پذیرفت . همانا او ستمگر و نادان بود " (احزاب / . 72 ) .
" ما انسان را از نطفهای مرکب و ممزوج آفریدیم تا او را مورد آزمایش قرار دهیم ، پس او را شنوا و بینا قرار دادیم . همانا راه را به او نمودیم ، او خود یا سپاسگزار است و یا کافر نعمت . ( یا راه راست را که نمودیم خواهد رفت و به سعادت خواهد رسید و یا کفران نعمت کرده ، منحرف میگردد " (دهر / . 3 ) .
. 7 او ازیک کرامت ذاتی و شرافت ذاتی بر خوردار است ، خدا او را بر بسیاری از مخلوقات خویش برتری داده است .
او آنگاه خویشتن واقعی خود را درک و احساسمیکند و به خودشناسی میرسد که این کرامت و شرافت را در خود درک کند و خود را برتر از پستیها و دنائتها و اسارتها و شهوترانیها بشمارد . ارزش واقعی انسان درمکتب اسلام متبلور می شود.
" همانا ما بنی آدم را کرامت بخشیدیم و آنان را بر صحرا و دریا ( خشک و تر ) مسلط کردیم و بر بسیاری از مخلوقات خویش برتری دادیم( اسراء / . 70 )
. 8 او از وجدانی اخلاقی برخوردار است ، به حکم الهامی فطری زشت و زیبا را درک میکند .
" سوگند به نفس انسان و اعتدال آن ، که ناپاکیها و پاکیها را به او الهام کرد( شمس / 8 و . 9 " ) .
. 9 او جز با یاد خدا با چیز دیگر آرام نمیگیرد . خواستهای او بی نهایت است ، به هر چه برسد از آن سیر و دلزده میشود مگر آنکه به ذات بی حد و نهایت خدا بپیوندد .
" هماناتنها بایاد او دلها آرام میگیرد " (رعد / . 28 )
" ای انسان ! توبه سوی پرورد گار خویش بسیار کوشنده هستی و عاقبت او را دیدار خواهی کرد " (انشقاق / . 6 ).
. 10 نعمتهای زمین برای انسان آفریده شده است . رابطه انسان و دنیا دراسلام به درستی تعریف شده است.
" همانا اوست که آنچه در زمین است برای شما آفرید " (جاثیة / . 13 ) .
" آنچه در آسمانها و آنچه در زمین است مسخر او قرار داده است ( پس او حق بهرهگیری مشروع همهء اینها را دارد " .
. 11 او را برای این آفرید که تنها خدای خویش را پرستش کند و فرمان او را بپذیرد . پس او وظیفهاش اطاعت امر خداست .
" همانا جن و انس را نیافریدیم مگر برای اینکه مرا پرستش کنند " ( ذاریات / . 56 )
. 12 او جز در راه پرستش خدای خویش و جزبا یاد او خود را نمییابد ،و اگر خدای خویش را فراموش کند خود را فراموش میکند و نمیداند که کیست و برای چیست و چه باید کند و کجا باید برود .
" همانا از آنان مباشید که خدا را فراموش کردند و خداوند خودشان را ازیاد خودشان برد " (حشر / . 18 ).
. 13 او همینکه از این جهان برود و پردهء تن که حجاب چهرهء جان است دور افکنده شود ، بسی حقایق پوشیده که امروز بر او نهان است بروی آشکار گردد .
" همانا پرده را کنار زدیم ، اکنون دیدهات تیز است " (ق / . 22 ) .
. 14 او تنها برای مسائل مادی کار نمیکند ، یگانه محرک او حوایج مادی زندگی نیست .
او احیانا برای هدفها و آرمانهایی بس علی میجنبد و میجوشد . او ممکن است که از حرکت و تلاش خود جز رضای آفریننده ، مطلوبی دیگر نداشته باشد . نیازهای مادی و معنوی انسان مجموعاً موجب حرکت انسانها می شوند .
" ای نفس آرامش یافته ! همانا به سوی پرورد گارت باز گرد با خشنودی متقابل : تو از او و او از تو خشنود " فجر / . 28 .
" خداوند به مردان و زنان با ایمان باغها وعده کرده است که در آنها نهرها جاری است ، جاویدان در آنجا خواهند بود و هم مسکنهای پاکیزه ، اما خشنودی خدا از همهء اینها برتر و بالاتر است . آن است رستگاری بزرگ " توبه / . 72 .
بنابر آنچه گفته شد از نظر قرآن انسان موجودی است برگزیده از طرف خداوند ، خلیفه و جانشین او در زمین ، نیمه ملکوتی و نیمه مادی ، دارای فطرتی خدا آشنا ، آزاد ، مستقل ، امانتدار خدا و مسؤول خویشتن و جهان ، مسلط بر طبیعت و زمین و آسمان ، ملهم به خیر و شر ، و جودش از ضعف و ناتوانی آغاز میشود و به سوی قوت و کمال سیر میکند و بالا میرود اما جز در بارگاه الهی و جز با یاد او آرام نمیگیرد ، ظرفیت علمی و عملیاش نا محدود است ، از شرافت و کرامتی ذاتی بر خوردار است ، احیانا انگیزه هایش هیچ گونه رنگ مادی و طبیعی ندارد ، حق ب�%8
تحقيق ، پرورش و رهاسازي حشره زنبور تريكو گراما جهت كنترل كرم گلوه گاه انار
انار ميوهاي است كه بومي ايران بوده و از ايران به ساير نقاط جهان گسترش يافته است بطوريكه برگ درخت انار بصورت كندهكاري شده در ديوارههاي تخت جمشيد نيز مشاهده ميگردد. اين گياه با وجوداينكه از جمله كم آفتترين درختان است اما آفت مهم آن، يعني كرم گلوگاه انار، قادر است بين 15 تا 90 درصد محصول انار را از بين ببرد و خسارت زيادي وارد كند
مشخصات كرم گلوگاه انار: حشره كامل اين آفت پروانهاي است به رنگ خاكستري كه طول بدن آن بين 9 تا 12 ميليمتر است. تخم آن بيضي شكل بطول 7/0 ميليمتر بوده كه در ابتدا قرمز رنگ و بتدريج سفيد متمايل به زرد ميشود. لاروهاي سن اول بسيار ريز هستند ولي به تدريج جسته آنها بزرگ شده و در حداكثر رشد خود به حدود 2 سانتيمتر ميرسند رنگ آنها قرمز صورتي يا كرم است. شفيرهها قهوهاي رنگ هستند دوره زندگي كرم گلوگاهانار: اين آفت زمستان را بصورت لارو در داخل ميوههاي آلوده انار يا انجير، پسته و ... ميگذراند.. اواخر فروردين يا اوايل ارديبهشت شبپرههاي آفت ظاهر شده كه همزمان با تشكيل گل و ميوههاي انار است. خروج شبپرهها تا خرداد ادامه مييابد و پس از جفتگيري تخم خود را داخل تاج انار، روي ميله و بساك پرچمها يا روي سطح داخل كاسبرگ، دم ميوه يا شكافهاي ناشي از تركيدگي ميوه ميگذارند. هر حشره ماده بطور متوسط 25 تخم ميگذارد كه تخمها پس از 10 روز تفريخ شده و لاروها به داخل ميوه نفوذ ميكنند و از گوشت دانه انار و قسمت داخلي پوسته رويي ميوه تغذيه ميكنند. آنها با عمل تغذيه دالانهايي در داخل ميوه ايجاد ميكنند كه پس از آنكه لاروها به حداكثر رشد رسيدند از محل همين دالانها مجدداً به تاج ميوه برميگردند و به شفيره تبديل ميشوند. از 8 روز شفيره به حشره بالغ تبديل شده كه اين حشرات روي انارهاي سالم تخمريزي كرده و آلودگي را گسترش ميدهند. آفت كرم گلوگاهانار ممكن است 6-5 نسل در سال هم داشته باشد لازم به ذكر است كه كرم گلوگاه علاوه برتغذيه از ميوه انار باعث انتقال قارچها، باكتريها و مخمرها به داخل ميوه ميشود و به اين ترتيب باعث پوسيدگي و ترشيدگي ميوه نيز ميشود. اولين نشانه آلودگي ميوه انار به كرم گلوگاه، وجود خال سياهرنگ در ناحيه يقه ميوه (گلوگاه) انار است. اين لكه بتدريج گسترش يافته و به رنگ قهوهاي يا زرد در ميآيد كه معمولاًً اين قسمت پر از اسپورهاي سياهرنگ قارچ است
روشهاي كنترل كرم گلوگاه انار:
از آنجا كه كرم گلوگاه انار تخمهاي خود را داخل تاج ميوه ميگذارد، مبارزه شيميايي با آن تقريباً غيرممكن بوده و از طرف ديگر سمپاشي در باغات انار باعث از بين رفتن حشرات مفيد و در نتيجه طغيان ساير آفات بخصوص كنهها ميشود. بنابراين براي كنترل اين آفت بايد مجموعهاي از روشهاي مبارزه را بكار گرفت كه اصطلاحاً به اين روش مديريت تلفيقي كنترل آفت گفته ميشود. اين روشها شامل روشهاي بهزراعي، بيولوژيكي، فيزيكي و مكانيكي است
الف) روش به زراعي:
رعايت فواصل مناسب كاشت، شخم درختان در پائيز، تعيين فواصل مناسب آبياري با توجه به بافت خاك، سن درخت و شرايط آب و هوايي، تغذيه مناسب درختان، استفاده از ارقام مقاوم مانند انار اصفهاني دانه سياه، كنترل علفهاي هرز و هرس علمي درختان همگي كمك ميكنند كه خسارت آفات، بخصوص كرم گلوگاه انار به حداقل برسد.
ب) روشهاي فيزيكي و مكانيكي: جمعآوري منظم ميوههاي انار آلوده روي درخت و ريخته شده در كف باغ بصورت همگاني و نگهداري آنها در انبارها يا قفسهايي كه با توري ريز پوشيده شدهاند باعث ميشود زنبورهاي پارازيتوئيد از جمله زنبورهاي تريكوگراما كه آفت را از بين ميبرد خارج شده و در باغ پراكنده شوند اما حشرات بالغ كرم گلوگاه در قفسه انبار حبس شده و از بين بروند. علاوه بر ميوههاي انار، ميوههاي انجير، پسته يا ساير درختاني كه احياناً در باغ وجود دارند را نيز بايد از كف باغ جمعآوري كرد. اين عمل باعث ميشود ذخيره زمستانه آفت در سال بعد كم شده و ميزان خسارت وارد شده به محصول كاهش يابد. پركردن تاج ميوه انار بوسيله گِل و حذف پرچمهاي گُل انار بعد از اوج تخمگذاري شبپرهها در ابتداي بهار نيز به كاهش ميزان خسارت كمك زيادي ميكند.
فرمونهاي جنسي مواد فراري هستند كه توسط حشره ماده ترشح شده و باعث جلب حشره نر ميشود. فرمون جنسي كرم گلوگاه انار بصورت مصنوعي ساخته شده و در دسترس است. با استفاده از تلههاي فرموني حشرات نر موجود در باغ را ميتوان جمعآوري كرده ، جمعيت آفت و خسارت آن را كاهش داد. استفاده از اين تلهها روي حشرات مفيد و شكارگرها تأثير منفي ندارد.
مبارزه بيولوژيكي با كرم گلوگاه انار توسط زنبورهاي تريكوگراما:
زنبورهاي تريكوگراما از حشرات حشره خوار مفيدي هستند كه داراي اندازه كوچك، كمتر از يك ميليمتر، بوده و قادرند با تخمريزي در تخم آفات باعث انهدام آنها و ممانعت از بروز خسارت شوند. اين زنبورها داراي قدرت سازگاري زياد با شرايط اقليمي متفاوت هستند و علاوه بر آن بخوبي ميتوان آنها را در آزمايشگاه پرورش داد.
زنبورهاي تريكوگراما ميتوانند در تخم آفات مهمي مانند كرم ساقهخوار برنج، كرم ساقه خوار ذرت، كرم غوزه پنبه، كرم سيب و كرم گلوگاه انار تخمگذاري كرده، آنها را پارازيته كرده و از بين ببرند.
هم اكنون اين حشره مفيد در بيش از 50 كشور جهان از جمله آمريكا، چين، روسيه، فرانسه، هند، آلمان و ساير كشورهاي اورپايي و آسيايي بصورت تجاري توليد و براي كنترل آفات مختلف در سطحي بيش از يك ميليون هكتار مورد استفاده قرار ميگيرد.
در ايران كاربرد زنبورتريكوگراما در سال 1353 با وارد كردن دو گونه زنبوراز كشورهاي آلمان و شوروي سابق براي مبارزه با كرم ساقهخوار برنج شروع شد ولي در دهه هفتاد شمسي توليد تجاري و رهاسازي آن در استانهاي توليد كننده برنج كشور به شدت افزايش يافته و هم اكنون نيز بطور وسيع در محصولات مختلف زراعي و باغي از جمله كنترل كرم گلوگاه انار بكار ميرود.
زنبورهاي تريكوگراما داراي اندازهاي فوقالعاده كوچك، به طول 2/0 تا 4/0 ميليمتر، به رنگ زرد، خرمايي، قهوهاي يا سياه
هستند. بالهاي جلويي پهن و عريض و بالهاي عقبي باريك و شبيه چاقو است .
زنبورتريكوگراما تخم خود را داخل تخم آفات، مخصوصاً تخم پروانهها ميگذارد. تخمهايي كه توسط زنبور پارازيته ميشوند رنگ طبيعي خود را از دست داده و بتدريج سياه رنگ ميشوند. طول دوره زندگي زنبوردر درجه حرارت 25 درجه سانتيگراد و رطوبت 70 درصد حدود 8 روز طول ميكشد بنابراين در شرايط مناسب اين زنبور ميتواند بي وقفه به توليد نسل ادامه دهد

دستگاه دستی پرچم زدای انار جهت مبارزه با کرم گلوگاه انار توسط محققان موسسه تحقیقات گیاه پزشکی کشور طراحی و ساخته شد.
دکتر حسن عسکری، رئیس موسسه تحقیقات گیاه پزشکی کشور با اعلام این مطلب گفت: دستگاه پرچم زدای انار که توسط پژوهشگران موسسه با همکاری معاونت تولیدات گیاهی وزارت جهاد کشاورزی ساخته شده، گامی مهم در راستای تولید محصول سالم انار در کشور است. دکتر حسین فرازمند، طراح و مجری پروژه نیز تصریح کرد: حذف پرچم جهت جلوگیری از تخم ریزی آفت در داخل تاج میوه از موثرترین روش های کاهش خسارت کرم گلوگاه انار است. عضو هیات علمی موسسه تحقیقات گیاه پزشکی کشور با اشاره به این که از چندین سال قبل کشاورزان به طریق سنتی اقدام به حذف پرچم با کمک یک تکه چوب می کردند که این روش علاوه بر آسیب رساندن به تاج میوه موجب افزایش ریزش گل و میوه و نهایتاً کاهش باروری محصول و افزایش هزینه های تولید می شد، افزود: این دستگاه ضمن رفع اشکالات روش سنتی، به دلیل وزن کم، عدم نیاز به نیروی برق و باتری و کاهش هزینه و زمان اجرا از کارایی بسیار بالایی برخوردار است.
مبارزه بيولوژيكي با كرم گلوگاه انار در شهرستان جلفا
مبارزه بيولوژيكي با كرم گلوگاه انار در قالب طرح بسيج سازندگي در شهرستان جلفابه گزارش پایگاه اطلاع رسانی فارس نما، روز گذشته موسوی کارشناس مسئول حفظ نباتات شهرستان ارسنجان گفت: با هماهنگی مدیریت حفظ نباتات استان فارس فرمون جنسی سانتاموس ساخت کشور کانادا جهت رد یابی پروانه کرم گلوگاه انار در شهرستان ارسنجان نصب شد و در صورتی که دوام و ماندگاری این فرمون خوب باشد می توان از آن جهت جلب حشرات نر گرم گلوگاه انار استفاده کرد.
کارشناس مسئول حفظ نباتات شهرستان ارسنجان افزود: به این صورت که این فرمون باعث جلب حشره نر پروانه کرم گلوگاه انار می شود که خود باعث کاهش جفت گیری و تخم ریزی شب پره انار و نهایتا کاهش خسارت و آلودگی انار می شود.
تاثیر روش حذف پرچم در کاهش خسارت کرم گلوگاه انار
کرم گلوگاه انار مهمترین آفت باغهای انار در ایران است که ضمن تغذیه از میوه و افت کمی و کیفی محصول، باعث کاهش قابل توجهی در بازارپسندی میوه میشود. روشهایمختلفی از قبیل جمعآوری میوههای آلوده و مبارزه بیولوژیکی با استفاده از زنبور تریکوگراما مورد آزمایش قرار گرفته،ولی هیچکدام از این روشها کارایی لازم را نداشتهاند. یکی از روشهایی که میتواند ضمن حفظ ظاهر میوهها، از آلودگیآنها جلوگیری نماید، ممانعت از تخمگذاری شبپره و در نتیجه جلوگیری از ورود لاروهای آفت بهداخل میوه است. طیسال 1387 ، تاثیر دو نوع روش حذف پرچم (روش سنتی و روش حذف با دستگاه پرچم پاککن) در زمانهای مختلف،در باغ اناری واقع در منطقه ساوه مورد مقایسه قرار گرفت. در پایان فصل هنگام برداشت محصول، میزان آلودگی میوههادر تیمارها تعیین، و تجزیه و تحلیل دادهها اختلاف معنیداری را بین تیمارها نشان داد. در مقایسه میانگین تیمارها، متوسطآلودگی میوهها در تیمار شاهد 22 درصد بود، در حالی که کمترین میزان آلودگی در تیمار حذف پرچم در سه نوبتمتوالی به میزان 6 درصد مشاهده گردید که بیانگر کاهش 16 درصدی خسارت این آفت میباشد. با مقایسه میزان ریزشگل، میزان ترکیدگی میوه و مقدار آلودگی به آفت در تیمارهای مختلف، کاربرد روش حذف پرچم با دستگاه دستی درخردادماه بهترین کارایی را در کاهش خسارت آفت کرم گلوگاه انار دارد.
بررسی آزمایشگاهی تعيين دز مناسب پرتو گاما در عقيم سازی کرم
Ectomyelois ceratoniae Zell. ، گلوگاه
کرم گلوگاه انار به عنوان مهم ترین آفت انار در کشورمان، هر ساله خسارت زیادی (حدود ۴٠ درصد) بهباغات انار وارد می کند. با توجه به محل تخم ریزی شب پره ماده و رفتار تغذیه ای لارو، مبارزه شيميایی بااین آفت انجام نمی گيرد و روش های کنترل غير شيميایی موردمطالعه می باشند. در مبارزه ژنتيکی بااین آفت، اثر پرتوهای گاما روی فيزیولوژی و رفتار حشره مورد بررسی قرار می گيرد. در این تحقيق اثردزهای مختلف پرتو گاما روی شفيره های کرم گلوگاه انار مطالعه شد. لاروهای کرم گلوگاه انار از باغات انار۶۵ درصد ± ٢٩ درجه سانتيگراد، رطوبت نسبی ١٠ ± ساوه جمع آوری و در آزمایشگاه با شرایط ثابت حرارت ٢و روشنایی ١۶ ساعت روی غذای مصنوعی پرورش داده شدند. هشت جيره غذایی برای پرورش مورد٢٠٠ و ٣٠٠ ،١٠٠ ،٩٠ ،٨٠ ،٧٠ ، ۴ روزه نر و ماده تحت دزهای ٠ - ارزیابی قرار گرفت. سپس شفيره های ٣نر پرتو دیده، نر پرتو × گری قرار داده شدند، حشرات کامل خارج شده از شفيره در سه حالت، ماده پرتو دیدهماده پرتو دیده مورد بررسی قرار گرفتند و درصد تفریخ تخمهای گذاشته × ماده طبيعی و نر طبيعی × دیدهشده ارزیابی شد که نتایج زیر حاصل گردید.٨٠ و ٩٠ گری ماده ها تخم ریزی کردند و پس از تفریخ، مشاهده شد که بين این چهار دز ،٧٠ ، در دزهای ٠٢٠٠ و ٣٠٠ گری ماده ها تخم ریزی کردند ، از نظر درصد تفریخ تخم، اختلاف معنی دار بود. در دزهای ١٠٠ و ٩٠ گری ،٧٠ ،۶٠ ،۵٠ ، ٢ روزه نر و ماده نيز تحت دزهای ٠ - ولی تخم ها تفریخ نشدند. شفيره های ١۶٠ و ٧٠ گری ماده ها تخم ریزی کرده و تخمها ،۵٠ ، قرار گرفتند و همانند قبل بررسی شدند. در دزهای ٠فریخ شدند. در دزهای ٨٠ و ٩٠ گری ماده ها تخم ریزی کردند ولی تخم ها تفریخ نشدند. به این ترتيب با۴- ٢ روزه کرم گلوگاه انار نسبت به شفيره های ٣ - توجه به بررسيهای انجام شده پرتوتابی شفيره های ١ ٢ روزه با دز ٨٠ - روزه مقرون به صرفه تر بود و بهترین نتيجه زمانی بدست آمد که شفيره های نر و ماده ١٩٠ گری مورد پرتوتابی قرار گرفتند.
| |||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||
منابع
فصلنامه تخصصی تحقیقات حشرهشناسی جلد 1، شماره 2، سال 1388
سورف
سوروف با نام علمی Echinochloa crusgall -- تیره Poaceae گياه يکساله و چهارکربنه از تيره گندميان که به وسيله بذر تکثير می شود .برگهای سوروف پهن و دارای حاشيه زبر و سفت است وگل آذين اين گياه خوشه ای و به شکل سنبله غير متراکم در انتهای ساقه قرار دارد . سوروف در مناطق گرم و مرطوب می رويد و گياه هرز باغ ها , مزارع و در جوی های آب و باتلاق ها رشد می کند . اصولا گياهی مزاحم و بی مصرف است ولی گاهی می تواند مفيد باشدمثلا سوروف برای مناطق سيل خيز مناسب است. سوروف از علف های هرز مزارع برنج در شمال کشور و در تمام مناطق برنج کاری است و بيشتردر نواحی معتدل می رويد .
![]()
سوروف نوعی علف هرز خزانه برنج است. این علفها با جذب آب و مواد غذایی و همچنین نور و اشغال فضا، موجب ضعیف شدن نشاها میشوند. به علاوه، علفهای هرز موجود در خزانه، همراه نشاهای برنج به زمین اصلی راه یافته و باعث مشکلات بیشتر در مزرعه میشوند. زیرا در این مرحله، علفکشها روی آنها بیاثر بوده و باید با دست وجین شوند.
در ضمن علفهای هرز دیگری مانند انواع جگنها از جمله اویارسلام یک ساله، انواع پیرز، بعضی از پهن برگها ماند قاشق واش، با نشاهای برنج رقابت میکنند.
از زیان آور ترین علف های هرز مزارع برنج در دنیا است و در تمام شالیزار سراسر کشور پراکنده است.گیاهی یک ساله که ارتفاع ساقه آن تا دو متر می رسد. ساقه ضخیم و اسفنجی ، ریشه ها انبوه ، برگ باریک ، گل آذین خوشه ای فشرده ، خوشه ها متراکم ، دانه شبیه ارزن ، به رنگ خاکستری براق است. سوروف در مراحل اولیه رشد شبیه به برنج است و فرق آن با برنج در فقدان گوشوارک است . تکثیر از طریق بذر صورت می گیرد .
مبارزه اصلی با آن مکانیکی است تا هفته دوم پس از نشا با برنج رقابت خوبی دارد که اگر در این دوره کنترل شود مشکل ما حل می شود

سوروف (زرا ، وازمیل)
Echinochloa cruss- galiاز زیان آور ترین علف های هرز مزارع برنج در دنیا است و در تمام شالیزار سراسر کشور پراکنده است.گیاهی یک ساله که ارتفاع ساقه آن تا دو متر می رسد. ساقه ضخیم و اسفنجی ، ریشه ها انبوه ، برگ باریک ، گل آذین خوشه ای فشرده ، خوشه ها متراکم ، دانه شبیه ارزن ، به رنگ خاکستری براق است. سوروف در مراحل اولیه رشد شبیه به برنج است و فرق آن با برنج در فقدان گوشوارک است . تکثیر از طریق بذر صورت می گیرد .
مبارزه اصلی با آن مکانیکی است تا هفته دوم پس از نشا با برنج رقابت خوبی دارد که اگر در این دوره کنترل شود مشکل ما حل می شود

مبارزه شیمیایی :
مولی نیت(اوردرام 6 - دی): 5 تا 6 لیتر در هکتارمصرف می شود که مقدار مصرف 3 لیتردر هکتار قبل از نشاکاری ولی اگر بعد از نشا هم باشد می توان از آن استفاده کرد
ماچتی(بوتاکلر) : می توان 3 تا 13 وز بعد از نشا و به میزان 3 تا 5 لیتر در هکتا مصرف نمود. در هنگام مصرف آن سوروف باید در زیر آب قرار داشته باشدو 2 برگی باشد.
سوروف نوعی علف هرز خزانه برنج است. این علفها با جذب آب و مواد غذایی و همچنین نور و اشغال فضا، موجب ضعیف شدن نشاها میشوند. به علاوه، علفهای هرز موجود در خزانه، همراه نشاهای برنج به زمین اصلی راه یافته و باعث مشکلات بیشتر در مزرعه میشوند. زیرا در این مرحله، علفکشها روی آنها بیاثر بوده و باید با دست وجین شوند.
در ضمن علفهای هرز دیگری مانند انواع جگنها از جمله اویارسلام یک ساله، انواع پیرز، بعضی از پهن برگها ماند قاشق واش، با نشاهای برنج رقابت میکنند.
سوروف(دژگال)
سوروف(دژگال)
Echinochloa crus galli
Barnyard grass
علف هرزي يكساله،چهاركربنه كه با بذر تكثير مي يابد.از خانواده Poaceae كه يكي از مهمترين از علفهاي هرز مزارع برنج در شمال كشور و تمام مناطق برنجكاري جهان است كه بيشتر در نواحي معتدل تا معتدل گرم ميرويد. سوروف علف هرزي است رطوبت دوست كه در مراحل اوليه رشد شباهت زيادي به برنج دارد. اين دو گياه از روي گوشوارك و زبانك تشخيص داده ميشوند. بدين ترتيب كه در محل اتصال برگ به غلاف در برنج دو گوشوارك باليگول پرزدار و يك زبانك ديده ميشود.در حالي كه در سوروف گوشوارك و زبانك وجود ندارد.ارتفاع بوته هاي سوروف30تا120سانتي متر و گاهي به بيش از150سانتي متر ميرسد. طول برگهاي ان30تا50سانتي متر و عرض انها5تا15ميليمتر است.
گل آذين سوروف سنبله باز است، سنبلچه ها معمولاً در حول محور جمع شده كم و بيش منشعب و غالباً بدون رديف مشخص هستند.بين2.5تا 4ميليمتر طول دارند و به سهولت ميريزند. سنبلچه ها ريشك دارند، ريشكها نيز از لحاظ طول متفاوتند. بو ته هاي سوروف در يك مزرعه آلوده ميتوانند در هر متر مربع تا 20هزار بذر توليد كنند كه علاوه بر اينكه بر حسب نوع برنج و شرايط موجود خسارت آن به مزارع برنجكاري زياد است موجب از بين رفتن برنج نيز ميشوند.
ريشه هاي سوروف نيز بر اثر شخم از نقطه اي به نقطه ديگر رفته و موجب ازدياد آن در سطح وسيع ميشود. بذر سوروف در عمق بيش از5سانتي متر آب قادر به جوانه زدن نخواهد بود.
روشهاي کنترل:
براي مبارزه با اين گياه علاوه بر راه هاي مكانيكي يعني وجين كردن از روشهاي شيميايي نيز ميتوان استفاده كرد.از مولينيت به نسبت5-6ليتر در هكتار براي كنترل سوروف تا مرحله2برگي همچنين از انيلفوس به ميزان3ليتر در هكتار در مزارع برنج ميتوان استفاده كرد. همچنین از سموم بوتاکلر، تیوبنکارب، اگزادیازون، پرتیلاکلر، پروپانیل با توجه به برچسب سم میتوان استفاده کرد.
اثر بر همكنش فاصله كاشت و نيتروژن بر رشد و عملكرد برنج (.Oryza sativa L) در تراكم هاي مختلف دژگال
در سال 1377 آزمايشي در مركز تحقيقات كشاورزي كوشكك دانشگاه شيراز به منظور بررسي بر همكنش فاصله كاشت بوته هاي برنج و نيتروژن بر رشد و عملكرد برنج در قالب طرح تحقيقاتي كرت هاي دوبار خرد شده اجرا گرديد. عامل اصلي نيتروژن (صفر، 40، 80 و 120 كيلوگرم در هكتار نيتروژن خالص) و عامل فرعي فاصله كاشت بوته برنج (20×20 و 25×25 سانتي متر) و فاكتور فرعي– فرعي تراكم علف هرز دژگال (صفر، 10، 20، 30 و 40 بوته در مترمربع) بود. نتايج به دست آمده نشان داد كه با افزايش فاصله كاشت بوته هاي برنج از 20×20 به 25×25 سانتي متر، عملكرد دانه برنج افزايش يافت. همچنين با افزايش فاصله كاشت، از بين اجزاي عملكرد برنج، تعداد خوشه در هر بوته (11.7 در مقابل 13.7) و تعداد دانه در هر بوته (782.2 در مقابل 1202.7) به طور معني داري افزايش يافت. با افزايش تراكم دژگال عملكرد دانه (از 4328 به 2587 كيلوگرم در هكتار) به طور معني داري كاهش يافت. با افزايش كود نيتروژن، عملكرد دانه برنج (از 2818 به 3802 كيلوگرم در هكتار) افزايش يافت، اما بين سطوح 80 و 120 كيلوگرم نيتروژن در هكتار اختلاف معني داري مشاهده نشد. با اضافه شدن كود نيتروژن بازده كود كاهش يافت. افزايش كود نيتروژن، شاخص برداشت را كاهش داد اما اين كاهش معني دار نبود.
تعيين آستانه خسارت اقتصادي علفهاي هرز سوروف(Echinocloa crus-galli) در لوبيا درخشان
به منظور تعيين آستانه خسارت اقتصادي علفهاي هرز سوروف در تداخل با لوبيا آزمايشي به صورت بلوكهاي كامل تصادفي در سال زراعي 1380 در ايستگاه تحقيقات دانشكده كشاورزي دانشگاه فردوسي مشهد انجام شد. تيمارهاي آزمايش شامل تراكمهاي مختلف 10 ، 20 و 30 بوته در متر مربع سوروف بودند كه در تراكم ثابت 20 بوته در متر مربع لوبيا به صورت افزايشي اجراء شد.جهت تعيين شاخصهاي رقابتي علف هرز مذكور از مدل رگرسيوني استفاده شد. نتايج حاصل از داده هاي آزمايشي و مدل رگرسيوني دلالت برخسارت اقتصادي سوروف در لوبيا به ترتيب 0/04 و 0/22 بدست آمد كه با اعمال 90 درصد در كارايي كنترل اين مقدار در هر گونه صفر شد.
| بررسي اثر سورف بر عملکرد ارقام برنج | ||||
|
بررسي اثر سورف بر عملکرد ارقام برنج Study the effect of Barnyardgrass (Echinochloa crus-galli (L.) P.Beauv) on rice cultivars
بررسي اثر سورف بر عملکرد ارقام برنج اين آزمايش در سال 1385 در مزرعه آزمايشي در آمل انجام شد که در آن 6 رقم اصلاح شده (خزر، سپيدرود، نعمت، درفک، فجر و شيرودي) به همراه سه لاين اميدبخش (830، 841 و 843) و يک رقم بومي (ديلماني) به صورت آزمايش فاکتوريل در قالب طرح بلوک هاي کامل تصادفي ، با چهار تکرار و در تراکم مطلوب با و بدون سورف کشت شدند. تراکم سورف 20 بوته در متر مربع در نظر گرفته شد. در پايان فصل رشد، عملکرد دانه برنج در شرايط با و بدون رقابت و نيز ماده خشک کل سوروف اندازه گيري و سپس درصد کاهش عملکرد دانه در شرايط رقابت، شاخص رقابت (ci) و توانايي تحمل رقابت (awc) محاسبه شدند. نتايج نشان داد که بين ارقام و لاين هاي برنج لحاظ شاخص ci و awc و درصد کاهش عملکرد دانه تفاوت معني داري وجود داشت. لاين 843 داراي بيشترين شاخص رقابت (43/2) و توانايي تحمل رقابت (82) و کمترين درصد کاهش عملکرد (18 درصد) بود. در مقابل، رقم خزر داراي کمترين شاخص رقابت (32/0) و توانايي تحمل رقابت (5/49) و بيشترين درصد کاهش عملکرد (65/50 درصد) بود. در مجموع لاين 843 به عنوان يک رقم قوي و رقم خزر به عنوان يک رقم ضعيف در رقابت با سوروف ارزيابي شدند. واژه هاي کليدي: برنج، توانايي رقابتي و سوروف مقدمه : علف هاي هرز از طريق رقابت با گياه زراعي در استفاده از مواد غذايي خاک، رطوبت و نور سبب کاهش عملکرد گياهان زراعي از جمله برنج مي گردند. از بين علف هاي هرز برنج، سوروف مهم ترين و خطر ناکترين علف هرز برنج در دنيا است (holm et.al., 1977) . گزارش شد که در اثر رقابت برنج با سوروف، تعداد پنجه بارور، تعداد دانه در خوشه، وزن هزار دانه و در نتيجه عملکرد برنج به ميزان 2000 تا 4000 کيلوگرم در هکتار کاهش يافت (holm et al., 1977). بنابراين مديريت علف هاي هرز و به خصوص سوروف يکي از عناصر کليدي در زراعت برنج مي باشد. در سال هاي اخير مصرف بيش از حد علف کس ها علاوه بر مشکلات زيست محيطي سبب گسترش مقاومت علف هاي هرز به علف کش ها گرديده است. با توجه به گزارش هاي اخير مبني بر سازگاري بين توانايي رقابتي ارقام و پتانسيل عملکرد، کاشت ارقام با توانايي رقابتي بيشتر در برابر علف هرز، ابزاري کم هزينه و مطمئن در مديريت تلفيقي علف هاي هرز مي باشد (zhao et.al., 2006) . توانايي رقابتي ارقام گياهان زراعي با علف هرز شامل دو جزء است: يکي توانايي تحمل فشار رقابتي از رسوي علف هرز يعني توانايي حفظ عملکرد بالا در حضور علف هرز و ديگري توانايي جلوگيري از رشد علف هرز، يعني توانايي گياه زراعي جهت کاهش بيومس و توليد بذر علف هرز (jannink et at.,2000) . مطالعه حاضر، با هدف تعيين توانايي رقابتي ارقام برنج و معرفي ارقام با قدرت رقابتي بالا و همچنين ارزيابي عملکرد ارقام در شرايط با سوروف انجام شد. مواد و روش ها : اين تحقيق طي سال زراعي 86-1385 در مزرعه آزمايشي در شهرستان آمل به صورت فاکتويل در قالب طرح بلوک هاي کامل تصادفي در چهار تکرار به اجرا درآمد. تيمارهاي آزمايش شامل ده رقم برنج و در شرايط با و بدون علف هرز سوروف بودند. ارقام مختلف برنج شامل ارقام اصلاح شده (خزر، سپيدرود، نعمت، درفک، فجر، شيرودي)، لاين هاي اميد بخش (830 ، 841 و 843) و رقم ديلماني (رقم بومي) بودند که با تراکم 16 بوته در مرت مربع براي لاين ها و ارقام اصلاح شده و 25 بوته در متر مربع براي رقم بومي نشا شدند. علف هرز سوروف با تراکم ثابت 20 بوته در متر مربع در کنار برنج نشاء شد. ابعاد هر کرت آزمايشي 6×3 متر بود. خزانه برنج براي تمامي ارقام در تاريخ 23/1/1385 احداث و نشاکاري در تاريخ 10/3/1385 انجام شد. گياهچه هاي سوروف نيز به صورت تک بوته و با فاصله يکسان در اطراف هر کپه برنج نشاء گرديد. در پايان فصل رشد، عملکرد دانه و عملکرد بيولوژيک برنج و بيوماس سوروف با حذف اثر حاشيه اي در هر کرت اندازه گيري شد. همچنين شاخص رقابت از طريق معادله ارائه شده توسط زند و همکاران (1380) و شاخص توانايي براي تحمل رقابت با استفاده از معادله واتسون (watson et.al.,2002) محاسبه شد. تجزيه و تحليل آماري داده ها با استفاده از نرم افزار sas انجام شد. نتايج و بحث: عملکرد دانه برنج و توانايي رقابتي ارقام آن: نتايج تجزيه واريانس نشان داد که اثر متقابل ارقام و سوروف براي عملکرد دانه و بيوماس سوروف معني دار بود. بنابراين، صفات فوق در شرايط با و بدون علف هرز مورد تجزيه واريانس قرار گرفتند (سلطاني، 1385). مقايسه ميانگين تيمارها نشان داد که در شرايط عدم رقابت با سوروف، ارقام شيرودي و نعمت و لاين 830 داراي بيشترين عملکرد دانه بودند، در حالي که در شرايط رقابت، بيشترين عملکرد مربوط به رقم شيرودي و لاين 843 بود (جدول1). کاهش عملکرد دانه برنج، در شرايط رقابت با سوروف قبلاً نيز گزارش شد (zhao et.al., 2006) يکي از دلايل افت عملکرد دانه در اثر رقابت سوروف با برنج، کاهش دسترسي برنج به عناصر غذايي (خصوصاً نيتروژن و فسفر) و نور مي باشد (holm et al.,1977). درصد کاهش عملکرد دانه (جدول1) در بين ارقام و لاين ها تحت شرايط رقابت تفاوت معني داري داشت (از 18 درصد در لاين 843 تا 65/50 درصد در رقم خزر). بنابراين عمس العمل ارقام از لحاظ جلوگيري از کاهش عملکرد در شرايط رقابت با سورف (awc) متفاوت بود. در ميان ارقام و لاين هاي مورد بررسي در اين آزمايش ، لاين 843 و رقم خزر به ترتيب داراي بيشترين و کمترين ميزان شاخص توانايي تحمل علف هرز بودند. همچنين لاين 843 داراي بيشترين مقدار شاخص رقابت (43/2) بود که دليل آن را مي توان به عملکرد دانه بالاتر اين لاين تحت شرايط رقابت با سوروف (4549 کيلوگرم در هکتار) و بيوماس نسبتاً پايين سوروف در حضور اين لاين (1209 کيلوگرم در هکتار) نسبت داد. در مقابل رقم خزر داراي کمترين مقدار شاخص رقابت (32/0) بود (جدول1). نتايج فوق بيانگر اين حقيقت است که در بين ارقام برنج از لحاظ توانايي رقابتي اختلاف معني داري وجود دارد. نتايج مشابهي نيز توسط ساير محققان در ارقام برنج (fischer et al.,1997) در سويا (jannink et al., 2000) و در گندم (زند وهمکاران، 1380) گزارش شده است. اين مر به علت تفاوت ارقام در ويژگي هايي از قبيل ارتفاع گياه و سرعت رشد اوليه آن، تعداد پنجه، زمان شروع پنجه زني ، شاخص سطح برگ و سطح ويژه برگ مي باشد (zhao et al., 2006) . جدول 1- مقايسه ميانگين عملکرد دانه و بيولوژيک برنج، شاخص رقابت، شاخص توانايي تحمل رقابت و بيوماس سوروف در هر ستون تفاوت بين دو ميانگين که حداقل داراي يک حرف مشترک باشند، از نظر آماري معني دار نيست (آزمون دانکن 5%=p) | ||||
| اصغري جعفر,موسوي سيديوسف | |
استفاده بهينه از قدرت دگر آزاري گياهان زراعي در كنترل علفهاي هرز، از اهداف مهم مديريت تلفيقي آفات است كه علاوه بر كاهش مصرف سموم و حفظ سلامت محيط زيست، تقليل هزينه هاي توليد و نيز پايداري سيستم هاي كشاورزي را به دنبال دارد. به منظور تعيين ميزان دگر آزاري ارقام برنج، بذور نيشدار شده 10 رقم از برنج هاي تحت كشت مناطق شمالي كشور شامل طارم عطري، بينام، دشت ، بجار، اوندا، هراز، نعمت و لاين هاي 424 و 7165 به صورت كاشت مخلوط با گياهچه علفهاي هرز سوروف و اويار سالم بذري در گلدان هاي حاوي خاك استريل شده شاليزار مورد بررسي قرار گرفتند. ده روز پس از رويش علفهاي هرز كليه تيمارها تعيين و ميزان كاهش آنها در مقايسه با شاهد علفهاي هرز (شاهد)، شاهد حاوي علفهاي هرز و رقم غير دگر آزار آمل 3 (شاهد همراه) ثبت گرديد.
نتايج آزمايش حاكي از وجود كاهش رشد اجزاي گياهچه علفهاي هرز در اكثر ارقام برنج تحت اثر مواد دگر آزار بود. دامنه كاهش وزن ترسوروف در مقايسه با شاهد و شاهد همراه از 42 تا 72% و ميزان كاهش طول گياهچه آن در مقايسه با شاهد از 31 تا 55% متغير و در مقايسه با شاهد همراه 23% بود. در حاليكه دامنه كاهش وزن تر اوريا سلام در مقايسه با شاهد و شاهد همراه به ترتيب از 30 تا 52% و 47 تا 63% و ميزان كاهش طول گياهچه مزبور به ترتيب از 31 تا 55% و از 26 تا 52% متغير بود. در مجموع ارقام طارم عطري، نعمت و دشت به عنوان رقمهاي داراي بيشترين فعاليت دگرآزاري شناخته شدند.
منابع
1- زند، ا.، ع. کوچکي، ح. رحيميان مشهدي و م. نصيري محلاتي ، 1380. بررسي روند تغييرات 50 ساله خصوصيات مرفولوژيک و فيزيولوژيک در برخي از گندم هاي ايران. علوم و صنايع کشاورزي. ش 16.ص161-171.
2- سلطاني، ا. 1385. تجديد نظر در کاربرد روش هاي آماري در تحقيقات کشاورزي. جهاد دانشگاهي مشهد، 74 صفحه
ببینید و دل مبندید![]()
چشم بیاندازید و دل مبازید که![]()
دیر یا زود باید گذاشت وگذشت![]()
سال نو شمسی بر همه دوستان گلم مبارک باشه امیدوارم هر جایی که هستید خوش وخرم باشید.
ازخداوند بزرگ برای شما آرزوی خوشبختی و آرامش در زندگی را دارم.
نوروز۱۳۸۹برهمتون مبارک.به اندازه دنیادستون دارم.![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
![]()
ویروسها از جلبکها ، قارچها و گلسنگها ، خزهها ، سرخسها و گیاهان عالی جدا شدهاند، ولی در گیاهان عالی بیش از گیاهان پست مورد مطالعه قرار گرفتهاند. ویروسها به گیاهان زراعی خسارت عمدهای وارد میسازند. در گیاهان بر خلاف گروههای دیگر ، ویروسهای رشتهای دراز زیاد دیده میشود. ماده ژنتیکی اکثر ویروسهای گیاهی آر ان آاست، ولی در گروه ویروس موزائیک گل کلم از دی ان آ تشکیل شده است. ژنوم در چند ویروس گیاهی به صورت قطعاتی در پیکرهای مجزا وجود دارد، به این گروه اصطلاحا ویروسهای چند جزئی نام نهادهاند.
تاریخچه ویروسهای گیاهی از بسیاری جهات به ویروسهای جانوری و باکتریایی شباهت دارند. مطالعه درباره این نوع وجه اشتراک خصوصا بعد از سال 1925 که بلاک و براکه ثابت کردند که ویروس غده زخمی شبدر نه تنها در گیاه ، بلکه در زنجره ناقل خود نیز تکثیر مییابد، با سرعت بیشتری دنبال شد. بنابراین میزبانهای بعضی ویروسها را میتوان هم در جهان جانوران و هم در جهان گیاهان یافت.
شناسایی علایم ناشی از ویروسهای گیاهی در میزبان آلوده شدن گیاهان به بیماریهای ویروسی معمولا بوسیله ساییدن مستقیم مایع آلوده بر سطح برگ انجام میشود. در این حالت باید دیواره یاختهای یاختههای گیاهی به طریقی پاره شود تا ورود ویروس آسان گردد. پس از ورود ویروسها در اکثر موارد ، در محل ورود به برگ تغییر شکل حاصل میشود. علایم ظاهر شده بر روی برگ بیشتر به صورت لکههای سبز کم رنگ و پر رنگ به شکل موزائیک یا زخمهای موضعی است. گل گیاهان نیز ممکن است آلودگی ویروسی را به صورت تغییر رنگ ظاهر کند. مثلا در لاله یا شب بوی آلوده بخشی از گلبرگها سفید میشود.ظهور علایم بیماریهای ویروسی نه تنها به ویروس و میزبان ، بلکه به عوامل محیطی و غذای گیاه نیز بستگی دارد. بعضی از بیماریهای ویروسی بطور مکانیکی از طریق مالش بر روی برگ منتقل نمیشوند و برای این منظور به موجودات زنده متکی هستند. چون اکثر ویروسهای گیاهی علائمی تقریبا همانند در گیاه ظاهر میسازند، بنابراین تشخیص آنها از روی علائم کار دشواری است. در این گونه موارد به خواص ذاتی آنها مانند خواص ریخت شناسی ، نوع اسید نوکلئیک و ... توجه میشود.
گروههای اصلی ویروسهای گیاهی چون پارهای از ویروسهای گیاهی چندان شباهتی به ویروسهای دیگر ندارند، بنابراین گروه مستقلی را تشکیل میدهند، ولی بعضی دیگر دارای خصوصیات مشترک بوده و میتوان آنها را در یک گروه جای داد. این گروهها به شرح زیر هستند:
ویروسهای میلهای یا رشتهای
ویروسهای ایزومتریک
ویروسهای باسیلی شکل
ویروئیدها که بیماریزاهایی شبیه ویروسها هستند که در میزبان خود نوکلئو پروتئین تولید نمیکنند. ویروئید غده دوکی سیب زمینی بیش از سایر عوامل بیماریزای این گروه مطالعه شده است.
کشت ویروسهای گیاهی برای کشت و ازدیاد ویروسهای گیاهی معمولا از میزبانهایی استفاده میشود که اولا ویروس در آنها به صورت فرا گیر در آید، ثانیا قدرت تکثیر ویروس در گیاه زیاد باشد. یاخته گیاهی به علت دارا بودن دیواره سخت سلولزی نسبت به اکثر ویروسها غیر قابل نفوذ است. برای این منظور باید دیواره یاخته را خراش داد، این عمل با استفاده از مواد خراش دهندهای مانند پودر کربوراندم صورت میگیرد.گیاهان جوان را پس از دریافت ویروس در محلی با شرایط محیطی مناسب یعنی در دمای 20 تا 25 درجه سانتیگراد و رطوبت و نور کافی ، نگهداری میکنند. برای کشت ویروسها ، از قطعات جدا شده گیاهی و یا از مجموعه یاختههایی که بطور نامنظم رشد یافتهاند (بافت پینهای یا کالوس) استفاده میشود. چون ویروس قادر به زیستن در بافت مریستمی گیاه نیست، با جدا کردن قطعهای از مریستم گیاهی که مشکوک به آلودگی است و کشت آن در محیط غذایی میتوان گیاه جدید عاری از ویروس تهیه کرد.
صفات اختصاصی آلودگی ویروسهای گیاهی از صفات آلودگی ویروسهای گیاهی این است که گیاه در سراسر عمر خود آلوده باقی خواهد ماند. گیاهان برعکس مهره داران ، پادتن تولید نمیکنند و در نتیجه قادر به بی اثر کردن ویروسها در بدن خود نیستند. بدین جهت ویروسها تا مدت نامحدودی در گیاه باقی میمانند و خسارتهای زیادی خصوصا به گیاهانی که از طریق رویشی تکثیر مییابند، وارد میکنند. اساسا ویروسها تمام بافتهای گیاهی غیر از بافت مریستمی را مورد حمله قرار میدهند.
اثر ویروس بر شکل ظاهری گیاه شکل ظاهری گیاهان بر اثر حمله ویروس تغییر میکند و البته این تغییرات دنباله تحولاتی است که در اندرون گیاه به وقوع میپیوندد. علایمی که ظهور میکنند، برحسب نوع میزبان ، مدت پس از آلودگی ، نژاد ویروس و شرایط محیطی فرق میکند.
نکروزه شدن شدیدترین اثر ویروسهای گیاهان ، کشتن یاختههاست. قطر زخمهای موضعی که در نتیجه نکروزه شدن بافت در برگ بوجود میآیند، به نوع ویروس و نوع گیاه و شرایط محیط بستگی دارد. مرگ بعضی از اندام گیاه و یا مرگ گیاه بطور کلی در برخی از بیماریهای ویروسی ، متداول است.
اثر بر شکل گیاه و نحوه رشد آن بیشتر ویروسها رشد میزبان را کم میکنند، ولی در بعضی حالات باعث رشد غیر عادی آن میشوند. برگها بر اثر حمله ویروس تغییر شکل میدهند. تولید گل و دانه نیز در گیاهان آلوده کاهش مییابد. اثر ویروس بر کاهش میزان محصول کاملا نمایان است.
اثر بر رنگ گیاه از علایم اولیه آلودگی فراگیر ویروسی در اکثر گیاهان بیرنگ شدن رگبرگها در جوانترین برگهاست و برگها پس از رشد ، حالت موزائیکی یا ابلقی پیدا کرده و یا زرد میشوند. بسیاری از ویروسهای مولد موزائیک بر رنگ گلها اثر میگذارند.
اثر ویروس بر فیزیولوژی گیاه میزبان
بیشتر فرایندهای فیزیولوژیک تحت تاثیر ویروس قرار می گیرند. مقدار ازت به صورت آمونیوم و همچنین فسفر به صورت ترکیبات اسید نوکلئیک در گیاه توتون آلوده افزایش مییابد.
در برگ گیاهان آلوده به ویروسهای مولد زردی ، مقدار زیادی گلوکز ، فروکتوز و ساکارز جمع میشوند. ظاهرا علت اساسی تجمع مواد قندی ایجاد مقاومت در دمبرگ هنگام انتقال مواد است.
شدت تنفس در گیاه آلوده معمولا افزایش مییابد و گاهی تا 50 درصد بیش از گیاه سالم میشود. شدت تنفس گیاه بر اثر ویروسهایی که علایم شدیدی از خود نشان میدهند، زیادتر است و هر گاه علایم خفیف باشند، افزایش در تنفس احساس نمیشود
ریزوسـفر منطقهای از خاك اطرف ریشه است كه ریزجانداران موجود در آن هم از نظر كمی و هم از نظر تنوع و تركیب گونهای تحت تأثیر فعالیتهای حیاتی ریشه هستند. از طرف دیگر این میكروارگانیسمها نیز به نوبه خود باعث تغییرات فیزیولوژیكی و مورفولوژی در گیاه گشته و مجموعه این تغییرات روی رشد، تغذیه و سلامت گیاه اثر مثبت میگذارند وبه طور كلی تحت عنوان كلی باكتریهای افزاینده رشد (Plant Growth Promoting Rhizobacteria) PGPR قرارمیگیرند. یكی از كاربردهای مهم این باكتریها استفاده از آنها در مبارزه بیولوژیك با عوامل بیماریزا میباشد. امتیازات عمده مبارزه بیولوژیك نسبت به مبارزه شیمیایی به قرار زیر است:
• ریزجانداران مفید از قبل در دسترس هستند؛ یعنی، احتیاج به ساختن و تولید آنها نیست و فقط بایستی جداسازی شوند.
• ریزجانداران مفید میتوانند تكثیر و انتشار یابند.
• آفات و بیماریها به كندی قادرند در برابر این نوع مبارزه مقاومت پیدا كننند (یكی از نقطه ضعفهای مبارزه شیمیایی مقاومت پیدا كردن آفات و عوامل بیماریزا نسبت به مبارزه در طی زمان میباشد).
• این نوع مبارزه از به وجود آمدن مشكلات زیست محیطی ناشی از به كار بردن آفت كشها و سموم جلوگیری به عمل میآورد و در حقیقت توسعه این روش گامی مثبت در راستای كشاورزی پایدار و ارگانیك میباشد.
• تاریخ ثبت شده مربوط به مبارزه بیولوژیك به حدود سال 1762 میلادی میرسد سالی كه برای مبارزه با ملخ قرمز، پرندگان شكارچی را به جزیره موریس در اقیانوس هند وارد كردند. البته این مبارزه نیز دارای نقاط ضعفی میباشد مانند:
• مبارزه كند است و عوامل بیولوژیك سرعت تاثیر آنی ندارند.
• غالباً غیر قابل پیشبینی است و عوامل مختلفی مانند اقلیم، نوع خاك، میكرو فلورخاك و … روی آن اثر دارد
• احتیاج به نظارت متخصص دارد.
خصوصیات میكروارگانیسمها: خصوصیات میكرو ارگانیسمهای ریزوسفری برایl مقابله با عوامل بیماریزا و آفات عبارتند از:
الف ـ توانایی بقاء: چنانچه در نظر داشته باشیم جمعیت آفت یا عامل بیماریزا را پائین نگه داریم میكروارگانیسم مقابله كننده باید در مواقع كم بودن میزبان به بقای خود ادامه دهد.
ب ـ اختصاصی بودن میزبان: به طور كلی بعضی از میكروارگانیسمها كه اثر بازدارنده روی رشد و فعالیت پاتوژنهای گیاهی خاصی دارند خیلی دقیقتر از آنهایی كه چند میزبانه هستند در برابر تغییرات تراكم جمعیت میزبان عكسالعمل نشان میدهند.
ج ـ توان افزایش جمعیت در كوتاه مدت: تعداد زیاد نسلها در سال و باروری زیاد از خواص مفید آن دسته از دشمنان طبیعی است كه علیه آفت یا عوامل بیماریزا به كار میروند.
د ـ تطابق با اقلیم و زیستگاه: ریزجانداران كه برای مقابله بیولوژیك با عوامل بیماریزا به كار میروند باید قادر باشند خود را در حداقل زمان با اقلیم؛ شرایط آب و هوایی و خاك منطقه وفق دهند و قادر به رشد و نمو باشند.
هـ ـ سهولت تكثیر: ریزجانداران مفیدی كه برای مقابله با پاتوژنهای گیاهی به كار میروند باید به راحتی در محیط آزمایشگاه تكثیر یابند و بتوان آنها را در یا روی محیط غذایی مصنوعی كشت و تكثیر داد تا به حد اشباع و تلقیح برسند.
و ـ تحرك: ریزجاندار مورد نظر باید از تحرك كافی برخوردار باشد تا بتوانند خود را به منطقه مورد نظر برسانند.
انتخـاب یكl عامل كنترل بیولوژیك: در حین انتخاب یك ریزجاندار به عنوان عامل كنترل بیولوژیك، باید مطمئن بود كه شرایط طبیعی كه بر آن زیست محیط حاكم است تأثیر نامطلوبی روی كلونی سازی عامل كنترل بیولوژیك، رشــد و فعالیت آن نـمیگذارد. عواملی مانند پتانسیل ماتریك، درجه حرارت، pH، و نوع خاك تاثیر عمیقی بر سرنوشت یك ریزجاندار وارد شده یك زیست محیط بـه جای میگذارند. چنانچه ریزجاندانی كه به عنوان عامل كنترل بیولوژیك در آزمایشهای گلدانی در محیط آزمایشگاه مناسب تلقی شدهاند به طور نا مطلوبی تحت تاثیر شرایط متفاوت محیط قرار گیرند، در این صورت سویههایی باید مورد استفاده قرار گیرند كه حساسیت كمتری دارند. عوامل زنده ومحیطی زیادی وجود دارند كه فعالیت كلونی سازی یك عامل كنترل بیولوژیك را تحت تاثیر قرار میدهندكه در جدول زیر به ذكر تعدادی از آنها پرداخته شده است.
جدول1 ـ فاكتورهایی كه بر بقای طولانی مدت عوامل كنترل بیولوژیك موثر هستند (علوی و آهونمنش، 1376)
|
عوامل زنده |
عوامل غیر زنده |
|
پتانسیل كلونی سازی در محیط رشد |
بافت وساختمان خاك(نوع خاك) |
|
رقابت |
میزان رطوبت |
|
ژنوم میزبان |
درجه حرارت خاك |
|
مقاومت عامل بیماریزا در برابر عامل كنترل بیولوژیك |
pH |
|
سرعت تحرك میزبان |
حاصلخیزی خاك |
جدول 2- فاكتورهایی كه بر سرعت تاثیر گذاری عامل كنترل بیولوژیك موثر است (علوی و آهونمنش، 1376)
|
عامل بیماریزا |
عامل كنترل بیولوژیك |
|
میزان رشد |
زمان جوانه زنی و بهبودی |
|
میزان حفاظت جایگاه اكولوژیك از عامل بیماریزا |
خروج از تركیب (مایه تلقیح) |
|
|
حركت بسوی منطقه عمل |
|
|
زمان مضاعف شدن (نرخ رشد خطی) |
مقتضیات تجاری: عوامل كنترل بیولوژیك بایستی همانگونه كه درl آزمایشگاه موثر و مفید هستند به صورت تولید انبوه و در بازار نیز همین گونه مؤثر باشند. یك عامل كنترل بیولوژیك با طیف فعالیت نسبتاً وسیع، شانس عرضه در یك بازار بزرگ را بیشتر از یك عامل كاملاً اختصاصی داراست. تاثیر عوامل كنترل بیولوژیك باید با كنترل شیمیایی برابری كند اگر چه این امر ممكن است یك معیار قابل انعطاف باشد. عوامل كنترل بیولوژیك باید آنقدر در محیط زیست دوام داشته باشد تا وظیفهاش را به نحو مطلوب انجام دهد. این عامل همچنین باید تاثیر ثابتی داشته باشد. همچنین باید با استفاده از تكنولوژی متداول، قابل كاربرد در جایگاه اكولوژیك هدف باشد (علوی و آهونمنش، 1376).
جدول 3 ـ شرایط لازم برای موفقیت تجاری یك عامل كنترل بیولوژیك
(علوی و آهونمنش، 1376)
|
1- بازار مناسب وكارآمد |
6- تمایزمحصول |
|
2- عملكرد وپایداری بالا |
7- تولید آسان و ارزان |
|
3- تداوم اثر |
8- حداقل هزینه سرمایه |
|
4- ایمنی |
9- عرضه با استفاده از تكنولوژی متداول |
|
5- ثبات |
10-میكروارگانیسم مستقر وبومی |
باكترئوسینها: تولید باكترئوسین توسط باكتریهای ریزوسفری كهl جزء متابولیتهای ثانویه میباشد فقط در شرایط خاصی تولید و تجمع مییابند. باكترئوسینها گروهی از بازدارندههای پپتیدی میباشند كه توسط باكتریهای اسید لاكتیك همانند سودوموناسها، اگروباكتریوم و باسیلوسها تولید میگردد و بر روی انواع باكتریها با قرابت و خویشاوندی نزدیك بر خود آنها اثر سمی دارد همانند اثر یك گونه برروی گونه دیگر یا یك سویه بر روی سویه دیگر از یك گونه. به طور كلی باكترئوسینها را میتوان به سه دسته تقسیم نمود. گروههای پیتیدی مقاوم به حرارت، گروههای پروتئینی ناپایدار در برابر حرارت و آنتی بیوتیكها
(Xu et al., 2002). باكترئوسین تولید شده توسط سودوموناس آئروجینوسا (Pseudomonas aeruginosa) پیوسین (Pyocin) نام دارد كه بروی سویههای دیگر سود و موناس كه بیماریزا میباشند ائر منفی و بازدارنده دارد (Michel and Baysse, 2002). تولید آنتی بیوتیك به نام آگروسین توسط سویهای خاص از اگروباكتریوم به نام Agrobacterium radiobacter K84 گزارش شده است كه بروی گونه دیگر از اگروباكتریوم به نام Agrobacterium tumefaciens كه عامل بیماری گال طوقه در درختان میوه همانند هلو و گیلاس میباشد اثر منفی دارد. ازتوباكتر كروكوكوم نیز با تولید آنتی بیوتیكهای ضد قارچی از پوسیدگی بذر و نهال جلوگیری به عمل میآورد. باكتری سودوموناس فلورسنس با تولید آنتی بیوتیك فنازین میتواند عامل بیماری پا خوره در گندم و جو را از بین ببرد.
كنترل بیماریهای گیاهی: ازاهداف مهم مطالعات ریزوسفری كنترل جامعه میكروبی وl شناخت اثرات متقابل آنها در جهت تغذیه بهتر گیاه وحفظ سلامت گیاه میباشد. جهت كنترل بیماریهای گیاهی سـه راهكار عمده وجود دارد.
1ـ جلوگیری از برخورد عامل بیماریزا و میزبان: این استراتژی به صورت كلان مطرح است و طالب برنامه ریزیهای دقیق و مراقبتهای دائمی است تا از تماس عامل بیماریزا و میزبان جلوگیری به عمل آید.
2ـ انهدام و از بین بردن عامل بیماریزا: مبارزه شیمیایی در حال حاضر یكی از رایجترین روشها برای كنترل بیماریهای گیاهی میباشد. یكی از محاسن این روش سرعت عمل آن میباشد ولی به دلیل مشكلات زیست محیطی و برهم خوردن تعادل اكولوژیك، توسعه این روش مناسب به نظر نمیرسد.
تقویت میزبان: به علت مشكلات و محدودیتهای موارد قبل، راهكار تقویت میزبان بیش از پیش مورد توجه قرار گرفته است. تقویت میزبان با روشهای مختلفی انجام میپذیرد كه «مقاومت القایی» یكی از آنهاست. بررسی مقاومت القایی ثابت كرده است كه پدیده القای مقاومت گیاهان در برابر عوامل بیمایزا از طریق مسیرهای بیولوژیك متفاوتی ایجاد میشود كه مقاومت اكتسابی سیستمی(ایمن سازی) از مهمترین آنهاست (روح پرور و محمدی، 1380). با وجود اهمیت زیاد این پدیده در گیاهان و استفادههای عملی كه میتواند در كنترل بیماریهای گیاهی، داشته باشد، تاكنون كمتر مورد توجه بوده است. در سال 1933، چستر (Chester) این پرسش را مطرح كرد كه «آیا ایمنی اكتسابی از نوع جانوری، در گیاهان نیز وجود دارد» با انجام تحقیقات بعدی او شواهد قاطعی مبنی بر تایید چنین فرآیندی در گیاهان به دست آورد و اظهار داشت كه: «ما بایستی نسبت به روش و حالات ویژه ایمنی اكتسابی در سلسله گیاهان آگاهی یابیم». وی سه فرآیند زیر را در ظهور ایمنی اكتسابی دخیل میداند:
• حفاظت تقاطعی ویروسی.
• مقاومت القایی سیستمیك (ISR)
• آنتاگونیسم باكتریایی و قارچی
l حفاظت تقاطعی ویروسی: حفاظت تقاطعی كه ویروسهای زنده ضعیف شده طی چندین نسل به سیستم كشاورزی تلقیح میشود، باعث بوجود آمدن مقاومت گیاه در برابر ویروس خاص و بیماری مشخصی میگردد. استفاده ازویروسهای ضعیف شده برای كنترل ویروسهای بیماریزا مانند ویروس موزائیك توتون وویروس تریستزای مركبات نیز موفقیتهای تجاری به همراه داشته است. در این حالت مقاومت حالت اختصاصی دارد.
مقاومت سیستمیك القاییl Induced Systemic Resistance (ISR): دومین پدیده یعنی مقاومت سیستمیك القایی یا به طور خلاصهISR یك واكنش گیاهی میباشد كه در این روش مقاوت با آلودگی اولیه به پاتوژن به وجود میآید وحالت غیراختصاصی دارد در حالی كه در روش حفاظت تقاطعی ویروسی حالت اختصاصی در مقاومت وجود دارد. هر چند انواع مختلفی از فرآیند ISR در گیاهان وجود دارد اما آنچه به طور وسیعی مورد مطالعه قرار گرفته است مقاومت اكتسابی سیستمیك SAR میباشد.
مقاومت سیستمیك اكتسابی (SAR): مقاومت سیستمیك اكتسابیl (SAR) عبارت است از مسیر مشخص انتقال سیگنال كه نقش مهمی را در توانایی گیاهان برای دفاع از خود در مقابل عوامل بیماریزا ایفاء می كند. این مسیر با بروز عكسالعمل بافت مردگی در گیاه فعال میشود كه میتواند حاصل از یك واكنش فوق حساسیت تا لكه نكروتیك بیماری باشد. از سوی دیگر طی فرآیند مقاومت اكتسابی سیستمیك ژنهایی كه به ژنهای SAR معروفند بیان میشوند و همه ژنهای مربوط به دفاع فعال نمیشوند. لذا در واكنش SAR در مقایسه با سایر واكنشهای مقاومت گیاهان طیف معینی از ژنهای فعال قابل تشخیص هستند.
نشانگرهای ملكولی برای SAR: آلودگی به پاتوژن مجموعه ای ازl تغییرات بیوشیمیایی و فیزیولوژیكی دفاعی را در میزبان موجب میشود. كه عبارت است از: مرگ و یا افزایش اكسیداسیون در سلول، تولید كالوس و لیگنین و سنتز فیتوآلكسینها و پروتئینهای جدید. برای تشخیص SAR از سایر واكنشهای القایی مقاومت در گیاهان، تلاش وسیعی برای شناسایی و جداسازی نشانگرهای بیوشیمیایی اختصاصی، انجام شده است. چون این نشانگرها پروتئینی هستند و سنتز آنها توسط ژنهای SAR انجام میپذیرد لذا به پروتئینهای SAR معروف هستند. بسیاری از پروتئینهای SAR جزء پروتئینهای مربوط به بیماریزایی هستند و فعالیت آنها به شدت با ظهور مقاومت در گیاه مرتبط است.
نقش اسید سالیسیلیك در انتقال سیگنال SAR: بعضی از مواد مثل اسیدl سالیسیلیك دارای یك نقش اساسی در انتقال سیگنال SAR و مقاومت به بیماری است وتجمع آن برای القای SAR ضروری میباشد (روح پرور و محمدی ،1380). به عنوان نمونه درمورد گیاه توتون وخیار پس از آلودگی به عامل بیماریزا غلظت اسید سالیسیلیك چند صد بار افزایش یافته و با مقاومت اكتسابی سیستمیك در گیاه رابطه مستقیم دارد. پاشیدن اسیدسالیسیلیك بر روی گیاهانی مانند خیار، فلفل، تربچه و گوجه فرنگی باعث افزایش مقاومت این گیاهان در مقابل بیماریها گشته است(Reddy et al., 2002).
نحوه اثر اسید سالیسیلیك: مكانیسم القای SAR توسط اسید سالیسیلیك هنوز به درستی شناخته نشده است. آزمایشها نشان دادهاند كه غلظتهای بالایی از H2 O2 برای القای سنتز اسید سالیسیلیك به وجود میآید كه احتمال میرود H2O2 از طریق القای اسید سالیسیلیك تجمع پروتئینهای بیماریزایی را موجب میشود. از سوی دیگر دیده شده است كه اسید سالیسیلیك با دارا بودن قابلیت اتصال به یك پروتئین با نقش كاتالازی میتواند روی فعالیت آن اثر بازدارندگی داشته باشد. با جلوگیری از كاتالیز H2O2 سبب افزایش سطوح آن شود و در برگهای غیر آلوده اتصال اسید سالیسیلیك با یك گیرنده میتواند بیان ژن SAR را القا كند. غلظتهای بالای اسید سالیسیلیك در اطراف محلهای آلودگی ممكن است از فعالیت كاتالاز و سایر اكسیدورداكتازها جلوگیری كند و این بازدارندگی فعالیت كاتالاز میتواند نیم عمر H2O2 را طولانی كند و منجر به گسترش واكنشهای اكسید كننده شود. این گونه واكنشها در محل حمله پاتوژن پس از ایجاد SAR در بافت به سرعت به وجود میآیند. در مقابل با بافتی كه SAR ایجاد نشده واكنش آهستهتری صورت میپذیرد. واكنش اكسید كننده ممكن است مجموعهای فرآیندهای دفاع موضعی را مانند مرگ منظم سلولی در طی واكنشهای فوق حساسیت و بیان ژن دفاع و سنتز اسید سالیسیلیك در سلولهای مجاور سبب میشود و در نتیجه در محلهای حمله پاتوژن چرخه مداومی ایجاد میگردد كه منجر به تجمع سطوح بالای اسید سالیسیلیك و H2O2 میشود (روح پرور و محمدی، 1380).
SAR به عنوان یك واكنش كنترل بیماری در گیاهان نتایج مطلوبی دارد و در فعالیتهای كشاورزی میتوان از آن بهرهبرداری كرد. میتوان نتیجه گرفت كه تماس یك پاتوژن با گیاه میزبان سبب فعال شدن یكی از واكنشها در گیاه میگردد. دسته ای از این واكنشها گیاه را مستعد آلودگی نموده و مقاومت گیاه در مقابل عامل بیماریزا كاهش مییابد. مثل تولید اتیلن كه حساسیت گیاه درمقابل بیماری را افزایش میدهد و در مقابل واكنشهای دیگری همانند تولید اسید سالیسیلیك، انواع سیدروفورها و لیپوپلی ساكاریدها باعث افزایش مقاومت گیاه به عامل بیماریزا میگردد (Reddy et al., 2002). در این رابطه بسیاری ازPGPRها با استفاده از مكانیسم مقاومت اكتسابی سیستمیك همانند تولید اسید سالیسیلیك و اگزالات مقاومت گیاه را در مقابل عامل بیماریزا افزایش میدهند. در آزمایشی كه توسط دانشمندان انجام گرفت مشاهده شد دوگونه از باسیلوسها به وسیله همین مكانیسم بیماری پوسیدگی غلاف برنج، پوسیدگی ریشه در سویا، بیماری سوختگی خیار و بیماری كفك آبی را در تنباكو به شدت كاهش دادند و همچنین در تیمارهایی كه با باسیلوس تلقیح شده بودند شاهد خسارت ناشی از نماتودهای ریشه به شدت كاهش یافته بود (Reddy et al., 2002).
• آنتاگونیسم باكتریایی و قارچی: تحقیقات دانشمندان نشان داده است كه بعضی از خاكها به طور طبیعی دافع یك بیماری هستند و برخی دیگر منتقل كننده یك بیماری میباشند ویژگی هادی و دافع بودن خاك به خصوصیات فیزیكی، شیمیایی و بیولوژیك خاك ارتباط پیدا میكند به عنوان مثال بیماری پاخوره گندم كه توسط یك گونه قارچ به نام Goeumannomyces graminis به وجود میآید كه یكی از مهمترین بیماریهای ریشه در گندم در سراسر جهان میباشد این بیماری میزان قابل توجهی عملكرد گندم و جو را كاهش میدهد. ولی با به كاربردن گونهای از باكتری سودوموناس فلورسنس میتوان شدت این بیماری را كاهش داد كه این باكتری با تولید مواد آنتی بیوتیك همانند فنازین یا 2 و 4 دی استیل فلوروگلوسیتول میتواند فعالیت این قارچ را كاهش دهد و با تلقیح باكتری سودوموناس فلورسنس به خاك ناقل این بیماری میتوان آن را به یك خاك دافع تبدیل نمود (Raaijmakers and Weller, 2000). همچنین باكتری سود وموناس فلورسنس با تولید مواد آنتی بیوتیك كه از متابولیتهای ثانویه میباشد در كنترل بیماریهایی مانند پوسیدگی سیاه در تنباكو، پژمردگی فوزایوزمی در گوجه فرنگی و پژمردگی فوزایوزمی در لوبیا موثر میباشد (Raaijmakers and Weller, 2000). در جدول زیر به برخی از میكرو ارگانیسمهای ریزوسفری كه در كنترل بیماریهای گیاهی نقش دارند اشاره شده است.
جدول 4 ـ برخی ریزجانداران ریزوسفری مؤثر در كنترل بیماریهای گیاهی (علوی و آهونمنش، 1376)
نوع میكرو ار گانیسم محل ثبت هدف
|
|
نوع میكرو ار گانیسم |
محل ثبت |
هدف | |
|
بــــاكتریها |
| |||
|
|
Agrobacterium radiobacter K84 |
ایالات متحده آمریكا،استرالیا،زلاندنو |
گـال طوقه | |
|
|
Bacillus subtilis |
ایالات متحده آمریكا |
افزایش رشد | |
|
|
Pseudomonas fluorescens |
استرالیا |
لكه باكتریایی | |
|
|
Pseudomonas fluorescens |
ایالات متحده آمریكا |
بیماریهای گیاهچه | |
|
قـارچها |
| |||
|
|
Peniophora gigantea |
بریتانیا |
Fomes annosus | |
|
|
Pythium oligandrum |
شوروی سابق |
Pythium sp. | |
|
|
Trichoderma viride |
اروپا |
عوامل بیماریزای الوار | |
|
|
Trichoderma sp. |
شوروی سابق |
بیماریهای ریشه | |
به طور كلی واكنشهای آنتاگونیستی در منطقه ریزوسفر نسبت به خاك اطراف شدیدتر میباشد و با استفاده از مكانیسمهای رقابتی مانند پارازیتیسم، شكار و اشغال جایگاههای مناسب بر روی ریشه توسط ایزولههای غیرپاتوژنیك میتوان میزان خسارت به گیاه را كاهش داد. به عنوان مثال باكتریهای تولید كننده آنزیم كیتیناز موجود در ریزوسفر با تولید این آنزیم میتوانند با قارچهای بیماریزا مانند فوزاریوم، اسكلروتیوم، فیتیوم و ریزوكتونیا سولانی مقابله نمایند یا با استفاده از مكانیسم حذف رقابتی و اشغال جایگاههای مناسب توسط ایزولههای غیر پاتوژنیك و حذف پاتوژنها میتوان میزان بیماری را كاهش داد. به عنوان نمونه میتوان به اشغال جایگاههای مناسب برروی ریشه توسط باكتری سودوموناس فلورسنس و حذف باكتری مولد بیماری پاخوره گندم از طریق مكانیسم حذف رقابتی اشاره نمود (Weller, 1983).
شكل 1 ـ برخی چرخهها در مكانیسمهای حاكم بر كنترل بیولوژیك عوامل بیماریزای گیاهی (Baker, 1984)
باكتریهای محرك رشد ریزوسفری با تولید انواع متابولیتهای بازدارنده مثل تولید انواع آنتیبیوتیكها و استفاده از مكانیسمآنتی بیوزو روابط بین این باكتریها و عوامل بیماریزا مثل روابط انگلی، شكار، رقابت برای اشغال جایگاههای مناسب برروی ریشه میتوانند در كنترل بیماریهای گیاهی موثر باشند و یا این باكتریهای مفید از طریق تولید انواع اسیدهای آمینه و هورمونها و یونسفرها و افزایش جذب و حلالیت عناصر غذایی مثل فسفر، آهن و روی سبب تقویت و مقاوم شدن گیاه گردیده و از به وجود آمدن بیماریهای گیاهی به عنوان عارضه ثانویه جلوگیری به عمل آورند.
در پایان باید گفت كه استفاده از روشهای بیولوژیك نسبت به روشهای شیمیایی برای كنترل آفات و بیماریها بسیار مفید و به صرفه بوده و در راستای اهداف كشاورزی پایدار است. زیرا سموم شیمیایی دارای مكانیسم سمی و غیر اختصاصی بوده و برای بشر و بسیاری از جانداران دیگر اثرات سمی و ناشناخته دارد. از طرف دیگر باعث مقاوم شدن آفات و عوامل بیماریزا نسبت به سموم در طی زمان گشته و به نظر میرسد بهترین راه، گسترش و توسعه مبارزه بیولوژیك و تقویت گیاه در مقابل عوامل بیماریزا میباشد.
نقش ازتوباكتر در كاهش آلودگی محیط زیست: ازتوباكتر یك باكتری آزادزیl تثبیت كننده نیتروژن است كه انرژی مورد نیاز خود را از تجزیه بقایای گیاهی و جانوری تأمین میكند. توانایی سنتز اكسین و هورمونهای محرك رشد، انواع ویتامینها به خصوص ویتامینهای گروه B، انواع اسیدهای آمینه، سنتز مواد ضد قارچی برای مقابله با عوامل بیماریزای قارچی همانند فوزاریوم، اسكلروتیوم در ریزوكتونیاسولانی و … از امتیازات اضافی این باكتری به شمار میرود. این میكروارگانیسم در بسیاری از كشورهای جهان همانند برزیل، هند، روسیه و غیره به عنوان كود بیولوژیك كه ازتوباكترین نامیده میشود برای افزایش كمیت و كیفیت بسیاری از محصولات كشاورزی همانند غلات، صیفیجات و سبزیجات مورد مصرف دارد.
یكی دیگر از موارد استفاده این باكتری مفید كه امروزه مورد علاقه بسیاری از دانشمندان میباشد نقش این باكتری در كاهش آلودگی محیط زیست میباشد كه در زیر به صورت خلاصه به چندین مورد اشاره میشود.
نقشl ازتوباكتر برای خارج نمودن عناصر سنگین: امروزه به منظور خارج نمودن عناصر سنگین (همانند كادمیم و سرب) از فاضلابهای كشاورزی و صنعتی استفاده از تكنولوژی میكروبی به خصوص گونههای مختلف ازتوباكتر مورد توجه میباشد كه از نظر اقتصادی و زیست محیطی راهكار مناسبی میباشد. بیوماس و پلی مرهای میكروبی نقش مؤثری در خارج كردن فلزات سنگین از فاضلابها دارند. هنگامی كه ازتوباكتر به فاضلابها اضافه میگردد این باكتری با تولید انواع پلی ساكاریدها كپسول مانند و اگزوپلی ساكاریدهای سبب خارج شدن میزان قابل توجهی از عناصر سنگین و مضر همانند سرب، نیكل، كادمیوم و … میگردد. به عنوان مثال در تحقیقی در ایتالیا انجام گرفت 6 لیتر از فاضلاب رقیق شده كه حاوی 5 درصد مواد آلی بود با ازتوباكتر وینلاندی در دمای oC30 تلقیح شد پس از 2 هفته بیوماس میكروبی به وسیله دستگاه سانتریوفوژ جدا گردید و پلی ساكاریدهای تولید شده توسط ازتوباكتر نیز عصاره گیری و ارزیابی گردید. این پلی ساكاریدها و اگزوپلی ساكاریدها به وسیله غشاء الكلی پلی ونیل بدام انداخته شدند. پلی ساكاریدها عناصر كادمیم و سرب را از محلول فاضلاب خارج ساخته بودند. البته نكته قابل توجهی این میباشد كه میزان سرب خارج شده از محلول فاضلاب به پ.هاش محلول وابسته میباشد بدین صورت كه در پ.هاش 5/4 راندمان خارج ساختن سرب از محلول فاضلاب از پ.هاش 5/6 بیشتر میباشد. در حالیكه پ.هاش محلول راندمان خارج ساختن سرب از محلول تأثیر چندانی ندارد نتایج به صورت زیر در جدول خلاصه شده است:
جدول 5 - پلی ساكاریدهای تولید شده توسط ازتوباكتر
|
روز بعد از تلقیح |
پلی ساكاریدهای كپسولی (CPS) (میلیگرم در 100 میلیلیتر) |
اگزوپلی ساكاریدها (EPS) (میلیگرم در 100 میلیلیتر) |
|
0 |
0/240 |
6/41 |
|
14 |
2/411 |
4/94 |
جدول 6 - راندمان پلی ساكاریدها در خارج ساختن فلزات (cd+2 و pb+2) از جریان مایع
میكرومول Me+2 در هر میكرومول (CPS)
|
میكرومول Me+2 در هر میكرومول (CPS) | ||
|
|
5/4 pH |
9/6 pH |
|
Cd+2 |
82/3 |
35/3 |
|
Pb+2 |
50/5 |
46/1 |
نقش ازتوباكتر در كاهش آلودگی ناشی از جیوه: جیوه یكی از عناصرl مضر جهت سلامت انسان و حیوانات میباشد كه اختلالات تنفسی و انواع سرطانها را در انسان موجب میشود. جیوه از طریق احتراق ناقص سوختها یا دود بعضی از كارخانجات به محیط زیست اضافه میگردد. بعضی از باكتریها به خصوص گونههای مختلف ازتوباكتر توانایی سنتز آنزیمهایی را دارند كه قادر میباشند تركیبات آلی و معدنی جیوه كه از طرق مختلف به محیط زیست اضافه میشوند را تجزیه نمایند این دو آنزیم. مركوریك ردوكتاز و ارگانو مركوریال لیاز میباشد. نحوه عمل بدین صورت میباشد كه آنزیم مركوریك ردوكتاز Hg+2 موجود در تركیبات معدنی جیوه را به HgO تبدیل نموده و HgO به علت فشار بخار بالایی كه دارد به خارج از سیستم متصاعد میگردد. اما برای تجزیه تركیبات آلی جیوه آنزیم ارگانو مركوریال لیاز وارد عمل شده ابتدا پیوندهای كربن-جیوه را به Hg+2 تبدیل نمود و سپس آنزیم مركوریك ردوكتاز وارد عمل شده و Hg+2 را به HgO تبدیل مینماید.
پیشنهادها (چه باید كرد؟)l
• باكتری های افزاینده رشد (PGPR) ریزجاندارانی هستند كه در خاك های آهكی در شرایط مصرف نامتعادل كودها چندان فعالیت ندارند.
• با مصرف بهینه كود، باكتریهای افزاینده رشد در محیط ریزوسفر در راستای افزایش عملكرد و بهبود كیفیت محصولات كشاورزی نقش خود را موثرتر ایفاء مینمایند.
• یكی از وظایف محققین بخش تحقیقات بیولوژی خاك مؤسسه تحقیقات خاك و آب، تحقیق برروی این نوع ریز جانداران و ارائه دانش فنی آن به بخش صنعت میباشد.
دستگاه عصبی یا سیستم عصبی یا سامانهٔ عصبی (Nervous System) در بدن جانوران به هماهنگی فعالیتهای ماهیچهها پرداخته، اندام گوناگون را تحت نظارت درآورده، و ایجاد و توقّف ورودیهای مربوط به حواس مختلف را باعث میشود. وظیفه کنترل اعمال بدن بر عهدهٔ دو سامانهٔ عصبی و غدهای درونی میباشد، که از این میان، سامانهٔ عصبی، از یاختههای عصبی و یاختههای کمکی تشکیل شدهاست.
به این ترتیب دستگاه عصبی، با ساختار و کار ویژهای که دارد، در جهت ایجاد هماهنگی بین اعمال سلولها و اندامهای مختلف بدن تمایز و تکامل یافتهاست. خواص ویژهٔ آن عبارت اند از تأثیرپذیری نسبت به محرکهای خارجی، ایجاد یک جریان عصبی که نمایانگر تأثیر محرک است، هدایت جریان عصبی از یک نقطهٔ دستگاه به نقطهٔ دیگر و سرانجام انتقال آن از یک واحد عصبی به یک واحد دیگر
تقسیمبندی دستگاه عصبی
تقسیمبندی دستگاه عصبی معمولا بر دو مبنای کالبدشناختی (آناتومیک) و کارکردی صورت میگیرد.
از دیدگاه کالبدشناختی
دستگاه عصبی را از دیدگاه کالبدشناختی به دو بخش تقسیم مینمایند، که عبارتاند از:
از دیدگاه کارکردی
از دیدگاه کارکردی سامانهٔ عصبی را به دو بخش تقسیم مینمایند:
وظیفه دستگاه عصبی
سامانهٔ عصبی سه وظیفه اصلی دارد: دریافت حواس، ترکیب دادهها واعمال حرکات. این فعالیتهای عصبی به طور کلی در دو جهت انجام میگیرند: تنظیم فعالیتهای درونی بدن و تنظیم موقعیت جانور نسبت به محیط اطراف. البته در اغلب موارد، هر دو نوع تنظیم عصبی داخلی و خارجی با هم کار میکنند.[۱] دریافت حواس هنگامی اتفاق میافتد که بدن از راه نورونها، گلیا و سیناپسها به گردآوری اطلاعات و دادهها میپردازد. دستگاه عصبی از سلولهای عصبی قابل تحریک و سیناپسهایی پایه ریزی میگردد که سلولها را به یکدیگر یا به مراکز سراسری و یا به دیگر نورونها متصل میکنند. کارکرد این نورونها بر پایه تحریک و بازدارندگی است و هرچند سلولهای عصبی از دید اندازه و مکان متفاوت هستند، ولی روش ارتباط میان آنهاست که تعیین کننده کارکرد آنها میباشد تفاوت دارد. این رشتههای عصبی محرکهای عصبی را از گیرندههای حسی به مغز و نخاع هدایت میکنند. پردازش اطلاعات درنهایت با ترکیب دادهها و فقط درمغز صورت میپذیرد. پس از پردازش اطلاعات درمغز، فرمانهای عصبی ازطریق مغز و نخاع به ماهیچهها و غدهها هدایت میشوند که به این فرایند اعمال حرکت گفته میشود. سلولهای گلیا داخل بافتها یافت میشوند و قابل تحریک نیستند.
جنین شناسی دستگاه عصبی
در هفته سوم پس از لقاح، در ناحیه پشتی جنین، نوار طولی از اکتودرم ظاهر شده که دارای دو پایانه سری و دمی میباشد، این صفحه، صفحه عصبی (Neural Plate) گفته میشود، از آنجایی که رشد اطراف صفحه بیش از نواحی مرکزی آن میباشد پس از مدتی صفحه بصورت ناودان مانند موسوم به ناودان عصبی (Neural Groove) و با ادامه روند رشد، سرانجام بصورت لوله در امده که به آن لوله عصبی (Neural Tube) گفته میشود.
دستگاه عصبی مرکزی
نمایی کلی از دستگاه عصبی مرکزی شامل مغز و نخاع
دستگاه عصبی مرکزی با از دو قسمت مغز و نخاع (medulla spinalis) تشکیل شدهاست. مغز در داخل حفره جمجمهای جای دارد و توسط کپسولی استخوانی محافظت میشود. نخاع نیز در داخل حفره نخاعی جای دارد و توسط ستون مهرهها حمایت میشود. هم مغز و هم نخاع در داخل پوششی بنام مننژ قرار دارند و مایع مغزی نخاعی نیز فضای بین این اعضا و مننژ را پر کرده است[۶].
دستگاه عصبی مرکزی از دو بخش ماده سفید و خاکستری (Gray and White Matter) تشکیل یافتهاست. ماده خاکستری حاوی سلولهای عصبی و قسمت ابتدایی زواید آنها است و ماده سفید حاوی الیاف عصبی است.
مغز
نوشتار اصلی: مغز
مغز در داخل حفره جمجمهای جای دارد و از راه سوراخ ماگنوم به نخاع متصل میشود. قسمت پایینی مغز را که به طناب نخاعی متصل میشود را بنام ساقه مغز (Brain Stem) میشناسند و قسمت جلویی مغز را جلومغز (پروزانسفالون) (Prosencephalon) مینامند.
در رویان ۵ هفتهای جلومغز از دو قسمت تشکیل شدهاست: تلانسفال (Telencephalon) و دیانسفال(Diencephalon). تلانسفال که نیمکرههای مغزی را میسازد و دیانسفال که چشمها، هیپوفیز، تالاموس، هیپوتالاموس و اپی فیز (جسم پینه آل) را میسازد.
ساقه مغز از دو تشکیل شدهاست: مزانسفالون (Mesencephalon) یا مغز میانی و رومبانسفالون (Rhombencephalon) یا مغز خلفی.
نمای از تمایز دستکاه عصبی مرکزی در دوران جنینی
رومبانسفالون نیز از دو بخش تشکیل شدهاست: متانسفالون (Metencephalon) که در آینده پل مغز (Pons) و مخچه (Cerebellum) از آن منشا میگیرد و میلانسفالون (Myelencephalon) که در آینده پیاز مغز (Medulla oblongata) را میسازد
وزن مغز: وزن مغز در انسانها بطور متوسط بین ۱۲۵۰ تا ۱۶۰۰ گرم میباشد. وزن مغز با وزن بدن نیز ارتباط دارد و معمولا افراد سنگین وزن تر دارای وزن مغز بیشتری میباشند. متوسط وزن مغز در مردان ۱۳۵۰ گرم و در زنان ۱۲۵۰ گرم میباشد. در سن ۲۰ سالگی وزن مغز به حداکثر میزان خود میرسد. در سنین پیری وزن مغز به علت آتروفی وابسته به سن (age-related atrophy) کاهش مییابد. باید توجه داشت که میزان وزن مغز افراد با میزان هوش آنها ارتباطی ندارد
نخاع
نخاع درون ستون مهرهها از پیاز مغز تا کنار پایینی اولین مهره کمری امتداد دارد و مغز را به دستگاه عصبی محیطی متصل میکند. نخاع در کودکان بلند تر بوده و تا کنار بالایی سومین مهره کمری امتداد دارد. نخاع علاوه بر انتقال اطلاعات حسی به مغز و پیامهای عصبی به ماهیچهها، مرکز برخی از انعکاسهای بدن است. انعکاس (Reflex)، پاسخ ناگهانی و غیر ارادی ماهیچهها در پاسخ به محرکهاست.
۳۱ جفت عصب به نخاع متصل است. هر عصب شامل یک ریشهٔ پشتی و یک رشتهٔ شکمی است. ریشههای پشتی محتوی نورونهای حسیاند که اطلاعات را از گیرندههای حسی به دستگاه عصبی مرکزی وارد میکنن. ریشههای شکمی محتوی نورونهای حرکتی اند که پاسخ حرکتی را از دستگاه عصبی مرکزی به ماهیچهها و غدهها منتقل میکنند.
در برش عرضی نخاع دو بخش دیده میشود: بخشی در وسط که از جنس مادهٔ خاکستری است و شامل جسم سلولی نورونهاست، و بخشی از جنس مادهٔ سفید که محتوی آکسون و دندریت نورونهاست و بخش خاکستری را دربر گرفتهاست. همچنین در بخش خاکستری نخاع، نورونهای رابط وجود دارند که باعث ارتباط نورونها با یکدیگر میشوند
[ویرایش] محافظت از دستگاه عصبی مرکزی
لایههای مننژ
دستگاه عصبی مرکزی پستانداران به چند روش محافظت میشود. نخستین عامل، استخوانهای جمجمه و ستون مهرهها هستند که جعبهای محکم و استخوانی برای محافظت از مغز و نخاع به وجود میآورند. افزون بر آن، مغز و نخاع را پردهای سهلایهای به نام مننژ میپوشاند. پردهٔ بیرونی مننژ از نوع بافت پیوندی محکم است و سختشامه نام دارد. در زیر آن لایهٔ عنکبوتیه قرار دارد، و لایهٔ درونی مننژ نرمشامه است که دارای مویرگهای خونی فراوان است و بافت مغزی را تغذیه میکند. میان لایهٔ عنکبوتیه و نرمشامه فضایی هست که از مایعی به نام مایع مغزی-نخاعی پر شدهاست و نقش ضربهگیر را دارد.
همچنین، سلولهای پوششی دیوارهٔ مویرگهای مغزی، فاقد منافذی هستند که در سایر بافتها دیده میشود. در نتیجه بسیاری از مواد که در متابولیسم سلولهای مغز نقشی ندارند و نیز میکروبها معمولاً نمیتوانند وارد مغز شوند. به این عامل حفاظتکننده سد خونی-مغزی میگویند[۱].نورونهای دستگاه عصبی مرکزی بوسیله انواعی از سلولهای غیر قابل تحریک که نوروگلی نامیده میشوند حمایت میشوند.
نوروگلی
ایندسته از سلولها وظیفه حمایت از سلولهای عصبی یا همان نورونها را بر عهده دارند و غیر عصبی هستند. گرچه این سلولها کوچکتر از نورونها هستند ولی ولی از لحاظ تعداد ۵ تا ۱۰ برابر نورونها هستند به طوری که نصف حجم مغز و نخاع را شامل میشوند. این سلولها به ۴ دسته کلی تقسیم میشوند:
دستگاه عصبی محیطی
دستگاه اعصاب محیطی از اعصاب مغزی (Cranial nerves)، اعصاب نخاعی (Spinal nerves) و عقدههای مربوط به آنها تشکیل شدهاست.
اعصاب مغزی
اعصاب مغزی ۱۲ جفت میباشند. اگرچه دو جفت اول را نمیتوان واقعاً جزئی از دستگاه اعصاب محیطی بهشمار آورد. تا هفته چهارم تکامل جنینی هستههای همه ۱۲ عصب مغزی تشکیل شدهاند. همه اعصاب مغزی بجز عصب بویایی و عصب بینایی از ساقه مغز منشا میگیرند. لیست اعصاب مغزی به شرح زیر میباشد:
اعصاب نخاعی
در انسان ها ۳۱ جفت عصب نخاعی وجود دارد که از راه سوراخهای بین مهره ای ستون مهرهها بیرون میآیند. اعصاب نخاعی به صورت زیر تقسیم بندی و نامگذاری میکنند:
هر عصب نخاعی توسط دو ریشه به نخاع متصل است: ریشه قدامی (Anterior root) و ریشه خلفی (Posterior root). ریشههای قدامی و خلفی پس از خروج از طناب نخاعی به طرف سوراخ بین مهرهای خود رفته و به هم متصل میشوند و تشکیل عصب نخاعی را میدهند. ریشه قدامی حاوی الیاف وابران (Efferent fibers) است در حالی که ریشه خلفی حاوی الیاف آوران (Afferent fibers) است. ازآنجا که الیاف آوران، اطلاعاتی از قبیل حس لامسه، درد، حرارت و ارتعاش را منتقل میکنند به آنها الیاف حسی (Sensory fibers) هم میگویند. عصب نخاعی پس از گذشتن از سوراخ بین مهرهای به دو شاخه تقسیم میشود: شاخه بزرگ قدامی (Anterior ramus) و شاخه بزرگ خلفی (Posterior ramus). این شاخهها هم الیاف حسی و هم الیاف حرکتی دارند. شاخههای قدامی در ابتدای اندامها به هم میپیوندند و شبکههای عصبی (Nerve Plexusus) را ایجاد میکنند. شبکه گردنی (Cervical plexus) و شبکه بازویی (Brachial plexus) در ابتدای اندام فوقانی شکل میگیرند و شبکه کمری (Lumbar Plexus) و شبکه خاجی یا شبکه ساکرال (Sacral Plexus) در ابتدای اندام تحتانی ایجاد میشوند.
واسط مغز و رایانه
واسط مغز و رایانه از مجموعهای از سنسورها و اجزای پردازش سیگنال تشکیل میشود که فعالیت مغزی فرد را مستقیماً به یک سری سیگنالهای ارتباطی یا کنترلی تبدیل میکند. در این سامانه ابتدا باید امواج مغزی را با استفاده از دستگاههای ثبت امواج مغزی ثبت کرد که معمولاً به دلیل دقت زمانی بالا و ارزان بودن و همچنین استفاده آسان، از EEG برای ثبت امواج مغزی استفاده میشود. الکترودهای EEG در سطح پوست سر قرار میگیرند و میدان الکتریکی حاصل از فعالیت نورونها را اندازه گیری میکنند. در مرحله بعد این امواج بررسی شده و ویژگیهای موردنظر استخراج میشود و از روی این ویژگیها میتوان حدس زد که کاربر چه فعالیتی را در نظر دارد. در این مقاله این سیستم و پیشرفتهایی که تا کنون روی این سامانه صورت گرفتهاست، بررسی شدهاست. از آن جایی که هنوز سرعت و دقت این سیستمها به حد قابل قبولی نرسیدهاست، هنوز به صورت تجاری وارد بازار نشدهاست اما از آن جایی که این سیستمها روش نوینی برای برقراری ارتباط، خصوصاً برای افرادی که از نظر جسمی معلول هستند را فراهم میکنند، گروههای پژوهشی زیادی روی این سامانهها کار میکنند و امید است که در آیندهای نزدیک بتوان به سامانههایی با سرعت و دقت بالا دست پیدا کرد. کلمات کلیدی: واسط مغز و رایانه، EEG ، استاندارد 10-20 ، آرتیفکت، امواج ریتمیک، پتانسیل برانگیخته، نورون، بردار ویژگی
مقدمه
بیماریهای مختلفی میتوانند باعث صدمه دیدن سیستم عصبی عضلانی که مغز از طریق آن قادر به ایجاد ارتباط و اعمال کنترل به محیط خارج است شوند. بیماریهایی از قبیل ALS1، Brain Stem Stroke، آسیبهای مغزی-نخاعی، Cerebral Palsy، Muscular Dystrophies و Multiple Sclerosis مثالهایی از انواع بیماریهایی هستند که مسیر عصبی کنترل عضلات در آنها آسیب میبیند. در شرایط حاد بیماری، فرد مبتلا ممکن است تمام حرکات ارادی خود را از دست بدهد. حتا ممکن است حرکات چشم و تنفس که اعمالی غیر ارادی هستند نیز امکان پذیر نباشد. به این گونه بیماران، اصطلاحاً Locked – in گفته میشود. در غیاب روشهایی برای جبران فیزیولوژیکی آسیبهای وارده در اثر این بیماریها، سه انتخاب برای بازآفرینی عملکرد طبیعی بیماران وجود دارد [1]: 1. افزایش قابلیتهای مسیرهای عصبی-عضلانی باقیمانده. 2. بازسازی عملکرد از دست رفته توسط عبوراز مناطق آسیب دیده در مسیر عصبی. 3.فراهم آوردن مسیر ارتباطی جدید و غیرماهیچهای برای مغز است که از طریق آن بتواند مستقیماً پیامها و دستورالعملهای کنترلی را به محیط خارج ارسال نماید: یک رابط مغز و رایانه. خصوصیتی که این رابطهای مغز و رایانه را از سایر وسایل ارتباطی مجزا میکند، عدم نیاز به حرکتی آشکار در بدن به منظور انتقال اطلاعات میباشد. بدین ترتیب در حالتی ایدهآل شخص باید بتواند بی حرکت در جای خود نشسته و با تمرکز بر برخی افکار و تولید امواج مغزی مناسب منظور خود را بیان کند. با توجه به عدم امکان تحرک در برخی بیماران، اهمیت این موضوع بیشتر نمایان میشود. مطالعات متعددی نشان دهنده تأثیر فعالیتها و تصورات ذهنی گوناگون بر امواج مغزی بودهاند. به عنوان مثال، توان باند آلفا در هنگام عملیات لفظی در نیمکره چپ نسبت به نیمکره راست کمتر میشود. این در حالی است که در مورد عمل تصور دوران سه بعدی این موضوع برعکس است. به این پدیده اصطلاحاً عدم تقارن باند آلفا میگویند. به عنوان مثالی دیگر، تصمیم به حرکت میتواند یک ریتم خاص به نام ریتم میو را در سیگنال مغزی کاهش داده یا بلوکه نماید. نتیجه پژوهشی که توسط دویل بر عملیات حرکتی و غیر حرکتی انجام گرفت نشان میدهد که عملیاتی که منجر به تحریک قسمتهای حرکتی مغز شوند، باعث ایجاد عدم تقارن بیشتری بین دو نیمکره میگردند. در یک تعبیر کلی این پژوهشها نشان دهنده وجود تفاوتهای قابل اندازهگیری در سیگنال مغزی که مرتبط با تصورات یا عملیات ذهنی متفاوت هستند، میباشد. به عنوان مثال، چنان چه ما بتوانیم با دقت بالا تفاوت بین یک عمل ذهنی که تحریک کننده نیمکره راست و عمل دیگری که تحریک کننده نیمکره چپ است را از یکدیگر و هر دو را از حالت استراحت تشخیص دهیم میتوانیم یک الفبای سه حرفی داشته باشیم. بنابراین شخص میتواند با ترجمه تفاوتهای سیگنال EEG خود در قالب حروف، 27 کلمه گوناگون بسازد. با در نظر گرفتن فرضهای زیر، شخص میتواند دستورات متعددی صادر نماید: -حرف A نشانگر یک فعالیت ذهنی تحریک کننده نیمکره راست -حرف B نشانگر یک فعالیت ذهنی تحریک کننده نیمکره چپ -حرف C نشان دهنده حالت استراحت ( فعالیت پایه) با ترکیب نمودن این فعالیتها فرد میتوان دستورات سادهای تولید نمود: 1.BC: برو 2.ABC : بایست 3.BAC : به سمت راست 90 درجه برگرد و هزاران دستورالعمل دیگر. چنین سیستمی میتواند به فرد معلول کمک نماید که با محیط اطراف خویش ارتباط برقرار نماید. به عنوان مثال، فرد به راحتی میتواند صندلی چرخدار خود را کنترل نماید. بنابراین تفکیک درست و نسبتاً سریع عملیات ذهنی میتواند پایهای برای توسعه و طراحی سیستمهای BCI باشد. در این گزارش ابتدا با تاکید بر روش اندازه گیری EEG به شرح روشهای مختلف اندازه گیری فعالیتهای مغزی میپردازیم، همچنین در مورد ساختار مغز و امواج مغزی نیز توضیح داده شدهاست. در بخش دوم سیستم BCI ، اجزای مختلف آن و عملکرد هر جز و در نهایت نمونههایی از سیستمهای پیاده سازی شده، آورده شدهاست.
معرفی
EEG مخفف Electroencephalography است که با استفاده از یک سری الکترودها که در سطح مغز قرار میگیرند، فعالیتهای الکتریکی مغز را اندازه گیری میکند. الکترودها به منظور جمع آوری ولتاژ در مکانهای خاصی از مغز قرار میگیرند. قبل از اینکه الکترودها در سطح پوست قرار گیرند یک ژل هادی به منظور کاهش مقاومت روی پوست سر مالیده میشود، خروجی این الکترودها به ورودی یک تقویت کننده وصل میشود سپس از فیلترهای بالا گذر و پایین گذر عبور داده میشود. تغییرات در جریان اکسیژن خون با میزان فعالیت های عصبی ارتباط دارد. زمانی که سلولهای عصبی فعال هستند اکسیژنی که توسط هموگلوبین خون حمل میشود را مصرف میکنند. پاسخ محلی به این کاهش اکسیژن افزایش جریان خون در ناحیههایی است که فعالیت های عصبی زیاد است. از طرف دیگر در اثر فعالیت های عصبی و انتقال پیامهای عصبی جریان الکتریکی تولید میشود که این جریان الکتریکی طبق قانون مارکوف یک میدان مغناطیسی را تولید میکند. با توجه به این مطالب ما روشهای مختلفی برای اندازه گیری فعالیت های مغزی داریم: 1. Positron Emission Tomography (PET) این روش جریان خون مغز را اندازه گیری میکند. 2. Functional Magnetic Resonance Imaging (FMRI) این روش سطح اکسیژن خون را اندازه گیری میکند. 3. Magneto encephalography (MEG) این روش سیگنال های مغناطیسی را اندازه گیری میکند. 4. Electro Encephalography (EEG) این روش سیگنال های الکتریکی تولید شده توسط مغز را اندازه گیری میکند.
با وجود این که دقت مکانی EEG پایین است ولی دقت زمانی آن بالاست و کمتر از چند میلی ثانیه میباشد. همچنین این روش به نسبت ارزان است و استفاده از آن نیز آسان میباشد. به دلیل این خصوصیات اکثر BCIها از این روش برای ثبت فعالیت های مغز استفاده میکنند.
مغز انسان
مغز مرکز دستگاه عصبی بدن است. مغز، نخاع و اعصاب محیطی از یاختههای عصبی میکروسکوپی به نام نورون ساخته شدهاند، حدود ده هزار میلیون نورون فقط در قشر، حدود صدهزار میلیون نورون در سراسر مغز و چندین میلیون نورون هم در نخاع و اعصاب محیطی وجود دارند. هر نورون مطابق شکل2 از سه قسمت عمده تشکیل شدهاست. نخستین قسمت تنهاست که به تنه سایر انواع یاخته بی شباهت نیست. نورون حاوی هسته و سایر ساختارهایی است که معمولا در یاختهها یافت میشوند. دومین قسمت نورون، از زواید کوتاه و چند شاخهای تشکیل میشود که از تنه یاخته بیرون زدهاند و داندریتها خوانده میشوند. سومین قسمت، زایده دراز و باریکی است که آکسون نام دارد. آکسون به مثابهٔ سیم پیچی هر نورون است. آکسون پیامهای الکتریکی عصب را در طول مسیر خود انتقال میدهد و نورون را به نورون دیگر یا به یکی از ماهیچهها متصل مینماید.
شبکه نورونی
در دستگاه اعصاب میلیاردها نورون وجود دارند که پیام های عصبی را به صورت امواج الکتریکی ملایم منتقل میسازند. اما پیامهای عصبی تنها از یک نورون به نورون دیگر منتقل نمیشوند. داندریتها و انتهای آکسونها به چند شاخه منشعب میشوند و این شاخهها با چندین نورون ارتباط پیدا میکنند، به طوری که هر نورون با چندین نورون مجاور مرتبط میگردد. تعداد ارتباطات نورونی در سراسر دستگاه اعصاب فوقالعاده زیاد است. مسیرهای متفاوتی که هر پیام عصبی میتواند انتخاب کند تقریباً پایان ناپذیرند. اندیشهها، احساسات و یادهای ما به عنوان الگوهای ویژه پیام های عصبی باقی میمانند و دائماً از طریق چند مسیر معین به مغز انتقال داده میشوند. هر پیام از میان میلیاردها آکسون و داندریت فقط یک مسیر خاص را انتخاب میکند.
یونها و سیناپسها
انتقال یافتن هر پیام عصبی در مسیر هر نورون ممکن است شبیه به عبور یکنواخت جریان الکتریسیته از سیم به نظر برسد، اما در حقیقت چنین نیست. آکسون لولهای است باریک و پر از مواد شیمیایی محلول در آب. حرکت سریع امواج پیام عصبی وابسته به حرکت یونها است. یونها ذرات ریزی هستند که بار الکتریکی دارند. دو نوع اصلی یون در انتقال پیام عصبی نقش دارند که عبارتند از یون پتاسیم و یون سدیم، که دو مادهٔ فلزی معمولی هستند. به طور طبیعی در درون آکسون پتاسیم زیادتر و در درون آبگون دور آن سدیم بیشتر وجود دارد. بار الکتریکی درون آکسون اندکی منفی است، اما سطح خارجی آن بار الکتریکی مثبت دارد. در لحظهٔ ورود پیام عصبی، غشای آکسون تغییر پیدا میکند تا یونها بتوانند از آن نشت کنند، یعنی هنگامی که یونهای پتاسیم از آکسون خارج میشوند، یونهای سدیم وارد آن میگردند. این رویداد توازن الکتریکی را در آن نقطه ناگهان تغییر میدهد، یعنی بار الکتریکی درون غشای سطحی از منفی به مثبت تبدیل میشود. در حالی که پیام عصبی پیش میرود ، یونها به جای نخست باز میگردند و توازن الکتریکی ابقا میگردد. این حالت تبدیل یونی مثل یک موج در سراسر آکسون پیش میرود و حرکت پیام عصبی را باز مینماید. تمام این فرایندها در یک هزارم ثانیه به وقوع میپیوندد. نورونها در عمل یکدیگر را لمس نمیکنند. میان هر نورون فضای کوچکی وجود دارد که سیناپس خوانده میشود. در این نقطه پیام عصبی به کمک مواد شیمیایی خاصی به نام انتقال دهندههای عصبی از یک سوی سیناپس به سوی دیگر آن میجهد.
ساختار مغز
مغز انسان را میتوان از نظر سازمانی به سه بخش کلی تقسیم کرد: ساقهٔ مغز، مخچه و غشای مغز. ساقهٔ مغز عملاً امتداد و جزئی از نخاع و بخشی از مغز است که پیش از همه تکامل مییابد و ساختاری به نام بصل النخاع را دربردارد که سامانههای تنظیم کننده لازم برای ادامهٔ حیات را شامل میشود، مثل سامانههای تنفس، ضربان قلب و تنظیم دمای بدن. در بالای ساقهٔ مغز، تودهٔ ویژهای به نام مخچه وجود دارد. این پردازشگر سیگنال جالب توجه، در حفظ تعادل و انجام حرکات آرام و هماهنگ نقش حیاتی دارد. تالاموس به عنوان یک نقطه انتخاب اولیه برای تمام اطلاعات حسی (بینایی، شنوایی و حسهای پیکری) که در نهایت به بخش پیچیدهتر بیرونی مغز یعنی قشر میرسند، عمل میکند. بخشی از مغز که سطح آن از همه بالاتر و حجیمتر است، مخ نامیده میشود و از دو نیمکره مغزی راست و چپ تشکیل میشود. غشر مغزی لایهٔ سطحی هر نیمکره را تشکیل میدهد. گرچه عملکرد ساختار پیچیده غشای مغز به طور کامل درک نشدهاست ولی میتوان آن را به لوبهای زیر از نظر کاری که انجام میدهند تقسیم کرد: 1)لوب پسسری یا قشر بینایی اولیه در قسمت عقب سر. 2)لوب گیجگاهی که قسمت پایینی میانی هر یک از نیمکرهها را اشغال میکند و قشر شنوایی اولیه را دربردارد. 3)لوب آهیانهای که از عقب به لوب پسسری و از جلو به یک فرورفتگی مهم که از چپ به راست امتداد دارد و شیار مرکزی نامیده میشود، محدود میشود. لوب آهیانهای از نواحی تقریباً مشخصی تشکیل یافتهاست. یکی از این ناحیهها مسئول دریافت سیگنالهای حسی از هر ناحیهای از بدن است (برآمدگی مرکزی پشتی که در پشت شیار مرکزی قرار دارد و به عنوان کرتکس یا غشر حس پیکری نیز شناخته میشود) و ناحیهای در قسمت جلوتر که به ادراکات حسی تشخیصی که مرتبه بالاتری دارند (مثل توانایی شناخت اشیای مختلف از روی شکل وقتی در کف دست انسان قرار داده میشوند) و خودآگاهی (آگاهی فرد از بدن خود و موقعیتش اندامش در فضا) مربوط میشود. 4)لوب پیشانی، قسمتی از نیمکرههای راست و چپ که در جلوی شیار مرکزی قرار دارند. درست در جلوی شیار مرکزی، قشر حرکتی اولیه قرار دارد که کنترل عصبی خامی روی نورونهای حرکتی ایجاد میکند. همان طور که مشاهده میشود هر سانتیمتر مربع از مغز، از نظر عملکردی مشخص و متمایز نشدهاست. بخشهای باقیمانده را معمولاً نواحی وابسته مینامند. بعضی اظهار داشتهاند که این نواحی در گردآوری اطلاعات از دیگر بخشها برای اصلاح فرایندهای عصبی نقش دارد. در شکل 3 این نواحی را روی مغز نشان داده شدهاست.
الکترود
یک الکترود یک صفحهٔ کوچک رسانا است که فعالیت های الکتریکی رسانهای که با آن در تماس است را دریافت میکند. در مورد EEG ، الکترودها یک واسط بین پوست و وسایل ثبت و ذخیره سازی هستند که عمل تبدیل جریان یونی در سطح پوست به جریان الکتریکی را انجام میدهند. مادهٔ هادی که به صورت ژل است و در سطح پوست سر قرار میگیرد، مقاومت تماسی بین الکترود و جمجمه را کم میکند. بسته به کاربرد تعداد الکترودهای مورد استفاده در EEG متفاوت است.
استاندارد 10-20
برای داشتن امکان مقایسه نتایج ثبت سیگنال مغزی و امکان تعمیم نتایج در سال 1949م. یک شیوه الکترود گذاری به عنوان استاندارد بین المللی شناخته شد. این چیدمان جهانی الکترودها که به عنوان استاندارد 10-20 شناخته شد، امکان پوشاندن تقریباً تمام نواحی سر را توسط الکترودها فراهم میکند (شکل 8) . انتخاب محل الکترودها بر اساس نقاط ویژه استخوان جمجمه انجام پذیرفته است. الکترودها در نواحی تلاقی سطوح استخوان جمجمه قرار میگیرند که سایر الکترودهای میانی بر اساس 10 و 20 درصد کل فاصله چیده خواهند شد. شکل 4 نواحی مختلف قرار گیری الکترودها را نشان میدهد. نام هر منطقه بر اساس لبی که در آن قرار گرفتهاست و قرار داشتن در نیمکره راست یا چپ مشخص میشود به این صورت که در نیمکره چپ با اعداد فرد و در نیمکره راست با اعداد زوج نشان داده میشود.
امواج مغز
سیگنال های EEG که میتوان به عنوان ورودی سیستم BCI استفاده کرد را میتوان به دستههای زیر تقسیم کرد: 1)فعالیتهای مغزی ریتمیک. 2)پتانسیلهای برانگیخته. مغز متشکل از میلیونها سلولی است که هر کدام عمل متفاوتی را انجام میدهند. از اینرو در هر لحظه، و در هر جای مغز ترکیب مختلفی ازانواع فرکانسها را میتوان داشت. بسته به سطح هوشیاری، امواج مغزی افراد طبیعی، فعالیت ریتمیک متفاوتی از خود نشان میدهد. برای مثال، مراحل مختلف خواب را میتوان در EEG مشاهده کرد. همچنین به هنگام بیداری نیز امواج ریتمیک متفاوتی بهوجود میآید. این ریتمها با افکار و اعمال مختلف تحت تأثیر قرار میگیرند. برای مثال، طرح ریزی یک حرکت میتواند یک ریتم خاص را بلوکه و یا تضعیف کند. این واقعیت که افکار محض میتوانند روی ریتمهای مغزی اثر بگذارند، میتواند به عنوان اساس سیستمهای رابط مغز و رایانه بهکار رود. همان طور که در جدول 1 نشان داده شده، این امواج را میتوان به چندین رنج فرکانسی تقسیم کرد. 1.باندهای فرکانسی امواج ریتمیک فرکانس باند <3.5 دلتا 4-7.5 تتا 8-13 آلفا >13 بتا
پتانسیلهای برانگیخته در حقیقت تغییراتی در سیگنال EEG هستند که در پاسخ به یک "اتفاق" مغزی یا محرک خاص روی میدهند. این تغییرات آنقدر کوچکند که برای آشکارسازی آن باید نمونههای بسیاری از EEG در تکرارهای زیاد میانگین گیری شوند. این میانگین گیری پرش های تصادفی سیگنال EEG که وابسته به محرک نیستند را از بین میبرد. بنابراین بررسی سیگنالهای ناشی از تحریک مغز همان تجزیه و تحلیل حوزه زمان سیگنال EEG میباشد. به عنوان نمونهای از این پتانسیلها میتوان به پتانسیل P300 اشاره کرد. که با تأخیری حدود 300 میلی ثانیه و با پیک مثبت روی جمجمه قابل ثبت خواهد بود.
واسط مغز و رایانه
در طی دو دههٔ گذشته تعداد گروههایی که بر روی BCI کار میکنند افزایش یافتهاست. کشف یافتههای جدید در مورد عملکرد مغز، ارزان شدن و در دسترس بودن تجهیزات رایانهای و نیاز افراد معلول به این سیستم ارتباطی باعث بیشتر شدن انگیزه این گروههای تحقیقاتی شدهاست. امروزه، سیستمهای BCI یک روش ارتباطی بدون دخالت ماهیچه را در اختیار بشر قرار میدهند تا بتوانند مستقیماً با محیط پیرامون خود ارتباط برقرار کنند. یک سیستم BCI از مجموعهای از سنسورها و اجزای پردازش سیگنال تشکیل میشود که فعالیت مغزی فرد را مستقیماً به یک سری سیگنالهای ارتباطی یا کنترلی تبدیل میکند. این فنآوری یک واسط مستقیم را بین مغز و رایانه فراهم میکند. در اولین همایش بین المللی که در ژون 1999 برگزار شد یک تعریف فرمال برای BCI به صورت زیر ارائه شد: (( یک واسط مغز و رایانه یک سامانه ارتباطی است که وابسته به مسیرهای خروجی نرمال سامانه عصبی جانبی و ماهیچهها نیست. )) این سامانه از اجزای زیر تشکیل میشود: 1)مرحله جمع آوری دادهها شامل ثبت اطلاعات خام EEG است که از الکترودها در مکان های مشخصی از مغز گرفته میشود و ورودی سیستم BCI را تشکیل میدهد. انتخابهایی نظیر تعداد، مکان و تراکم الکترودها، کانالهای ورودی را مشخص میکند. مرحله پیش پردازش از فاز جمع آوری شامل تقویت کردن، فیلتر کردن و تبدیل سیگنال آنالوگ به دیجیتال است. 2)مرحله بعدی، یک مرحلهٔ بهینه سازی اطلاعات است که به صورت اختیاری صورت میگیرد و شامل بهبود نسبت سیگنال به نویز، با حذف آرتیفکت و کاهش افزونگی اطلاعاتی است که از کانالهای EEG دریافت میشود. 3)استخراج ویژگی مهمترین مرحله در هر سیستم BCI است. این مرحله شامل استخراج ویژگیهای وابسته به دستور و قابل تمییز از سیگنالهای EEG حاصل از مرحلهٔ پیش پردازش است که برای این استخراج ویژگی از الگوریتمهای پردازش سیگنالهای دیجیتال استفاده میشود. 4)مرحله کلاس بندی یا ترجمهٔ ویژگی شامل مشخص کردن الگوهای ویژگی برای آسان کردن دسته بندی دستورات کاربر است. میتوان از ساده ترین روش که گذاشتن یک حد آستانه یا استفاده از یک مدل خطی است تا روش های پیچیده غیر خطی مبتنی بر شبکههای عصبی استفاده کرد.
5)خروجی مرحلهٔ کلاس بندی ورودی کنترلی وسیلهاست. فرایند کنترل وسیله ، خروجی کلاس بندی را به یک عمل از وسیله تبدیل میکند. خروجی مرحلهٔ کلاس بندی ممکن است این باشد که وسیله عملی را انجام ندهد.
نمونهای از سامانه پیاده سازی شده
همان طور که در شکل 6 نشان داده شدهاست این سامانه به این صورت عمل میکند که 4 صفحهٔ شطرنجی که با فرکانسهای مختلف در حال چشمک زدن هستند به همراه شیای که کاربر میخواهد آن را کنترل کند، حرکت میکنند. زمانی که کاربر توجه حود را به یک تصویر خاص متمرکز میکند یا به آن خیره میشود، یک مولفهٔ تناوبی با همان فرکانسی که تصویر در حال چشمک زدن است، در سیگنال EEG ، خصوصا در ناحیهٔ بینایی از مغز مشاهده میشود. این تصاویر چشمک زن میتوانند برای کنترل جهت ماشین استفاده شود. زمانی که کاربر به صفحهٔ بالای ماشین خیره میشود، ماشین به سمت بالا حرکت میکند و بدین ترتیب میتواند جهت حرکت ماشین را کنترل کند.
واسط مغز و انسان یک فنآوری جدید است که پژوهشگران زیادی بر روی این تکنولوژی کار میکنند و هنوز به دلیل دقت پایین و همچنین سرعت کم به صورت تجاری وارد بازار نشدهاست اما میتواند تکنولوژی عالی برای افرادی باشد که دچار معلولیتهای جسمی هستند و حتا میتواند به افرادی که کاملاً معلول هستند و هیچ حرکتی جز حرکات چشم نمیتوانند انجام دهند اما از نظر ذهنی سالم هستند، کمک کند و امکان برقراری ارتباط با محیط اطراف را برای آنها فراهم نماید چرا که این تکنولوژی وابسته به ماهیچههای بدن نیست. پژوهشگران امید دارند بتوانند این تکنولوژی را بهبود داده و زمانی برسد که نه تنها افراد معلول بلکه افراد عادی نیز از این تکنولوژی به منظور برقراری ارتباط استفاده نمایند
قارچهای سیاهک :
راسته Ustilaginales شامل قارچهای بیمارگر گیاهی بوده و عموما بعنوان قارچهای سیاهک شناخته می شوند. این نام به گرد سیاه توده تلیوسپور برمی گردد که به صورت دوده روی گیاهان بیمار مشاهده می گردند.همه این قارچها به عنوان مولد بیماری، روی اندام زنده فعالیت دارند و مراحل ورت غیربیمارگر می باشند. حدود 1200 گونه از قارچهای سیاهک وجود دارد که در 50 جنس جای می گیرند. این قارچها به حدود 4000 گونه گیاه نهان دانه در بیشتر از 75 خانواده حمله می نمایند و علامت بیماری ایجاد می کنند. با اینکه بعضی قارچهای سیاهک از نظر جغرافیایی به مناطق کوچکی محدود می شوند ولی بقیه در هر جا که میزبان رشد نماید پیدا می شوند. گونه ای که غالبا در همه جا پیدا می شود Ustilago maydis می باشد که سیاهک معمولی ذرت را به وجود می آورد. گونه U. avenae سیاهک آشکار یولاف و گونه Urocystis magica که سیاهک پیاز و گونه های Tilletia بیماریهای سیاهک پنهان را در انواع غلات ایجاد می کنند.
بیماری سیاهک از نظر اقتصادی با اهمیت است، میلیونها دلار خسارت و ضرر روی گیاهان غذایی و زینتی به وجود می آورد. بسیاری از بیماریهای سیاهک که عموما پراکنش زیادی دارند مشکلات جدی روی گیاهان زراعی که مورد تغذیه بسیاری از جمعیتهای دنیا می باشند، ایجاد می کنند. برای مثال بیماریهای سیاهک پنهان اخیرا مشکل عمده در جهان تولید کننده گندم است. مثال دیگر همان سیاهک هندی است (karnal bunt) که بوسیله Tilletia indica ایجاد می شود. ابتدا در منطقه بومی، بیماری ناچیزی بود و گسترش یافته و مشکل عمده ای در بسیاری از مناطق گندم کاری دردنیا شده است. قارچ عامل این بیماری (T.indica) روی پوشش یا قسمت بیرونی جنین میزبان زندگی می کند و چون مواد غذایی گندم از طریق آوندها تامین می شود موجب گرسنگی آندوسپرم جنین می گردد. با اینکه بیماری قسمتی از میزبان را مورد حمله قرار می دهد نام سیاهک محدود یا نیمه به این بیماری اطلاق می گردد. سیاهک پنهان دیگری که به صورت جدی روی گندم فعالیت دارد، سیاهک پنهان معمولی و پاکوتاه نام گرفته است و دو گونه به نام T.tritici و T. laevis و گونه T. controversa عامل این بیماریند. این عوامل بیمارگر مثل سیاهک هندی عمل می کنند گندمها خسارت می بینند و تلیوسپورهای سیاه را به وجود می آورند و بوی اطراف مزرعه به علت تری متیل آمین (حالت بوی ماهی پوسیده) می باشد و سیاهک بدبو نام گرفته اند. بیماری سیاهک موجب آلودگی گندم پایین آمدن ارزش آن برای تغذیه انسان می شود. تعداد زیادی از تلیوسپورها به وسیله هوا در موقع برداشت توزیع می شوند و بیماری را در منطقه توسعه می دهند و حتی در افرادیکه روی گندم کار می کنند حساسیت ایجاد می نمایند.
برای کنترل سیاهک پنهان می توان از قارچ کشها قبل از کشت گندم استفاده نمود. گرچه مواد شیمیایی خوبی برای کنترل سیاهک پاکوتاه نیست ولی ارقام میزبان مقاوم برای کنترل سیاهکها موفق بوده است. در امریکا سیاهک پاکوتاه در مناطق خاصی که با برف مدتی پوشیده می شوند مشکل ایجاد می کند، ولی به هر حال گندمهای صادر شده چین این بیماری را دارند. البته ممکن است گندمها در ابتدا آلوده به قارچ عامل بیماری نباشند ولی داخل انبار و یا وسایل حمل و نقل و سایر موارد ممکن است قارچ بیماری یعنی T. controversa را منتقل نمایند.
با توجه به اهمیت اقتصادی بیماریهای سیاهک بهتر است یکی از آنها مثل سیاهک ذرت با گونه Ustilago maydis مورد بحث قرار گیرد. این بیماری عموما در هر جا که ذرت کشت می شود یافت می گردد، البته ممکن است روی ذرت شیرین نیز خسارت عمده داشته باشد. به هر حال این عامل بیمارگر روی دانه ذرت غده ایجاد می کند و این ذرتها ممکن است به صورت غذا در قسمتهایی از دنیا مورد استفاده باشد و با این حالت آلودگی دانه های ذرت تولید گالهای زیاد را شامل شده است.
خانواده دیگر از قارچها که باعث سیاهک علفهای هرز می شوند متعلق به Caryophyllaceae بوده که آلودگی سیستمیک در میزبان خود ایجاد می کند. تلیوسپورها در پرچمهای گلهای گیاهان آلوده تولید می شوند و با حشرات هاگدانها و شیرابه گلها به سایر گیاهان پخش می گردند، گرچه حضور عامل بیماری به عادت حشره مربوط نمی شود. علفهای هرز معمولی مثل Silene alba و M. ciolacceum گلهای ماده را به گلهای نر منتقل می کنند و هاگ نیز جابه جا می شود.
گونه های زیادی از سیاهک روی گیاهانی که از نظر اقتصادی مهم نیستند واقع می شوند و لذا به صورت ضعیف شناخته شده اند. البته جنس Doassansia گونه های زیادی دارد و در گیاهان آبی فعالیت می کنند، در مناطق پرآب ممکن است گونه های زیادی باشند و یا سیاهکها در سیستم غیرکشاورزی در گیاهان بومی یافت می گردند.
خصوصیات عمومی سیاهکها :
قارچهای سیاهک به نظر می رسند بیمارگر اجباری در گیاهان گلدار باشند و در طبیعت چرخه زندگی دو هسته ای دارند. گرچه قسمتهای متنوعی از گیاهان میزبان ممکن است آلوده باشند، از جمله برگها، ساقه ها، حتی ریشه ها ولی عمدتا قسمتهای گلدار گیاه را مورد حمله قرار می دهند. در بعضی میزبانها آلودگی دائمی وجود دارد زیرا عامل بیماری در زمستان در بافت میزبان باقی می مانند، رشد اولیه در بهار از مناطق آلوده آغاز شده و به مناطق دیگر گسترش می یابد. گفته می شود تعداد کمی از گونه ها مکینه تولید می کنند ولی در حال حاضر شواهد چنین اشکالی را بیان نمی کند. ریسه بعضی گونه ها در بین سلولهای میزبان غیر مشخص رشد می کنند و موجب مرگ سلولها نمی شوند لذا اثر ریسه در سلولها خیلی کم است. جدار ریسه های انتهایی در قارچ سیاهک دارای روزنه کوچک است و شبیه پل ارتباط می شوند که در ریسه دو هسته ای یعنی قارچهای سیاهک بحث می شود. البته ریسه در تقسیمهای انفرادی همیشه دو هسته ای نمی باشند، در مرحله توسعه اولیه ریسه، قسمتها اغلب چند هسته ای و در بعضی گونه ها به نظر می رسد دو هسته ای نمی باشند، در مرحله توسعه اولیه ریسه، قسمتها اغلب چند هسته ای و در بعضی گونه ها به نظر می رسد دو هسته ای دیر توسعه یابد. در بعضی موارد دو هسته ای آشکار تا قبل از اسپورزایی قابل مشاهده نیست. گونه های جور هسته در قارچهای سیاهک بیمارگر نیستند و به راحتی در محیط کشت مغذی ساده رشد می کنند، اصولا گونه های جور هسته مانند مخمرها رشد می نمایند. این سلولها معمولا به Spordia بر می گردد و بیشتر قارچهای سیاهک روی آمیزش ریسه ها آزمایش می شوند. ریسه های دو هسته ای در بسیاری از گونه ها در محیط کشت حاوی اسپوریدی به وجود می آید. رنگ سفید و شکل نخی موجب نمایش عملی دو هسته ای شدن می شوند.
دوهسته ایها به سختی در محیط کشت باقی مانده و سریع شکسته می شوند، به هر حال مرحله دوهسته ای در تعداد کمی گونه برای طول زیاد در محیط کشت رشد می کند. قارچهای سیاهک پنهان Tilletia controversa و سیاهک نیشکر Ustilago scitaminea در محیط کشت، تلیوسپور تشکیل می دهند.
تلیوسپورها و تکثیر :
تلیوسپورها که اسپورهای سیاهک نامیده میشوند، اسپورهای در حال استراحت قارچهای سیاهک می باشند. اینها در توده ای که سوری (sori) نام دارد تشکیل می شوند و در محل گلهای میزبان، جنین بذور، برگها، ساقه ها حتی ریشه ها به وجود می آیند. الگوهای متنوعی در توسعه اسپورها در قارچهای سیاهک یافت می شود، ابتدا میسلیوم در محل اسپورزایی توسعه یافته، در بعضی گونه ها ریسه در فضای بین سلولی در میزبان ایجاد می شود در بعضی دیگر در داخل سلولهای میزبان توسعه می یابند. این حالت توسعه که در داخل سلولها می باشد در سیاهک نواری برگ با گونه U.striiformis واقع می شود.
در بسیاری از بیماریهای سیاهک توسعه ریسه موجب سبززردی (کلروز) و متورم شدن بافت میزبان می شود. به هر حال در گیاهان ذرت آلوده با U.maydis بر اثر پررشدی و پرازدیادی سلولهای میزبان گالها توسعه می یابند.
در تعداد کمی جنس مثل Entyloma و Entorhiza و بعضی گونه های Tilletia تلیوسپورها به صورت انفرادی در انتهای ریسه به وجود می آیند و ممکن است در مرحله رسیدن دارای دم پایه نیز شده و در بعضی گونه ها با وجود قسمتها از یکدیگر متمایز می شوند. در مورد دیگر دیوار ریسه مولد تلیوسپور ژلاتینی است و موجب تغییر پروتوپلاسم به تلیوسپور می گردد . این شرایط موجب تولید کلامیدوسپور در گونه های مختلف می شود و بعضی از آنها به عنوان تلیوسپور نام می برند. در بعضی قارچهای سیاهک میسلیومها قبل از تشکیل تلیوسپور توسعه می یابند و بعضی میسلیومها سترون به نظر می رسند و برای تهیه اسپور رشد نمی کنند. بعضا ستونک درست می کنند که می تواند در تشخیص گونه ها مفید باشد.
بدون توجه به نحوه تولید تلیوسپور به نظر می رسد آنها از ریسه های دوهسته ای به وجود می آیند. در بعضی گونه ها هسته آمیزی در تشکیل تلیوسپور خیلی زود اتفاق می افتد و لذا جوانترین اسپور یک هسته دو برابر می باشد ولی در بقیه گونه ها تلیوسپورها در اواخر دو هسته خواهند شد. میوزها در جوانه زدن تلیوسپورها واقع می شود.
خصوصیات تلیوسپور مثل اندازه، شکل، رنگ و زینتی بودن آنها در طبقه بندی راسته Ustilaginales بااهمیت خواهند بود. سطح زینتی آنها خیلی مهم است وحداقل در سطح گونه ها به کار می رود، الگوهای متفاوت زینتی بودن وجود دارد. بعضی اسپورها مشبک، بعضیها خاردار یا زگیل دار می باشند و بعضیها سطح صافی دارند. بیشتر تلیوسپورها کروی شکل، زرد رنگ، قهوه ای و سیاه رنگ می باشند، ولی رنگهای تلیوسپور در میکروسکپ با رنگ توده آنها یکنواخت نیست و یا اسپوری که در میکروسکپ قرمز رنگ است ممکن است در توده سیاه رنگ به نظر برسد. تعدادی سلول ممکن است با هم مجتمع شده و توپهای اسپور به نظر برسند، این حالت در سلولهای جنسی یا سترون متفاوت است.
تلیوسپورهای بعضی قارچهای سیاهک قادرند برای چند سال در خاک بمانند، جوانه زنی گونه های راسته Ustilaginales در مناطق معتدل مطالعه شده و حرارت کم نیز مورد علاقه آنها بوده است. البته سرما خفتگی را در بعضی گونه های شمال آمریکا می شکند ولی به هر حال، سرما برای جوانه زنی گونه های جنوب لازم نبوده است.
علاوه بر حرارت، رطوبت، PH و وجود یا عدم وجود انواع مواد، نور ممکن است در جوانه زنی تلیوسپور قارچهای سیاهک اثر داشته باشند.
قبل از ترک جوانه زنی تلیوسپور و تشکیل بازدید یوسپور باید توجه شود که این حوادث در قارچهای سیاهک بسیار متنوع است، تنوع به گونه ها و شرایط محیطی بستگی دارد. برای مثال ممکن است میسلیوم اولیه یک شاخه یا چند شاخه و بند دار و بدون بند باشد. در بعضی موارد تعداد کمی و یا هرگز بازیدیوسپور تشکیل نمی شود و میسلیوم اولیه ممکن است ریسه دوهسته ای آلوده کننده تشکیل دهد. معمولا بازیدیوسپورها به صورت جانبی و یا انتهایی تشکیل می شود و اصولا ممکن است بازیدیوسپورها از تعدادی کنیدی که به اسپوریدی ثانویه برمی گردد، و به وجود آید. اگر این نوع بازیدیوسپور در محیط کشت مغذی جایگزین شود با جوانه زنی چند جمعیت تشکیل می دهند و مرحله جور هسته چرخه زندگی سیاهک مشاهده می شود.
نفوذ قارچهای سیاهک به گیاهان میزبان:
با اینکه در بعضی قارچهای سیاهک میسلیومهای اولیه قادرند گیاهان میزبان راآلوده کنند، به طورکلی به نظر می رسد بازیدیوسپور و اسپوریدیهای ثانویه اولین عوامل آلودگی هستند و لذا بیشترین اهمیت را دارند. اندازه کوچک و انتقال طبیعی بازیدیوسپورها و اسپوریدیها مطالعات جریان نفوذ را مشکل نموده است و لذا جزئیات نسبتا کمی از اهمیت این حادثه دانسته شده است. با اینکه جنسهای زیادی در مورد چگونگی داخل شدن قارچهای سیاهک به درون میزبان وجود دارد، بسیاری از این اخبار در تضاد هستند و تعداد کمی با میکروسکپ الکترونی و نوری پیشرفته تائید می شوند و در نتیجه خیلی مطالب برای یادگیری جنبه های زیست شناسی راسته Ustilaginales باقی مانده است.
در مورد سیاهک هندی گندم به وسیله T.indica شواهد قوی تهیه شده است به گونه ای که جوانه زنی اسپوریدی ثانویه از طریق روزنه های استومات روی پوشینه (گلوم و گلومل) داخل میزبان می شود.
خانواده یوستیلاجیناسه (Ustilaginaceae) :
اعضای این خانواده میسلیوم اولیه بند تولید می کنند و بازیدیوسپورهای جانبی و هم انتهایی تشکیل می شود. میسلیوم اولیه از تلیوسپورها که بزودی پس از تشکیل و فقط بعد از یک دوره خواب جوانه می زنند به دست می آیند. در بعضی گونه ها میوزها در تلیوسپور وقوع می یابد و هسته به طرف میسلیومهای اولیه حرکت می کند و جداره ها سلولها را از هم جدا می کند و میسلیومها چند سلولی و چند هسته ای می گردند.
خانواده Ustilaginaceae شامل تعدادی گونه مهم اقتصادی است و برای مثال گونه Ustilago avenae عامل سیاهک آشکار یولاف، گونه U.nuda عامل سیاهک آشکار جو، گونه U.tritici عامل سیاهک آشکار گندم و گونه U.maydis عامل بیماری سیاهک ذرت می باشد. علاوه بر اهمیت اقتصادی گونه ها، بعنوان عوامل قابل استفاده در تجزیه آزمایشی و آزمایشگاههای ژنتیکی به کار می روند. مراحل جور هسته و هاپلوئید گونه U.maydis به راحتی در محیط کشت ساده و اراضی کشت رشد می کنند. با تلقیح برگهای جوان به وسیله اسپوریدی ممکن است کمتر از دو هفته تلیوسپورها به دست آیند و تلیوسپورها قابل جداسازی خواهند بود.
بیماری سیاهک ذرت به وسیله تولید انواع گالها در اندازه های مختلف تشریح می شود. عامل بیمارگر در نهایت تلیوسپورهای سیاه و پودری تولید می کند. هنگامی که جنین آلوده می شود بیشتر خسارت روی میزبان انجام می شود، معمولا آلودگی در خوشه، کاکل، برگهای جوان ریشه های میزبان ایجاد می شود.
خانواده تیلشیاسه (Tilletiaceae) :
روش جوانه زنی اعضای این خانواده با آنچه در خانواده Ustilaginaceae رخ می دهد متفاوت می باشد.
از اعضای شناخته شده خوب در این خانواده جنس Urocystis می باشد. گونه های این جنس اسپورهای توپی دائمی دارند و لایه بیرونی در سلولهای سترون خواهند داشت و با یک یا چند تلیوسپور احاطه می گردند. گونه U.cepulae عمومی است و بعضی مواقع عامل بیماری در پیازها می باشد، جنس Entorrhiza وابسته به خانواده Tilletiaceae بوده ولی خیلی کوچک است. اعضای این جنس در خانواده های Cyperaceae , Juncaecceae آلودگی ریشه ایجاد می کنند. تنها ظهور بیماری تولید تورم گال شکل روی ریشه می باشد.
بهمن
Apr-23-2008, 18:58
شاخه کیتر یدیومیکوتا (Chytridiomycota) :
شاخه کیتریدیومیکوتا دارای تنها یک رده chytridiomycetes بوده و فقط اعضایی از سلسله قارچها را در بر می گیرد که در برخی مراحل زندگیشان سلولهای متحرک تولید می کنند. به استثنای چند گونه با سلولهای پرتاژک (polyflagelate)، سلولهای متحرک این موجودات (زئوسپورو گامت) تنها یک تاژک شلاقی عقبی دارند. صفات دیگر گونه های این شاخه که متداول بوده وممکن است سایر قارچها هم آنها را نشان دهند عبارتند از :
(1) ساختار پیوسته یا تال، هم یاخته (coenocytic) ساختار کروی یا تخم مرغی شکل، ریسه ساده طویل یا میسلیوم خوب توسعه یافته
(2) تبدیل تخم به یک اسپور استراحتی یا مقاوم یا (resting spore) اسپورانژیوم استراحتی، یا در یک راسته، رشد آن به یک تال دیپلوئید ختم میشود. دیوار سلولی این قارچها حاوی کیتین و گلوکان است. سلولز فقط در یک گونه ثابت شده است ؛ های پاتوژن گیاهی از جمله : ,Olpidum ,synchytrium physoderna maydis و Urophlyctis alfalfa
گونهS.endobioticum باعث بیماری مهمی در سیب زمینی به نام بیماری زگیل سیاه می گردد در حالی که O.brassicae بیمارگر ریشه کلم است و ناقل مهمی برای تعدادی از ویروسهای گیاهی بااهمیت اقتصادی، می باشد.
گونه هایی اندوبیوتیک (endobiotic) هستند که کاملا داخل سلولهای میزبانشان زندگی می کنند. تال بالغ توسط دیوار سلولی احاطه می شود. گونه های دیگر، اپی بیوتیک (epibiotic) هستند و اندامهای تولید مثلی خود را در سطح میزبان زنده و برخی تکه های مواد آلی بی جان تولید می کنند و اندامهای جذبی آنها درون یافتهای مرده یا زنده که روی آن زندگی می کنند فرورفته است. در اشکال هولوکارپیک (holocarpic) تال به طور کامل ممکن است به یک یا چند اندام تولید مثلی تبدیل شود. در گونه های دیگر، اندامهای تولید مثلی فقط از یک قسمت تال یا شبه ریشه یا ریزوئید مجزا ایجاد می شود که آنها یوکارپیک (eucarpic) نامیده می شوند. هر تالی که فقط یک مرکز رشدی و تولید مثلی واحد تولید کند، تک مرکزی یا تک کانونه (monocentric) است. اگر بیش از یک مرکز رشدی تولید گردد، چند مرکزی یا چند کانونه (polycentric) نامیده می شود.
تکثیر غیرجنسی در کیتریدها توسط زئوسپورهاست که در اسپورهاست که در اسپورانژ تولید می شوند. در اوایل توسعه، اسپوانژ حاوی پروتوپلاسم تقسیم نشده یا هسته های فراوان است. همچنانکه اسپورانژیوم توسعه می یابد کل پروتوپلاست به بخشهای تک هسته ای کوچک و فراوان تقسیم می شود که هر یک به صورت زئوسپوری با تاژک عقبی در می آیند. زئوسپورها ممکن است زمانی که اسپورانژیوم تخلیه می شود از طریق یک یا چند پستانک (papilla) ظاهر شوند. یک پستانک یا پاپیل تخلیه (discharge papilla) در دیوار اسپورانژیوم یا در نوک لوله خارج شده از آن تشکیل می شود.
در برخی گونه ها تجمع ریبوزومی، ساختار مشخص و جالبی است که کلاهک هسته ای (nuclear cap) نامیده می شود.
روشهای گوناگون پلاسموگامی کیتریدها :
1- آمیزش پلانوگامتی (planogametic copulation) :
الف) تلقیح پلانوگامتهای همسان : دو گامت که از نظر شکل ظاهری مشابه اما از نظر فیزیولوژیکی متفاوتند، در آب شنا کرده و برای تشکیل یک زیگوت متحرک ترکیب می شوند، در برخی گونه ها، گامتهای حاصله از یک گامتانژیوم در محل تولید ترکیب نخواهند شد.
ب) تلقیح پلانوگامتهای غیرهمسان: یکی از پلانوگامتها به طور قابل توجهی بزرگتر از دیگری است. ترکیب در آب انجام میشود و یک تخم متحرک تشکیل می گردد.
ج) باروری یک گامت ماده غیر متحرک (تخمک)
توسط یک گامت نر متحرک (آنتروزوئید) :
گامتهای متحرک از گامتانژ نر (گاهی به نام آنتریدی) به داخل آب آزاد می شوند و شنا می کنند. برخی از آنها به گامتانژ ماده (گاهی به نام ااگونیوم) می رسند. سپس به گامت نر داخل ااگونیوم می شود و با تخمک درون آن ترکیب می گردد.
2-آمیزش گامتانژی (gametangial copulation) :
در کیتریدها این روش توسط انتقال پروتوپلاست کامل یکی از گامتانژیومها به داخل دیگری انجام می شود.
3- سوماتوگامی یا تن آمیزی (somatogamy) :
این روش ترکیب ساده ساختارهای رویشی است. در برخی کیتریدها ترکیب میان رشته های ریزوئیدی مقدمه ای برای تشکیل یک اسپور استراحتی است.
راسته اسپیزلومیستال ها (spizellomycetales) :
جنس Olpidium عضوی از راسته Spizellomycetales است که نزدیک 30 گونه انگل گیاهی اندوبیوتیک و هولوکارپیک روی جلبکها، خزه ها و گرده، برگ و ریشه های گیاهی گلدار دارد. توسعه در این جنس اگزوژنوس مونوسنتریک است. یکی از گونه های بسیار معروف O.brassicae است که ناقل تعدادی از ویروسهای گیاهی است. این گونه عموما به ریشه های کلم حمله می کند.
راسته کیتریدیالها (chytridiales) :
جنس Synchytrium :
آنها قارچهایی اندوبیوتیک، هولوکارپیک با اسپورانژ فاقد دریچه (Inoperculate) هستند. در این جنس تال به صورت کلنی بوده و توسعه آن اگزوژنوس چند مرکزی یا پلی سنتریک است و به چندین اندام تولید مثلی (اسپورانژ یا گامتانژ) تقسیم می شود که با یک غشای عمومی پوشش یافته و یک سور را تشکیل می دهند. بهترین گونه شناخت شده این جنس S.endobioticum است. قارچ باعث برزگ شدن سطح سلولها (hypertrophy) و افزایش تعداد آنها (hyperplasia) در سیب زمینی آلوده شده و آنها را به بافتهای زگیلی تبدیل می کند. غده ها هم ممکن است به بیرون از خاک توسعه یابند، که در این صورت آنها سبز بوده و توده ای از بافتهای برگ مانند به وجود می آورند.
بهمن
Apr-23-2008, 18:59
قارچ چیست؟
قارچ، ميوهاي از تيرهي رويندگان قارچي است؛ مشابه سيبي بر يكي درخت. بيشتر قارچها، بهدليل تشكيل كولوني به جذب مواد مغذي از چوب، برگهاي فرو افتاده و تركيبات موجود در خاكو غيره، قابل مشاهده نيستند. به عنوان يك مجموعه، قارچها ميتوانند بر سطح هر منبعي كهداراي كربن باشد، به شكل لايهاي رشد كنند. يك گياه قارچي از تارهاي شاخه شاخه ولولهاي شكل متعددي تشكيل شده است كه Hyphae نام دارند. مجموعه Hyphae ها راميسيليوم مينامند. بسياري از گياهان قارچي، كه برخي از قارچها را نيز شامل ميشود،Soprophyte (پودهزي) هستند و غذاي خود را با تشكيل كولوني بر تركيبات ارگانيك مردهبدست ميآورند. اگر يك ميسيليوم پژمرده شود، همچنان انرژي كافي را براي باز توليد خود داراخواهد بود. هنگامي كه تركيبات دما، رطوبت نسبي، ميزان دياكسيد كربن و...همگي مناسبباشند، گياهان قارچي ساختار پيشرفتهاي را سازمان ميدهند كه همان قارچ آشناست. قارچها،ميليونها هاگ را ميپراكنند كه عملي مشابه دانهي گياهان دارند. شماري از اين قارچهايپودهزي، براي قارچهاي قابل خوردني كه به عمل ميآورند، كشت ميشوند.
برخي از اين قارچها انگل هستند و بر گياهان، جانوران و يا ساير قارچها ميزيند. برخيانگلها، بيماري زا و مضرند و برخي نيز سودمند مشاركت دو طرفهي قارچي كه در ريشهي گياهيزندگي ميكند (گياهي كه مواد قندي قارچ را تلقين ميكند) با آن گياه (كه تركيبات معدني را ازقارچ دريافت ميكند)، را Mycorrhiza مينامند. بسياري از قارچها، در رابطهاي Mycorrhiza با درختان به سر ميبرند. و درست به همين دليل است كه جنگلها نسبت به جويندگان قارچ بسيارسخاوتمند از: برخي از قارچها، مانند پودكيني، ماتسوتا كه و چانتلوز، جزو قارچهاي ميكور ميزانهستند و به هيچ وجه قابل كشت نيستند. مگر آنكه خود آن درختان نيز كشت شوند. اين قارچها،گاهي اوقات در فروشگاهها يافت ميشوند؛ وانگهي همگي آنها از جنگل جمعآوري شدهاند.
قارچهاي بسيار مرغوب چيستند؟
محبوبترين قارچي كه امروزه در ايالات متحدهي امريكا مصرف ميشود، قارچهاي دكمهايسفيد هستند. از آنجا كه اين قارچ، بازار را در تصرف خود دارند. بسياري قارچ ديگري را بهترينقارچ موجود ميشناسند. پورتوبلو (Portobolle) محبوبترين قارچ مرغوب است. با اين همه،اين قارچ تنها، نژاد قهوهي قارچ دكمهاي سفيد است. در ايالات متحده، قارچهاي مرغوب ديگرعبارتند از: Enoki, Oyster, Shiitake چند قارچ قابل كشت ديگر نيز وجود دارد، اما به شكلگستردهاي در دسترس نيستند.
از چه سطوح كشتي براي رشد قارچ استفاده ميشود؟
اگر چه قارچهاي دكمهاي عادي، بر لايهاي از كود نباتي ميرويند، بشيتر قارچهاي مرغوب، برسطحي از خك اره كه به آن مواد مغذي ديگري افزوده شده است. رشد داده ميشوند. بيساري ازانواع چوب مناسبند، اما در اين ميان، توسكا و بلوط بهترينها هستند. سدر و ماهوت در برابرعسل تشكيل كلني توسط گياهان قارچي مقاومند و نبايد مورد استفاده قرار گيرند. صنوبر نيز ازآنجا كه قارچ كاشته شده توسط صمغ درخت خنثي ميشود، نامناسب است. درشتي دانههايخاك اره بايد به اندازهي دندانههاي ارههاي معمولي باشد.
تراشههاي بزرگتر نيز ميتوانند اضافه شوند. خاك اره را بايد در دماي ْF250 در فشاري درحدود 15 پاوند بر اينچ مربع استريليزه كرد. اين عمل را ميتوان در يك ديگ و يا يك مخزنگرمايي ـ فشاري انجام داد. دستورالعمل معمول براي تهيه خاك ارهي مغزي شده عبارت است از:
76% خاك اره، 12% اوزن، 12% سبوس و بعلاوه 65% رطوبت. در نظر داشته باشيد كهدستورالعملها هميشه مبتني بر وزن عوامل مذكور در حالت خشك (وزن خشك) هستند، چراكه گنجايش رطوبت اين عوامل (عناصر)، تغيير ميكند. ظرف صنعتي استاندارد براي رشد دادنقارچ خوردني مرغوب در خاك اره، يك ظرف پلاستيكي مقاوم در برابر گرماست كه يكصفحهي فيلهي به آن متصل شده است؛ اين فيلتر، اجازهي مبادلهي گاز را ميدهد اما از ورودميكروارگانيسمهاي آلوده كننده جلوگيري ميكند.
قارچها چگونه رشد داده ميشوند؟
راههاي بسياري براي رشد دادن قارچها وجود دارد؛ اما توليد هميشه در سه مرحله اصليانجام ميشود. بذرپاشي، كاشت در زمين، تبديل به ميوه به بار آمدن بذرها، تشكيل كامل كلنيِ برروي سطحي مناسب است كه با تلقيح آن سطح ادامه مييابد؛ اين عمل را بذرپاشي ميگويند گامدوم، كاشت، مرحلهي رشدي است كه در آن Pinhead (كلاهكها) تشكيل ميشوند. كلاهكهاجوانههاي كوچك ميسيليوم هستند كه در انتهاي تكامل خود، تبديل به قارچها ميشوند. تمامگونههاي قارچها، براي كاشت نيازمند مجموعهاي (set) از شرايط زيست محيطي اي هستند كهميان شرايط براي رشد بهينهي ميسيليان، تفاوت ميكند. اگر چه نه همهي آنها، اما بيشتر افرادقارچها را در دماي پايينتر از حالت تشكيل كولوني بر سطح خاك، كشت ميكنند. آخرين مرحله،تبديل به ميوه، تكامل كلاهكها به قارچهاي بالغ است.
گام اول: بذرپاشي، پس از اينكه سطح خاك مخصوص كشت آماده گرديد و در ظرفپلاستيكي يا هر مخزن ديگري استريليزه شد، دانهها بدان اضافه ميشوند. دانهها، بر سطحاستريلزه ميرويند بوسيلهي دستگاه پرورش دهندهي توليد ميشوند و يا از گلخانههاي پرورشقارچ بدست ميآيند. درصد خلوص بذر بسيار حياتي است. در بسياري از قارچهاي مرغوب،بذر به نسبت 205% يا بيشتر وزن خشك سطح خاك بدان اضافه ميشود. پس از اينكه ظرفپلاستيكي با دقت مسدود شد، با تكان دادن ظرف، بذر را بر سطح خاك اره پخش ميكنند.سيستم به اندازهي قارچ، سطح خاك به طور كامل به مدت 2 تا 6 هفته توسط ميسيليوم پوشانيدهميشود. دماي محيط در زمان پخش بذر بايد حدود 70 ـ 75 فارنهايت باشد.
گام دوم: كاشت در زمين: براي شكل دادن فرم قارچها، دماي محيط براي 2 راز تا 2 هفته كاهشداده ميشود، ميزان CO2 با وارد كردن هواي تازه كاهش داده ميشود و بر محيط نور تابانيدهميشود. اغلب، ظروف پلاستيكي باز هستند و به اطاقك رشد منتقل ميشوند.
گام سوم: توليد ميوه: ظرف پلاستيكي كه اينك دانهها در آن در حال رشدان، در اطاقك رشد،در دمايي پايين (63 فارنهايت براي بيشتر قارچها، دماي ميانگين مناسبي است) و نيز رطوبتنسبي بالا 85 - 95%) قرار داده ميشود. اگر چه، قارچ دكمهاي سفيد معمولي نيازي به تامينتابش نور ندارد، تمامي اشكال ديگر قارچها كه در اين جا مورد بررسي قرار ميگيرند، براي رشددرست نياز به نور دارند. براي بيشتر قارچهاي مرغوب، ظرف پلاستيكي را ميتوان پس از فرآيندبذرپاشي، از رويهي خاك اره جدا كرد. در توليد قارچهاي Oyster Lions mane, سوراخهاييدر ظرف پلاستيكيي بوجود ميآورند و قارچها اجازه مييابند تا از ميان اين سوراخها رشد كنند.در توليد قارچ shiitake، ظرف پلاستيكي، معمولاً به طور كامل برداشته ميشود چرا كه اين نوعقارچ، پوستهاي سخت بر سطح خاك اره ميسازد.
آيا تجهيزات ويژهاي براي رشد دادن قارچ لازم است؟
اگر چه، فرآيند بذرپاشي در هر اطاق پاكيزهاي با دمايي كنترل شده و هوايي تازه، قابل انجاماست، اما تكنيكهاي استريل براي كشت موفقيتآميز بسياري از قارچها، مطلقاً ضروري است.بيشتر روشها شامل: يك سكوي آزمايشگاهي پاكيزه، (ضد عفوني شده توسط 35% ليسول،10% سفيد كننده يا 70% اتيل الكل). دستان شسته شده (شسته شده توسط صابون و ريختنالكل)؛ لباسهاي تميز؛ و هواي پاكيزه با اين كه فيلترهاي HEPA كاملاً در محيط كاري شماضروري نيستند، (ذرات با اندازهي ـ 0.3 ميكرون با 99% بازده از محيط زدوده ميشوند و تنها 1ذره از 10.000 ذره در آن اندازه، از ----- عبور ميكند) بسياري از پرورش دهندگان قارچ، دستكم، يك عدد از اين فيلترها را مورد استفاده قرار ميدهند. توجه كنيد كه هواي پاكيزه بدون فيلتر،حاوي 200.000 ذرهي غبار در هر فوت مكعب است و در مناطق شهري اين ميزان، به 10 برابرافزايش مييابد.
اطاقك رشد نيازمند شرايطي ويژه است. بعلاوه وسايل خنك كننده( 65 تا 63 فارنهايت)رطوبت ميبايست در حدود 95% (يا حتي در برخي شرايط؛ بيشتر) حفظ شود و نيز وسايليبراي به حركت درآوردن هواي راكد حركت شديد هوا، حتي در محيطي با رطوبت بالا، باعثخشك شدن سطح زير كشت ميشود و ميتواند به كلاهكهاي حساس، آسيب رساند. بوجودآوردن محيطي بسيار مرطوب براي پرورش قارچ نيز شايد عامل محدوديت پرورش خانگي اينمحصول باشد. آكواريومها، چادرهاي پلاستيكي، يخدانها و با منفذهاي سلوفوي و...مخزنهاي مفيد رطوبتي هستند كه براي پرورش قارچ مورد استفاده قرار ميگيرند. يك راه برايمرطوب كردن يك مخزن اين است كه جرياني از هوا را (توسط يك پمپ هواي آكواريوم ساختهشده از سنگ متخلخل) بر سطحي از آب نسبتاً گرم و زائده شود رطوبت زاهاي گوناگوني توسطپرورش دهندگان خانگي قارچ مورد استفاده قرار ميگيرد.
قارچ (Agrocybe Aegerita) Black Poplar
اين قارچ نسبتاً در شرايط آساني رشد ميكند اما محصول آن عموماً كم است. از آنجا كهكلاهكها نسبت به خشكي بسيار حساسند، لايهاي از كود مرطوب خزه پوستهي خرد شدهيصدف (به نسبت حجمي به ترتيب 9 به 1) بر روي هر رديف ريخته ميشود: اين امر ميتواندباعث افزايش محصول شود.
قارچ دكمهاي معمولي
قارچ سفيد دكمهاي و گونههاي متعدد آن، (Portobelini , Portobello, Crinmini) برلايههاي كود ميرويند. ماشوره، به تنهايي يا به همراه كود فضلهي اسب، مواد اوليهي كود موردنياز است و عوامل ساختاري و شيميايي لازم را فراهم ميكند. ماشوره، با نيتروژن غني شده استنيتروژن در حالت مواد زائد گوناگون كشاورزي همچون تخم پنبه و فضلهي مرغ به كود اضافهميشود. در خلال توليد كود، كيفيات فيزيكي ويژهاي (تراوايي هوا و آب كه موجب نگهداريفوائد آنان ميشود) و خصوصيات شيميايي (در دسترس بودن مواد مغذي براي قارچ و دستنيافتن ارگانيسمهاي رقيب به آن مواد) به عنوان فاكتوري ارگانيك پديد ميآيند و مصرفميشوند و در اين ميان حرارت به مدد توليد ميكروارگانيسمها توليد ميشود دماي مورد نياز براياين فرآيندها توسط تودهاي از ماشوره در اندازهاي معين تامين ميشود. اطاقكهاي خاصي دما،رطوبت و هواي تازهي كنترل شده، همگي براي فراهم آوردن شرايط صحيح پاستوريزه كردنلازماند و نيز براي شرايط پايان فرآيندهاي توليد كود مگر در حالتي كه كود از پيش مهيا باشد،روند پرورش قارچ دكمهاي سفيد بسيار تكنيكي و عموماً در وادي تخصص پرورش دهندگانتفريحي يا خردهپاست.
قارچ Enoki يا قارچ سوزن طلايي( (Flammulina Velutipe
اين قارچ، بر روي لايهاي استاندارد خاك اره ميرويد و ميتوان آن را در محفظههاي متعددي،از آن جمله: ظرف در بستهي فيلتردار، پرورش داد. از نقطه نظر اقتصادي، قارچ Enoki را معمولاًدر شيشههاي دهان گشاد، بسيار شبيه ظرفهاي مربا، پرورش ميدهند. پس از آنكه كاشت آنهاانجام شد، قارچ در تاريكي و در محيطي سرد، با روكشهايي بر روي شيشهي محتوي، برايافزايش ميزان CO2، ميرويد. اين قارچ تقريباً كلاهك ندارد و حلقه حلقه است. قارچ Enokiنسبتاً سريع ميرويد.
قارچ Maitake يا مرغ درختان (Grifola frondosa)
Nameko از محبوبترين قارچها در ژاپن است. اين قارچ بر لايهاي خاك ارهي استاندارد، درظروف در بستهي فيلتردار ميرويد. براي رويش بذر، محفظه را بايد از رطوبت بسيار بالا با مِهاندك، محافظت كرد.
قارچ يال شير (Hericiam Erinaceas)
اين قارچ خوراكي، كه مزهاي همچون گوشت خرچنگ دارد، بر لايهي خاك ارهي استانداردميرويد. برخلاف بسياري از قارچها، اين قارچ داراي پرههاي حاوي هاگ نيست؛ در عوض،هاگهاي آن توسط دندانههايي كه همچون تنديلهاي ظريفي از زير آن آويزان هستند، توليدميشود.
قارچ صدف صورتي (انواع Pleurotus)
قارچ صدف صورتي، راحتترين قارچ خوردني براي پرورش دادن است. انواع گوناگون قارچصدفي را ميتوان برمنابع گوناگون سلولز (كه شامل تركيبات قهوه باشد) روزنامه و پوستهي غلاتپرورش داد. خاك ارهي استاندارد نيز، سطح كشت مناسبي براي رويانيدن اين قارچ است. شايدبهترين خاك مورد استفاده براي كشت اين قارچ، براي پرورش دهندگان آماتور، پوستهي خردشدهي گندم باشد، كه با قرار دادن به مدت يك ساعت در زير آب با دماي 165F درجه(فارنهايت) پاستوريزه شده است. ظرفهاي در بستهي پلاستيكي كه با خاك اره پر شدهاند و باگرده و بذر آغشته شدهاند نيز معمولاً مورد استفاده قرار ميگيرند. در مزارع بزرگ و وسيع، ظروفپلاستيكي بذر طويلي از سقف آويزان هستند. سوراخهايي، به منظور مبادلهي هوا و نيز رشدقارچها از ميان آنها، روز ظروف تعبيه شده است.
بذرافشاني را ميتوان بدون فيلترهاي مخصوص انجام داد چرا كه قارچهاي گونهيPleurotus بسيار سريع رشد ميكنند و بيشتر ارگانيسمهاي موجود در خاك اره را در اين رقابت،از ميان ميبرند.
قارچ Reishi يا قارچ جاودانگي(Ganoderma lucidum)
اين قارچ سفتتر از آن است كه بتوان آن را تناول كرد اما به دليل شهرتش در دارا بودن فوائددارويي، در چاي از آن استفاده ميشود. اين قارچ بر رويهي خاك اره رشد ميكند و در مخازنگوناگوني نيز قابل پرورش است؛ از جمله محفظهي سرپوشيدهي ----- دار.
قارچ ShittaRe يا قارچ بلوط سياه( (Lentinula edodes
قارچ Shittake نسبتاً در شرايط آساني ميرويد و يكي از محبوبترين قارچها در ايالاتمتحدهي امريكا است. امروزه، پرورش دهندگان قارچ در ايالات متحده، سالانه بيش از 5 ميليونپوند از اين قارچ را توليد ميكنند. به مانند بسياري ديگر از قارچهاي مرغوب، Shittake درمخازن سربستهي پلاستيكي بر روي لايههاي خاك اره ميرويد (در محيطهايي مرطوب ترز ازايالت كاليفرنيا، اين قارچ در محيطهاي طبيعي نيز ميرويد.) نژادهاي گوناگون اين قارچ،زمانهاي متفاوتي ريا در امر جوانه زدن به خود اختصاص ميدهند. برخي اين مدت حدود 45روز است در حاليكه بعضي ديگر براي تكميل عمل به 100 روز احتياج دارند. پس از اين مدتظرف پلاستيكي برداشته ميشود و قالبها به اطاقك رشد منتقل ميشوند؛ (با دمايي در حدود63F فارنهايت و رطوبتي در حدود 75 - 90%) پس از برداشت محصول، قالبها، را ميتوانبراي عمل رشد ديگري آماده كرد. براي اين منظور قالبها را آنقدر در آب خيس ميدهند تا اينكهآن قالب به وزن اوليهي خود باز گردد.
چگونه ميتوان يك قارچ سمي را بازشناخت؟
هرگز هيچ قارچي را نخوريد مگر اينكه مطلقاً از نوع آن مطمئن شده باشيد. داستانهايي كهعوام در مورد آزمايش كردن قارچها، براي دريافت اينكه آيا سمي هستند يا نه، البته بيفايدهاند.قارچهاي سمي به خاطر تجربهي اشخاصي بداقبال شناخته شدهاند. خوردن قارچهاي وحشيميتواند خطرناك باشد.
diamonds55
قارچ شناسی به معنای Mycology میباشد. این واژه توسط پیرآنتونیو میچلی در قرن 18 پیشنهاد شده است. قارچها موجوداتی هستند فاقد کلروفیل و تولید اسپور مینمایند. ساختمان سلولی یوکاریوتیک داشته دارای هسته (به تعداد یک عدد یا بیشتر) میباشد. هستهها ممکن است هاپلوئید یا دیپلوئید باشند.
سلولهای قارچی دارای دیواره سلولیاند. قارچها برخلاف گیاهان عالی فاقد اندامهایی نظیر ریشه ، ساقه ، برگ و سیستم آوندی میباشند. پیکره قارچها ممکن است تک سلولی یا پرسلولی باشند. پیکره قارچها از رشتههای متعددی به نام ریسه یا هیف تشکیل مییابد. تولید مثل در آنها به طریق جنسی یا غیر جنسی میباشد که تکثیر غیر جنسی رایجتر است.
مشخصات عمومی قارچها
1. یوکاریوتیک هستند.
2. فاقد کلروفیل و آوند هستند.
3. دارای دیواره سلولیاند.
4. تکثیر از طریق جنسی و غیرجنسی صورت میگیرد.
5. پیکره قارچ تکسلولی یا پرسلولی میباشد.
6. قارچها از طریق پدیده جذب ، مواد غذایی خود را بدست میآورند در حالی که گیاهان از طریق فتوسنتز و جانوران از طریق بلع این مواد را تهیه میکنند.
7. قارچها فاقد تحرکند که این تفاوت آنها را با جانوران و تشابه آنها را با گیاهان نشان میدهد. از حرکات جزئی قارچها میتوان به حرکت قارچهای آمیبی شکل اشاره کرد که با ایجاد پاهای کاذب روی ماده غذایی جابجا میشوند. اسپورهای قارچها دارای تاژک میباشند که موجب جابجایی آنها میشود. همچنین حرکت سیتوپلاسمی درون سلولی نیز نوعی حرکت محسوب میگردد.
ساختمان شیمیایی سلولی در قارچها
درصد بیشتری از وزن سلولهای قارچی را آب تشکیل میدهد مخصوصا در سلولهای جوان 90 درصد وزن تازه میسیلیوم را آب تشکیل میدهد. اسپورها نیز دارای درصد بالایی از آب میباشند کربن 44 - 40 درصد ، ترکیبات معدنی 5 - 2 درصد ، فسفر ، پتاسیم ، سیلیس و آلومینیوم در ردیف ترکیبات معدنیاند. ترکیبات ازته 7 - 2 درصد که پروتئینها ، اسیدهای نوکلئیک و اوره را شامل میشوند. قسمت اعظم کربنی که قارچها میگیرند به صرف ساخت دیواره سلولی میرسد.
دیواره در قارچها حاوی درصد زیادی کیتین میباشد. در بررسیهای انجام گرفته روی 25 قارچ میزان کیتین متغیر و بین 2.6 تا 26.2 درصد وزن خشک قارچ گزارش شده است. قارچهای تک سلولی نظیر مخمرها مقدار کمی کیتین تولید میکنند. ماده اصلی دیواره قارچها گلوکان و مانّان میباشد. همچنین سلولز ، لیگنین ، کالوز و کیتوزان نیز از دیگر مواد تشکیل دهنده دیواره سلولی قارچها میباشد. انواعی از هترو پلی ساکاریدها ، پروتئینها ، چربیها و مواد معدنی نیز ممکن است وجود داشته باشند. Mg و Ca از مواد معدنی رایج در ساختمان دیواره سلولی است.
نحوه زندگی قارچها
قارچها به حالت ساپروفیت روی مواد در حال پوسیدن و یا در فرم انگل یا پارازیت روی سایر موجودات زنده زندگی میکنند. موجودی که مورد حمله قارچ قرار میگیرد host یا میزبان نامیده میشود. قارچها از نظر تامین مواد غذایی با گیاهان تفاوت دارند. و به تنهایی قادر به ساختن مواد غذایی مورد نیاز خود نمیباشند.
اگر مواد قندی از قبیل گلوکز ، ساکاروز و مالتوز در اختیار قارچها قرار گیرد با استفاده از تر کیبات آلی میتوانند پروتئینهای مورد نیاز خویش را بسازند. تیامین و بیوتین از ویتامینهای مورد نیاز قارچها میباشند. قارچها در درجه حرارت 0 تا 30 درجه سانتیگراد میتوانند زندگی کنند. درجه حرارت مناسب برای قارچها 20 تا 30 درجه میباشد. PH مناسب برای رشد قارچها 6 = PH است ولی دامنه PH از 12 - 2 متغیر است.
سیتولوژی قارچها
دیواره سلولی در قارچها وجود دارد. هستهها کوچک و قابل رویت با میکروسکوپ نوری میباشند. غشای هسته دو لایه بوده و حاوی منافذی است. به هنگام تقسیم میتوز ، غشای هسته ناپدید نمیگردد هستکها نیز به هنگام تقسیم باقی میمانند. ولی در هنگام تقسیم میوز غشای هسته و هستکها ناپدید میگردند. شبکه آندوپلاسمی در قارچها نیز از دو غشای موازی هم تشکیل مییابد.
شبکه آندوپلاسمی در سلولهای جوان مشخصا دیده میشوند ولی در سلولهای مسنتر جزئی و کم بوده و یا ممکن است قابل رویت نباشد. ریبوزومها نیز وجود داشته و پراکنده در سیتوپلاسم سلولی میباشند. در سلولهای قارچی میتوکندری هم یافت میشود. دستگاه گلژی نیز وجود داشته و از واحدهای دیکتیوزومی تشکیل مییابد. واکوئلها در سلولهای جوان به تعداد زیاد و در سلولهای مسنتر به تعداد کم ولی اندازه بزرگتر دیده میشود. مواد ذخیرهای در سلولهای قارچی عمدتا در فرم گلیکوژن و چربی میباشد.
ریخت شناسی قارچها
در قارچهایی که تک سلولیاند پیکره قارچ از یک سلول تشکیل مییابد یا ممکن است پیکره قارچ به صورت پلاسمودیوم باشد. پلاسمودیوم یک توده سیتوپلاسمی چند هستهای و فاقد دیواره سلولی است. در غالب قارچها اندام رویشی از ساختمان لولهای به نام هیف و یا ریسه تشکیل شده است. هیفها شفاف و میکروسکوپیاند و قطر آنها متغیر است. هیفها در جهات مختلف رشد مییابند. رشد اصلی هیف از بخش انتهایی آن انجام میگیرد. به مجموعه هیفها میسیلیوم اطلاق میگردد. دیواره عرضی در هیفهای دیوارهدار وجود داشته به نام سپتوم نامیده میشود. دو نوع دیواره عرضی ممکن است در ساختمان هیفهای دیوارهدار قابل تشخیص است.
* دیواره اولیه یا اصلی: که این دیواره همزمان با تقسیم سلولی تشکیل میگردد.
* دیواره نابجا: که به تقسیم سلولی مربوط نبوده ممکن است در محل آسیب دیدگی برای ترمیم ایجاد گردد یا برای جدا ساختن بخش مسن هیف از بخش جوان تشکیل گردد یا دیوارهای که برای تشکیل اندامهای زایشی بوجود میآید. هیفها ممکن است دیوارهدار باشند Septatehypha یا بدون دیواره عرضی None Septatehypha که در هیفهای دیواره در دیواره ممکن است شدیدا متخلخل باشد در فرم پلاسمودسما و یا ممکن است ناقص تشکیل شود.
ساختمان رویشی در قارچها
ساختمان رویشی یا پیکره قارچها به نام تال (Tallus) نامیده میشود در اغلب قارچها تال مجموعهای از هیفها یا ساختمان میسیلیومی است. هیفها وقتی در هم تنیده میشوند بافتی را ایجاد میکنند که به نام پلکتانشیم نامیده میشود.
انواع ساختمان رویشی
1. پروزئانشیم: از هیفهای موازی هم تشکیل مییابد و بافت همبند سستی را بوجود میآورد.
2. پسودو پارانشیم: بافتی است که در آن طول و عرض هیفها یکی شده و ساختمان شبه پارانشیمی تشکیل میگردد که خیلی شبیه پارانشیم گیاهان عالی است.
3. استروما: ساختمان تشک مانند داشته با ساختار پروزئانشیمی که درون یا بر سطح آن ساختمان زایشی تشکیل میگردد.
4. اسکلروتیوم: ساختمان دیگری است با بافت پسودو پارانشیمی که در شرایط نامساعد تشکیل میگردد و پس از مساعد شدن شرایط میتواند جوانه زده و مجددا رشد کند.
5. ریزومورف: ساختمان دیگری است که در شرایط نامساعد تشکیل و در قارچهای بازیدیومیستی دیده میشود. از دستجات بلند و موازی هیف تشکیل میگردد. بخش انتهایی ریزومورف حالت مریستمی دارد. هیفهای لایه بیرونی از نظر دیواره سلولی و محتوای درون سلولی تغییراتی پیدا کرده و کدرتر میشوند. ریزومورف نیز با مساعد شدن شرایط میتواند مجددا رشد نماید.
وشهای اخذ غذا در قارچها
* قارچهای پروتوتروف: قارچهای پروتروف قارچهایی هستند که با استفاده از ترکیبات آلی موجود در ویتامینهای مورد نیاز خویش را سنتز میکنند.
* قارچهای اگزوتروف: قارچهای اگزوتروف نیازمند ویتامینهای از قبل سنتز شده میباشند که باید در اختیار آنها قرار گیرد.
* قارچهای ساپروفیت: این قارچها روی مواد در حال پوسیدن زندگی میکنند. هیف مستقیما با مواد غذایی تماس حاصل میکند و پس از تجزیه مواد غذایی از راه انتشار این مواد را جذب مینماید. میسیلیوم قارچهای انگل برای تامین مواد غذایی مورد نیاز یا بر روی موجود میزبان میروید یا آنکه وارد نسج میگردد. قارچهای انگلی درون سلولی مستقیما مواد غذایی داخل سلول را از طریق دیفوزیون جذب میکند. قارچهایی که زندگی بین سلولی دارند، تشکیل اندامهای مکنده میدهند.
عوامل جذب غذا در قارچها
* تشکیل مستوریوم.
* تشکیل آپرسوریوم.
* تشکیل ریزوئیدها.
* تشکیل اندامهای شکارگر
* تشکیل هیفوپودیوم.
میکوریـــــــــــزا
ميكوريزا نتيجه برقراري همزيستي بين قارچ و گياه است. اين واژه مركب از دوواژه يوناني (mykes=mushroom + rhiza=root ) مي باشد. ميكوريزا نوعي همزيستي متقابل مفيد است كه بين اندامهاي جذب كننده گياهان (معمولا ريشه) و ريسه هاي قارچهاي خاصي ايجاد مي گردد. در حالت كلي هر دو جزء همزيست شونده از اين همزيستي سود مي برند. با اينحال همزيستي مي تواند از حالت متقابل مفيد به اشكال ديگر از جمله شكل انگلي تبديل شود كه وقوع چنين وضعيتي به گونه گياه و قارچ درگير، سن ميكوريزا ونوع ميكوريزا بستگي دارد. به عنوان مثال در ميكوريزاي اركيد، قارچ ميكوريزايي، اركيد را به يك گياه دهنده donor متصل مي كند كه منبع كربن را براي قارچ و گياه تامين مي نمايد. كاركرد همزيستي اين است كه منبع كافي كربوهيدرات براي قارچ همزيست فراهم شود. در مقابل ايجاد همزيستي فوايد متعددي را براي گياه در گير در پي دارد كه شامل بهبود تغذيه و جذب آب، جذب كربن اضافي، افزايش ظرفيت انتقال فر آورده هاي فتوسنتزي، افزايش توليد فيتوهورمونها، بهبود مقاومت در مقابل عوامل بيماريزا و تحمل در برابر فلزات سنگين است. در غياب ميكوريزا بسياري از گياهان خشكي از محدوديت منابع رنج مي برند و با كاهش رشد مواجه مي گردند. از طرف ديگر مجموعه هاي ميكوريزايي از اجزاء بسيار مهم تاثير گذار بر روي ساختار و عملكرد اكوسيستمها مي باشند.
بيش از 2500 گونه مختلف گياهي با قارچها همزيست مي شوند كه مجموعه وسيعي از گياهان از گياهان ابتدايي غير آوندي فاقد دانه تا گياهان بسيار پيشرفته را شامل مي شود. تنها تعداد كمي از خانواده هاي گياهي فاقد همزيستي ميكوريزايي اند كه به عنوان نمونه مي توان از خانواده هاي Brassicaceae,Cyperaceae,Proteaceae نام برد. علاوه بر ريشه كه اندام اصلي گياهان در همزيستي ميكوريزايي است ساختارهاي زير زميني در گياهاني كه ريشه تشكيل نمي دهند نظير گامتوفيت هاي بريوفيتها و پتريدوفيتها و همينطور اسپوروفيت پتريدوفيتها نيز درگير همزيستي ميكوريزايي مي شود.
قارچهاي همزيست شونده شامل اعضاي سه شاخه مهم در سلسله قارچها هستند كه عبارتند از:Zygomycota,Ascomycota,Basidiomycota . همزيستي هاي ميكوريزايي در دامنه وسيعي از اكوسيستمها و اجتماعات گياهي نظير wetlands ، بيابانها، جنگلهاي خزان كننده، جنگلهاي باراني حاره اي پست، اجتماعات گياهي عرضهاي جغرافيايي بالا و ارتفاعات بالا، سيستمهاي آبي، اجتماعات اپي فيتي و... موجود مي باشند و تنها قطب است كه فاقد گياهان ميكوريزايي است. ميكوريزا از قدمتي ديرين برخوردار است و برخي از گياهان قديمي فسيل شواهدي از ميكوريزا را ارائه مي دهند. قدمت ميكوريزا ي نخستين به حدود 400 ميليون سال پيش مربوط مي شود. اين زمان، زمان گذار از آب به خشكي است و تصور مي شود كه شريك قارچي نقشي كليدي در كمك رساني به گياهان در كلون كردن اكوسيستم خشكي ايفاء نموده است.
طبقه بندي ميكوريزا (1)
1. Vesicular – Arbuscular Mycorrhiza :
هفتادوپنج درصد خانواده هاي گياهي نوعي از ميكوريزا به نام اندو ميكوريزا تشكيل مي دهند كه به ميكوريزاي وزيكولارـ آرباسكولار ويا به اختصار به VAM معروف است. اين نوع همزيستي احتمالا از قدمتي ديرين برخوردار است زيرا قارچهايي مشابه قارچهاي پيشرفته دخيل در اين نوع ميكوريزا نخستين گياهان خشكي را تحت كلون خويش درآورده بودند. قارچهاي اين گروه در شاخه Zygomycota و راسته Glomales طبقه بندي مي شوند و از قارچهاي بسيار رايج در خاك مي باشند.
شش جنس و دويست گونه قارچ در اين گروه قرار مي گيرند. هيفهاي قارچها مي توانند به طرق بين سلولي و درون سلولي در درون كورتكس ريشه رشد كنند اما هيچگاه وارد استوانه آوندي نمي شوند. پس از جوانه زني اسپور از يك سو هيفهاي قارچ به ريشه نفوذ مي كنند واز سوي ديگر در درون خاك گسترش مي يابند و عمل جذب و انتقال منابع را انجام مي دهند. آرباسكولها، ساختارهاي دو شاخه مشابه هوستوريوم هستند كه در درون سلول كورتكس نفوذ ميكنند و تصور مي شود كه جايگاه انتقال منابع بين دو جزء همزيست باشند. غشاء پلاسمايي سلول گياهي در اطراف آرباسكول غني از كمپلكسهاي پروتون ـ اي تي پي آز است كه بيانگر جايگاهي فعال براي جذب مواد توسط گياه است.
انتقال كربوهيدرات به قارچ احتمالا بيشتر با وساطت هيفهاي درون سلولي غير آرباسكولي و peloton صورت مي پذيرد كه مشابه آرباسكولها هستند و سطح تماس بين قارچ و غشاء پلاسمايي سلول گياهي را افزايش مي دهند. غشاء پلاسمايي اين هيفهاي درون سلولي غني از جايگاههاي پروتون ـ آتي پي آز هستند كه نشانگر مطالبه فعال منابع به وسيله قارچ مي باشد. شايان ذكر است كه هيفهاي درون سلولي و آرباسكولها ساختار هايي موقت و زودگذر هستند. هيفهاي قارچهاي اندوميكوريزايي به طريق كموتروپيك به سوي ريشه هاي گياه جذب مي شوندكه احتمالا در پاسخ به ترشحات ريشه است.
اين ترشحات قادر به القاء جوانه زني در اسپور قارچهاي اندوميكوريزايي بوده، بر روي رشد لوله تندش و هيفها تاثير گذاشته و هيفهاي قارچي را به سوي جايگاههاي مورد پذيرش بر روي سطح ريشه جهت كلونيزاسيون جذب مي نمايد.
نفوذ هيفها به درون ريشه در نزديكي راس ريشه صورت مي پذيرد، جايي كه ميزان چوب پنبه اي شدن كم است. نفوذ هيفها به درون سلولهاي كورتكس به صورت درون سلولي از طريق توليد آنزيمهاي سلولوليتيك صورت مي پذيرد. حمله سلولي تحت تنظيم هر دو جزء همزيت شونده است كه شامل تنظيم بالاي (upregulation) ژنهاي ويژه قارچ و تنظيم پايين (downregulation) ژنهاي ويژه گياه است. وزيكولها بخشهاي متورم انتهايي هيفها مي باشند كه در بين سلولها يا درون سلولها توسط قارچهاي اندوميكوريزايي تشكيل مي شوند و احتمالا به عنوان جايگاههاي ذخيره كربن براي تركيباتي نظير ليپيد ها عمل مي كنند.
CASSIATORA
Jul-14-2008, 21:31
طبقه بندي ميكوريزا (2)
2. Ectomycorrhiza
اين نوع ميكوريزا در ده درصد از فلور دنيا ايجاد مي گردد و منحصر به گياهان دانه دار است. تخمين زده شده كه پنج هزار گونه قارچ وجود دارند كه اكتوميكوريزا تشكيل مي دهند كه از اين تعداد دوهزار گونه در آمريكاي شمالي وجود دارند. گروههاي گياهي محدودتري درايجاد اين نوع ميكوريزا مشاركت دارند اما برخي گروهها به ميزان زيادي دچار اين نوع همزيستي مي شوند كه از آن جمله مي توان به مخروطيان جنگلهاي شمالگان اشاره نمود. بر خلاف ميكوريزاي وزيكولار ـ آرباسكولار، اكتوميكوريزا ظاهر بيروني ريشه را تغيير مي دهد و نوعي فنوتيپ يكسان ريشه اي به نام مورفوتيپ ايجاد مي كند كه بعضا جهت شناسايي قارچ همزيست مورد استفاده قرار مي گيرد. در اكتوميكوريزا نفوذ هيف به درون سلول ريشه صورت نمي گيرد بجز در نواحي مسن ريشه. هيفها به طور فعال مناطق رشد ريشه هاي ثانويه را به طريق بين سلولي كلون مي كنند. شبكه هارتيگ Hartig net نوعي شبكه هيفي است كه از مانتل به طرف داخل منشا مي گيرد و در اپيدرم وچند لايه سلولي نخست كورتكس نفوذ مي كند. آنزيمهاي سلولوليتيك در نفوذ بين سلولي در اپيدرم دخيل هستند. همچنين رشته هاي هيف از مانتل به درون خاك توسعه مي يابند و در نتيجه قادر به جذب و انتقال منابع از خاك به كورتكس ريشه مي باشند. جوانه زني اسپور قارچهاي اكتوميكوريزايي توسط ترشحات ريشه كه حاوي قند، ويتامين، آمينواسيد و فيتوهورمونهايي از قبيل IAA و سيتوكينين ها است تحريك مي شود. علاوه بر اين، ترشحات ريشه مي تواند تشكيل ديگر اجتماعات ميكروبي خاك را كه قادر به آزادسازي تركيبات محرك تشكيل اكتو ميكوريزاست تحريك نمايد. پاسخهاي كموتروپيك هيفهاي قارچ، رشد آنها را به سمت ريشه ها نظم مي دهد ومنجر به اتصال به سطح ريشه مي شود.
3. Ectendomycorrhiza
از نظر ساختار و عملكرد، اين نوع ميكوريزا مشابه اكتوميكوريزاست اما درجاتي از نفوذ درون سلولي نيز در آن ديده مي شود.
4. Arbutoid and Monotropoid Mycorrhiza
قارچهاي Basidiomyceteو گياهان Arbutoideae نوع خاصي از ميكوريزا را تشكيل مي دهند كه به ميكوريزاي آربوتوئيد معروف است و مشخصه آن وجود مانتل، شبكه هارتيگ و نفوذ به درون سلولهاي اپيدرمي توسط هيفهاي قارچي است. قارچهاي اكتوميكوريزايي در همزيستي با گياهان فاقد كلروفيل Monotropaceae نوعي ميكوريزا به نام ميكوريزاي منوتروپوئيد ايجاد مي كنند. مشخصه اين نوع ميكوريزا شبكه هارتيگي است كه سلولهاي اپيدرمي و ساختارهاي شبه هوستوريومي به نام ميخهاي هيفي را در درون سلولهاي اپيدرم در بر مي گيرد. دو نوع ميكوريزاي ذكر شده با عنوان mycoheterotrophic طبقه بندي مي شوند.
5 . Ericoid Mycorrhiza
اين نوع ميكوريزا بين قارچهاي گروه Ascomycete و تعدادي از خانواده هاي راسته Ericalesايجاد مي شود. ريشه در اين نوع ميكوريزا به ميزان زيادي (تاهشتاددرصد) توسط آسكوميستهاي با رنگيزه هاي سياه Hymeoscyphus ericea يا Oidiodendron sp. كلون مي شود. سلولهاي اپيدرمي به طريق درون سلولي توسط همزيست قارچي كه كمپلكسهاي سياه پيچ خورده را تشكيل مي دهد كلون مي شوند.
6 - Orchid Mycorrhiza
اين نوع ميكوريزا ميكوريزاي mycoheterotrophic است كه بين گياهان خانواده اركيداسه و گونه هاي قارچهاي ناقص Rhizoctonia تشكيل مي شود. بسياري از اركيد هاي همزيست ساپروفيت هاي سريع الرشدي هستند كه مي تواننداز قندهاي پيچيده استفاده كنند. جهت جوانه زني، دانه هاي اركيد بايد با يك شريك همزيست مناسب كلون شوند. نفوذ درون سلولي و توسعه كمپلكسهاي هيفي پيچ خورده كه پلوتون ناميده مي شود و تصور مي شود جايگاه تبادل منابع باشد از ويژگيهاي اين نوع ميكوريزاست. ميكوريزاي اركيد يك ميكوريزاي غير عادي است زيرا به كرات به حالتهاي اپي پارازيتيك يا mycoheterotrophic بر روي گياهان اكتوميكوريزايي ديده مي شود. ميكوريزاي اركيد از پايداري كمتري نسبت به ديگر انواع ميكوريزا برخوردار است، زيرا همزيستي مي تواند به وضعيتهاي انگلي يا حتي بيماريزايي براي اركيد تبديل شود
منیره جهانی
بیماری گال طوق دار
Agrobacterium tumefaciens یک آلفا پروتوباکتر از خانواده Rhizobiaceae ، گرم منفی ، فاقد اسپور ، متحرک ، میله ای شکل و هوازی است که زندگی آزادی در خاک دارد . این باکتری عامل بیماری Crown Gall (گال طوق دار ) در طیف وسیعی از گیاهان دو لپه بخصوص خانواده rose مانند سیب ، گلابی ، هلو ، گیلاس ، بادام و تمشک می باشد .
باکتری بخشی از DNA خود را به درون گیاه انتقال می دهد ، این DNA وارد ژنوم گیاه شده و سبب ایجاد تومور و تغییراتی در متابولیسم گیاه می گردد .
بیشتر ژنهایی که در بیماری Crown Gall دخالت دارند بر روی پلازمید بزرگی به نام پلازمید Ti (Tumour inducing القا کننده تومور ) قرار دارد . خصوصیت ویژه این باکتری مربوط به عملکرد پلازمید Ti است و نه کروموزوم باکتریایی .
پلازمید Ti شامل دو دسته ژن مهم است :
· ژن های vir
· ژن های T-DNA
T-DNA بخشی است که به سلول گیاه انتقال می یابد و ژن های vir ژن هایی اند که برای ایجاد عفونت مورد نیاز است .
عملکرد ژن های vir :
· تولید پروتئین ها ( پرمئاز ها ) به منظور جذب ترکیباتی به نام opine که توسط تومور ها ساخته می شوند . این پروتئین ها وارد غشای باکتریایی می شوند .
· تولید اندونوکلئاز که باعث برش (T-DNA (transferred - DNA می شود .
ژن های vir شامل اپران های virA ، virB ، virC ، virD ، virE و virH است .
virA پروتئین هایی را تولید می کند که در کموتاکسیک شرکت کرده و ترکیبات فنلی را حس می کند .
VirB شامل 11 غالب خواندنی باز است . این ژن ها مسئول تشکیل T-pilus می باشد . در ابتدا pro-pilin شکل می گیرد که یک پلی پپتید 121 اسیدآمینه ای است و نیاز به پردازش دارد . این فرایند با حذف 47 ریشه اسیدآمینه انجام می گیرد تا زیرواحد T-pilus شکل گیرد . محصولات دیگر virB در انتقال زیرواحدها از میان غشای پلاسمایی دخالت دارند .
پمپ ATPase نیز برای انتقال فعال زیرواحدها مورد نیاز است .
virD2 تولید پروتئینی می کند که به انتهای 5 پرایم T- DNA متصل می شود .
پروتئین های virE2 ، T- DNA را پوشانده و از آن در برابر تجزیه حفاظت می کند .
VirH احتمالا سبب سم زدایی در برابر ترکیبات ضد باکتریایی گیاهان می شود که از محل زخم تولید می شوند .
عملکرد T- DNA :
· تولید cytokinin
· تولید indole acetic acid
· سنتز و آزادسازی متابولیت های گیاهی جدید (opines ، agrocinopines)
T- DNA دارای ژن هایی برای بیوسنتز آنزیم هایی برای تولید آمینواسیدهای غیراستاندارد است . همچنین حاوی ژن هایی برای بیوسنتز هورمون های گیاهی (auxin ، cytokinin ) می باشد . با تغییر هورمونی در سلول های گیاهی ، کنترل تقسیم سلولی از بین رفته و تومور شکل می گیرد . نسبت auxinبه cytokinin تولید شده ، مورفولوژی تومور را تعیین می کند . opines ، agrocinopinesبه عنوان منبع کربن و انرژی توسط باکتری مورد استفاده قرار می گیرد در حالیکه گیاه قادر به استفاده از این متابولیت ها نیست . سوش های متفاوتی از A.tumefaciens انواع مختلفی از پلازمید Ti دارند که محصولات متنوعی از اوپین ها را کد می کنند . مانند nopaline ، agrocinopine A ، octopine ، agropine .
مکانیزم عفونت :
· کموتاکسی و آغاز اتصال به محل زخم
· اتصال پایدار
· برش T- DNA
· ساخت کانال های انتقال
· انتقال T- DNA به سلول گیاهی
· انتقال T- DNA به هسته و الحاق آن و رونویسی از آن
Agrobacterium tumefaciens معمولا در منطقه ریزوسفر وجود دارد . در شرایط طبیعی این باکتری از طریق کموتاکسیس به محل زخم در گیاه کشیده می شود . این امر در پاسخ به آزادسازی ترکیبات فنلی صورت می پذیرد . باکتری ترکیبات فنلی مانند acetosyringone را حتی در غلظت های پایین (M 7- 10 ) شناسایی می کند که سبب جذب آن می شود . یکی از عملکردهای پلازمید Ti کد کردن گیرنده های کموتاکسیک است که وارد غشای باکتریایی شده و باکتری را برای شناسایی محل زخم توانا می سازد . Acetosyringone علاوه بر اینکه در کموتاکتیک نقش دارد در غلظتهای بالاتر (M 4- 10 _ 5- 10 ) سبب فعال سازی ژن های vir می شود .
اتصال باکتری به گیاه در دو مرحله انجام می شود :به منظور ایجاد یک اتصال ضعیف اولیه و برگشت پذیر ، باکتری فیبریل های سلولزی سنتز می کند که سبب اتصال آنها به سلول گیاهی در محل زخم می شود . 4 ژن اصلی در این فرایند دخالت دارند : Chv A ، Chv B ، Psc A ، att . این فیبریل ها باعث اتصال باکتری ها به یکدیگر و تشکیل یک میکروکلنی می شوند . پس از ساخت فیبریل های سلولزی ، یک پروتئین غشای خارجی وابسته به +2 Ca به نام rhicadhesin ساخته می شود که در اتصال باکتری به دیواره سلولی نیز نقش دارد .
ترکیبات گیاهی که سبب تحریکAgrobacterium برای آلوده سازی سلول گیاهی می شود :
· Acetosyringone· hydroxyacetosyringone – Alpha· catechol· ferulic acid· gallic acid· hydroxybenzoic acid – p· protocatechuic acid· pyrogallic acid· resorcylic acid· sinapinic acid· syringic acid· vanillin
برای انتقال T- DNA ابتدا می بایست این ناحیه از پلازمید حلقوی برش داده شود . کمپلکس virD1/D2 ، DNA را در توالی مشخص برش می دهد . پروتئین virD2 به انتهای 5 پرایم متصل می شود . این پروتئین شامل یک موتیف است که سبب ایجاد یک کمپلکس نوکلئوپروتئین می گردد . در مرحله بعدی انتقال به سلول گیاهی ، باکتری از سیستم ترشحی تیپ 4 استفاده می کند که همراه با تشکیل T-pilus است .
VirG/VirA سیستم تنظیمی دو جزئی است که قادر به شناسایی سیگنال های فنلی ساخته شده توسط سلول های بافت زخمی گیاه اند . این امر منجر به فعال سازی ژن های vir B می شود که مسئول تشکیل T-pilus است .
در سیتوپلاسم سلول گیرنده،کمپلکس T- DNA توسط پروتئین های virE2 پوشانده می شوند. این پروتئین ها بطور مستقل از کمپلکس T- DNA از طریق سیستم ترشحی تیپ 4 وارد می شوند .
بر روی پروتئین های virE2 و virD2 توالی NLS (توالی استقرار هسته ای ) وجود دارند که توسط پروتئین های a-importin شناسایی می شوند . بدنبال آن به B-importin متصل شده و از طریق کمپلکس منفذ هسته ای به درون هسته میزبان انتقال می یابد . T- DNA در دو سر خود توالی هایی دارد که بواسطه آنها می تواند وارد ژنوم سلول گیاهی شود .
توانایی Agrobacterium در انتقال ژن ها به گیاهان و قارچ ها در بیوتکنولوژی و بخصوص در زمینه مهندسی ژنتیک برای بهینه سازی گیاهان مورد استفاده قرار می گیرد . دستکاری بر روی ژنوم باکتریایی (T- DNA ) انجام می شود
آگروباکتریوم
آگروباکتریوم
آگروباکتریوم یک باکتری گرم منفی است. جنس آگروباکتریوم به تعدادی گونه تقسیم میشود. این تقسیمبندی عمدتاً بر اساس علائم حاصل از بیماری و طیف میزبان می باشد. بنابراین، A. radiobacter یک گونه غیر بیماریزا است، A. tumefaciens عامل بیماری گال تاجی، A. rhizogenes عامل بیماری ریشه مویی و A. rubi عامل بیماری گال نیشکر میباشد. به تازگی یک گونه جدید به نام A. vitis که عامل ایجاد گال در انگور و تعداد دیگری گیاه است، نیز شناسایی شدهاست.
گالهایی که توسط آگروباکتریوم ایجاد شدهاند
در اکثر موارد، علائم بیماری یاد شده حاصل از نوع پلاسمید مولد تومور است که در درون سویه خاصی وجود دارد. از دست دادن پلاسمید مولد تومور یا جایگزینی آن با پلاسمید دیگر، میتواند باعث تغییر علائم بیماری شود.
آگروباکتریوم میتواند DNA را به تعداد قابل ملاحظه ای از موجودات زنده شامل بسیاری از دولپهایها و تکلپهایها در گونههای نهاندانه و بازدانگان منتقل نماید. به علاوه، آگروباکتریوم توانایی انتقال ژن به قارچهایی مثل مخمر، آسکومیستها و بازیدومیستها را دارد. در سال ۲۰۰۱ انتقال DNA به سلول انسانی توسط آگروباکتریوم گزارش شدهاست. اساس مولکولی و ژنتیکی طیف میزبان یک سویه آگروباکتریوم هنوز روشن نشدهاست. مطالعات اولیه حاکی از این است که پلاسمید Ti در مقایسه با ژن های کرورموزومی، تعیین کننده ژنتیکی اصلی طیف میزبانی میباشد. نشان داده شدهاست که چندین مکان ژنی بیماریزایی (vir) بر روی پلاسمید Ti ازجمله virC و virF، در تعیین گونههای گیاهی که انتقال ژن به آنها میتواند صورت گیرد تا تومورهای گال تاجی ایجاد شود، نقش دارند. مشخص شده که مکان ژنی virH که قبلاً pinF نامیده میشد، در توانایی آگروباکتریوم در انتقال ژن به ذرت موثر میباشند. سایر ژنهای vir مثل virG نیز در بیماریزایی بیش از حد برخی سویههای خاص مشارکت دارند.
_تورم نوک ریشه،زرد شدن قسمتهای مختلف ریشه واثار شته زرد در ریشه مسن شته گال زا
بـــــــــــــــــــــرگها
3_تارهای سفید تا قرمزرنگ و غیر قابل شستشو فقط در سطح زیرین کنه گال زا
3-برامدگی زگیل مانند بر روی سطح بالایی برگ کنه گال زا و یا کنه نمدی
4-گال هایی به اندازه عدس در سطح زیرین برگ شته گال زا
5-پیچیدگی برگ به سمت پایین و تغییر رنگ پاییزه زودتر از موعد بیماری ویروسی پیچیدگی برگ
6-برامدگی زگیل مانند کنه گال زا به رنگ زرد لیمویی بیماری پانشور
7-پیچیده شدن شدید سطح برگ و تغییر شکل کامل انها کنه،تریپس،زنجیره مو
» نماتد گال دانه
گال دانه » يکي از قديمي ترين بيماري هاي شناخته شده گندم است و در اصطلاح انگليسي « Seed gall nematode » ناميده مي شود. نماتود گال دانه، Anguina tritici ، نخستين نماتودي است که به عنوان پاتوژن گياهي شناخته شده است. گال دانه را به نام هاي کاکلز، پرپلز، پپر کورن و بيماري کرمي نيز ناميده اند و در سال 1328 دواچي در کتاب « آفات مهم گياهان زراعي و طرز مبارزه با آنها» اين بيماري را به فارسي سياه دانه ناميده و اسم علمي آن را Anguillulina tritici ذکر کرده است. اين بيماري نخستين بار در انگلستان در سال 1743 توسط نيدهام (Needham) گزارش گرديد. A.tritici از طريق همراهي با بذر گندم يک بار انتشار جهاني يافت و باعث خسارت شديد به محصول گندم شد. اين بيماري امروزه در تمام قاره هاي جهان وجود دارد. در ايران نيز از مناطق اصفهان، کرمان، خوزستان، سيستان و بلوچستان، کرمانشاه، فارس، بندر عباس، لرستان، تهران، گرگان و آذربايجان گزارش شده که خسارت آن در بعضي موارد زياد بوده است. همچنين اين بيماري توسط الهي نيا از آستارا، مازندران، گرگان و گنبد جمع آوري گرديده است. ميزبان اصلي اين نماتود گندم بوده ولي به چاودار، جو و يولاف نيز مي تواند حمله کند اما فقط روي گندم اهميت زيادي دارد. با استفاده از تکنيک هاي نوين تميز کردن بذر اين بيماري تا حد زيادي کم شده است.
ارگانيسم عامل بيماري
عامل بيماري گال دانه گندم نماتود Anguina tritici است که يک پارازيت اجباري مي باشد. اين نماتود از خانواده Tylenchidae بوده، طول نماتود ماده بين 4 - 3 ميليمتر و طول نماتود نر بين ?.? تا ?.? تاميليمتر است. نماتود هاي ماده مارپيچي بوده و عملاً تحرک کمي دارند ولي نماتود هاي نر به صورت مستقيم بوده و فعال تر به نظر مي رسند. پرحجم و متورم بودن قسمت وسط بدن نماتود ماده به علت رشد زياد تخمدان مي باشد. دو انتهاي بدن نماتود ماده باريک هستند که ظاهراً دوکي شکل به نظر مي رسند. به علت داشتن پوست شفاف و بي رنگ؛ کليه دستگاه هاي دروني بدن نماتود به خوبي در زير ميکروسکوپ مشاهده مي شود. حباب تحتاني مري اين نماتود چند قسمتي و منفذ تناسلي ماده در بخش عقبي بدن قرار دارد. تخمدان در ماده يک عدد، اما داراي رشد زيادي است به طوري که تا ناحيه سر نماتود امتداد داشته، در آنجا تا شده و به سمت عقب بر مي گردد و غالباً بار ديگر تا خورده و به طرف جلو امتداد پيدا مي کند.
علائم بيماري
بر اثر حمله اين نماتود به گندم، فاصله بين گره هاي ساقه گندم کوتاه مانده و پيچيدگي هايي در طول ساقه به وجود آمده و معمولاً ساقه هاي آلوده کوتاهتر مي شوند. سطح برگ ها نيز حالت موجدار و پيچيدگي پيدا مي کند. برگ هاي مسن غالباً علائم آشکاري نشان نمي دهند. خوشه هاي بيمار کوتاه تر از خوشه هاي سالم شده، طول ريشک هاي آنها کم مي شود و تقارن طبيعي خوشه هاي بيمار از بين مي رود. بذور آلوده، ديگر بذر گندم نبوده و به صورت گال هاي خيلي کوچکتر از گندم به رنگ خاکستري متمايل به سياه در آمده و در داخل هر گال هزاران لارو سن دوم نماتود ديده مي شود که به حالت خواب به سر برده و چنانچه بذر آلوده در آب خيسانده و کمي له شود تعداد بيشماري لارو نماتود از گالها خارج شده و شروع به حرکت مي نمايند.
به طور کلي اين بيماري در مراحل مختلف رشدي علائم و خسارتهاي متفاوتي دارد که به شرح زير است:
1) مرحله کاشت: در اين مرحله گال هاي قهوه اي رنگ نماتود در ميان بذور قابل مشاهده مي باشند که بايد قبل از کاشت؛ بذور را بوجاري و گالها را کاملاً جدا نمود.
2) مرحله پنجه زني: در اين مرحله هنگام بازديد مزرعه مشاهده مي شود بعضي بوته ها کوتوله مانده و برگ ها حالت پيچيدگي و بد شکلي دارند.
3) مرحله خوشه دهي: در اين مرحله و هنگام شروع خوشه دهي با مراجعه به مزرعه مشاهده مي شود که:
الف) از بعضي خوشه ها شيره يا صمغ زرد رنگي ترشح مي شود که اين صمغ علامت بيماري باکتريايي خوشه صمغي گندم است که عامل بيماري معمولاً فقط به وسيله لارو نماتد گال دانه گندم منتقل مي شود و منجر به تشکيل خوشه اي مي شود که کاملاً زرد رنگ و پوشيده از صمغ است. در اين خوشه ها دانه تشکيل نشده و پس از بارندگي و شستشوي صمغ زرد رنگ؛ فقط محور خوشه باقي مي ماند.
ب) تعدادي از خوشه ها بر اثر بيماري در غلاف برگ پرچم گير کرده، باز نشده و تلقيح نمي شوند.
ج) در مرحله خوشه دهي در بعضي خوشه ها گال هاي نماتود تشکيل مي شود. اين گال ها ابتدا سبز رنگ و نرم هستند و سپس در مراحل بعدي به رنگ قهوه اي روشن تا تيره در آمده و پوسته آن کاملاً سخت مي شود به طوري که با فشار دست اصلاً قابل شکستن نيست.
4) مرحله برداشت: در اين مرحله گال هاي سخت شده به رنگ قهوه اي روشن تا قهوه اي تيره همراه با بذور گندم برداشت شده و در توده بذر مشاهده مي شود.
چرخه بيماري
A.tritici به صورت لارو سن دوم به حالت غير فعال در داخل بذور آلوده گندم که کوچک و سياه رنگ هستند به سر مي برد. هر گال محتوي صدها و گاهي هزاران لارو سن دوم مي باشد. تعداد لارو هاي موجود در هر دانه آلوده متفاوت بوده و به بزرگي و وزن آن بستگي دارد. مثلاً در بذور آلوده که از چين گزارش شده در هر بذر 2600-800 و در هند 32400-3600 لارو گزارش شده است. لارو هاي سن دوم در گال به صورت غير فعال ( Quiescent ) مي باشند که در شرايط خشک ممکن است سالها را به همين نحو بگذرانند. پس از اينکه رطوبت از طريق باران يا آب آبياري براي جوانه زدن بذر گندم فراهم گردد و حرارت کافي وجود داشته باشد، نماتود هاي سن دوم در اثر وجود رطوبت، فعاليت خود را از سر مي گيرند و از دانه خارج و در جستجوي ميزبان در خاک شروع به حرکت مي کنند. بنابراين وجود رطوبت براي آغاز فعاليت لاروها و حرکت آنها در خاک ضروري است. حرکت اين لارو در آب بسيار محدود مي باشد. چنانچه اين لارو به ميزبان دسترسي پيدا نکند پس از 6 تا 7 ماه استفاده از ذخيره ي بدن خود مي ميرد. بر خلاف بسياري از نماتودهاي بيماريزاي گياهي، A.tritici روي ريشه ها تغذيه نميکند، بلکه وقتي به دانه سالم گندمي که در حال جوانهزدن است ميرسد به آن چسبيده و با رسيدن به جوانه انتهايي به صورت انگل خارجي آن در ميآيد. هنگامي که خوشه ها ظاهر مي شوند لارو ها وارد دانه شده و از مواد غذايي تخمدان تغذيه کرده و به صورت انگل داخلي در مي آيند. تعدادي از لارو ها نيز به سمت برگ ها رفته و چين هايي روي برگ ايجاد مي کنند و گاهي چند لارو در همان محل به سن بلوغ رسيده و ايجاد خميدگي و پيچيدگي در برگ ها، ساقه و محور سنبل مي کنند. معمولاً در داخل هر تخمدان بذر 6-1 نماتود ماده و 7-2 نماتود نر وارد مي گردند و جفت گيري مي نمايند که پس از جفت گيري هر ماده تا 2500 تخم مي گذارد. تعداد تخم ها در هر دانه حدود 15000 عدد است. لارو سن اول در داخل تخم پوست اندازي کرده و به لارو سن دوم تبديل مي گردد. دوره تخم ريزي بين 7-6 هفته طول مي کشد و نماتود ها در اين مرحله به حالت غير فعال در آمده و مي توانند در صورت نا مساعد بودن محيط حتي تا 28 سال به همين حالت در بذور آلوده باقي بمانند و بعد از حصول شرايط مناسب دوباره به رشد خود ادامه دهند. موقع برداشت گندم، گالهاي بذر با دانههاي سالم مخلوط شده يا روي زمين ميريزند.
A.tritici علاوه بر بيماري گال بذر که در گندم بوجود ميآورد، موجب انتقال بيماري باکتريايي خوشه صمغي يا زردي خوشه گندم که عامل آن باکتري Rathayibacter tritici يا Corynebacterium tritici است مي شود و نيز در انتقال بيماري پيچيدگي و سياه شدن خوشه و برگ گندم که عامل آن قارچ Dilophospora alopecuri است سهيم مي باشد. بنابراين مبارزه با نماتود گال دانه گندم به کنترل اين بيماري ها نيز کمک مي کند.
مبارزه و کنترل
بهترين و عمليترين روشهاي مبازه با اين بيماري، بوجاري صحيح و اصولي بذرهاي گندم قبل از کاشت و اجراي تناوب با گياهان غيرميزبان حداقل به مدت 2 سال ميباشد. گال ها را مي توان با بذر پاک کن هاي مکانيکي و شناوري در آب شور ( آب نمک 20 % ) جدا کرد. گال ها معمولاً در سطح آب نمک 20% شناور مي شوند. با اين روش مي توان آنها را جمع آوري و معدوم کرد. خيساندن بذر در آب گرم 54 به مدت ده دقيقه، اکثر لارو هاي باقيمانده را بدون آسيب چنداني به بذر عادي از بين مي برد. تمام بذر هايي که تيمار گرمايي شده اند بايد از لحاظ قدرت جوانه زني کنترل شوند.
معمولاً دو سال کاشت گياهان ميزبان براي حذف لارو هاي خاکزاد کافي است زيرا آنها به طور غير اختصاصي در واکنش به رطوبت رها مي شوند. در صورت امکان از ايجاد شرايط مرطوب در خاک جلوگيري کرد نويسنده:مهندس سعيد خجسته نژاد
گال های درخت Q.infectoria گال واژه ای است که در گیاه شناسی کاربرد دارد و عبارت است رشد غیر عادی بافت ها در اثر عملکرد برخی انگل از قبیل حشرات،قارچ ها وکنه ها .گال های درخت بلوط در نیش زنبور های مختلف واز جمله زنبور هایی از جنس synips بر روی اندام های مختلف بلوط (برگ ،جوانه ،میوه و...)از همه ی گونه های جنس Quercus ایجاد می شود.1.Aderia caput –medusae :این گال در اثر حمله ی آفت به جوانه ها و میوه های درختان دارمازو(Q.infectoria )به وجود میاید . گال از کناره ی پیاله ی میوه با رشد غیر عا دی سلول آغاز میشود که بعدا به سه حالت ادامه میابد وهر کدام به نام خاص :قشکای علفی ،قشکای علفی منشعب وقشکای چوی منشعب نامیده میشود که فرق انها از زوایدی است که از گال منشعب میشود .2.Cynips lignicola :این زنبور عمده روی درخت دارمازو گال هایی بصورت کروی به قطر 10-5 میلی متر که نتیجه ی تکثیر سلولی جوانهی جانبی وگاهی هم جوانه ی انتهایی است به رنگ قهوه ای روشن وشفاف ایجاد می نماید واین گال را به دلیل پوست پاره پاره که شبیه پوست توپ است گال توپی مینامند .
منابع
1) بيماريهاي گياهان زراعي و روشهاي مبارزه با آنها- دکتر سيد علي الهي نيا- دانشگاه گيلان-1384
2) فيتو پاتولوژي و بيماريهاي مهم گياهي ايران-دکتر ابراهيم بهداد-1385
3) بيماري هاي گندم- دکتر م.مويز-ترجمه ي محبوبه شاهچراغي
4) http://agriland.blogspot.com/
7) http://www.forestryimages.org
8) http://keshvarsanpishro.blogfa.com/
Stanton B. Gelvin (2003), Agrobacterium-Mediated Plant Transformation: the Biology behind the "Gene-Jockeying" Tool. Microbiology and Molecular Biology Reviews. 67:16-37.
روشهای انتقال و انتشار ویروسها
تا اواخر قرن 19 اصطلاح ویروسهای پالایهپذیر برای مشخص کردن عوامل عفونی که از صافیهای عبور دهنده باکتریها ، قارچها و پروتوزوئرها میگذرند، اطلاق میشد. چند سال بعد اصطلاح پالایهپذیر حذف شد و کلمه ویروس به معنی سم اختصاصا به عوامل عفونی پالایهپذیر غیر قابل رویت با میکروسکوپ نوری اطلاق گردید. طی دهه اول قرن 20 اغلب دانشمندان عقیده داشتند که ویروسها عوامل عفونی مشخصی هستند که فقط از نظر اندازه با سایر میکروارگانیسمها تفاوت دارند. ولی به زودی کشف گردید که ویروسها روش خاص خود را برای تولید مثل دارند و ترکیب شیمیایی آنها مشخص میباشد. ابداع میکروسکوپ الکترونی و پیشرفت در روشهای تجزیهای موجب پیشرفت در شناسایی ساختمان و اختصاصات فیزیولوژیکی ویروسها شد. ویروسها به چند دلیل مورد توجه خاص میکروبیولوژیستها قرار دارند.
علم ویروس شناسی ، پس از استفاده از واکسن آبله توسط ادوارد بوخنر (1798) ، تهیه واکسن علیه بیماری هاری بوسیله پاستور (1884) و انتقال بیماری موزائیک توتون از گیاه آلوده به گیاه سالم توسط مایر در سال 1886 آغاز شده است. در سال (1892) ایوانوسکی ، ثابت کرد که عامل مولد بیماری موزائیک توتون از صافیهای بسیار ریز نگهدارنده باکتری عبور میکند. ولی نتوانست به اهمیت مساله پی ببرد. تا این که بیچرنیک (1898) دانشمند هلندی که باید او را پدر ویروس شناسی به حساب آورد ادعا کرد که عامل بیماری موزائیک توتون ، باکتری نیست و عامل مسری دیگری است. استنلی در سال 1935 با استفاده از روشهای جدید خالص کردن پروتئینها ، ویروس را خالص کرد و به پاس این خدمت ، موفق به دریافت جایزه نوبل شد.
ویروسها عواملی هستند که واجد یک نوع اسید نوکلئیک هستند. دارای پوشش پروتئینی در اطراف اسید نوکلئیک میباشند. در درون سلولهای زنده با بکار گرفتن ماشین سنتزی سلول میزبان تکثیر پیدا میکنند و اسید نوکلئیک ویروسی را به سایر سلولها منتقل میسازند. چون ویروسها فاقد آنزیمهای لازم برای متابولیسم هستند، لذا برای تکثیر یافتن بایستی از ماشین متابولیکی سلول میزبان استفاده نمایند. این کیفیت از نظر پزشکی جهت پیدا کردن داروهای ضد ویروسی فوقالعاده اهمیت دارد. زیرا اکثر داروهایی که تکثیر ویروسها را متوقف میسازند، برای اعمال سلول میزبان نیز اثر میگذارند. ولی وجود لیپیدها در سطح خارجی برخی از ویروسها آنها را در برابر حلالهای لیپیدها نظیر اتر ، آسیبپذیر میسازد.
میزان اطلاعات قابل دسترس در هر زمینه برای تمامی ویروسها ، یکسان نیست و روشی که براساس آن ویروسها شناسایی میشوند، به سرعت در حال تغییر است. امروزه اکثرا از بررسی توالی ژنی به عنوان یک روش اولیه برای شناسایی ویروس استفاده میشود و بدین ترتیب نیاز به سایر اطلاعات کلاسیک نظیر چگالی شناوری ویروس ، کاهش یافته است. دادههای مربوط به توالی ژنی معیارهای پیشرفته طبقه بندی محسوب شده و گاهی باعث ایجاد خانوادههای جدیدی از ویروسها میشوند. مورفولوژی ویروس ، خصوصیات فیزیکی- شیمیایی ویروس ، خصوصیات ژنومی ویروس ، خصوصیات بیولوژیک و ... در طبقه بندی ویروسها مد نظر قرار میگیرند.
ویروسهای مختلف دارای مکانیزمهایی دقیق و پیچیده برای ادامه حیات و انتقال از یک میزبان به میزبانی دیگر هستند. روش انتقال یک ویروس از یک میزبان به میزبان دیگر به ماهیت واکنش متقابل بین ویروس و میزبان بستگی دارد. ویروسها به روشهایی انتقال مییابند مثلا انتقال از فردی به فرد دیگر در اثر تماس مستقیم. بیشترین راههای انتقال ویروسها توسط قطرات تنفسی ، ذرات عفونی معلق در هوا و تماس جنسی است. ویروسهای گیاهی بیشتر از طریق بند پایان منتقل میشوند.
انواع مختلف ویروسها از نظر منشا تکاملی با یکدیگر تفاوت دارند. دو تئوری مطرح شده در این مورد به شرح زیر است.
منشا ویروسها ممکن است از RNA ، DNA و یا از هر دو نوع اسید نوکلئیک سلولهای میزبان باشد که بطور خودمختار همانند سازی کرده و روند تکاملی خود را طی نمودهاند. و در واقع ویروسها شبیه ژنهایی هستند که توانایی موجودیت مستقل از سلول را کسب کردهاند. توالی ژنی در برخی از ویروسها با ژنهای سلولی رمز کننده پروتئینهای عملکردی قرابت دارند. به نظر میرسد که حداقل برخی از ویروسها بدین روش ، تکامل یافتهاند.
ویروسها ممکن است اشکال انحطاط یافته انگلهای داخل سلولی باشند. هیچ گونه مدرکی در دست نیست که نشان دهد ویروسها از باکتریها تکامل یافته اند. اما ممکن است منشا تکاملی ارگانیسمهای داخل سلولی اجباری نظیر ریکتسیاها و کلامیدیاها ، مربوط به باکتری باشد. به هر حال پولکس ویروسها به قدری بزرگ و پیچیده هستند که احتمالا از تکامل بعضی اجداد سلولی بوجود آمدهاند.
اسید نوکلئیک هر ویروس فقط تعداد معدودی از ژنهای لازم برای سنتز ویروسهای جدید را دارا میباشد. این ژنها شامل ژنهای سازنده اجزای سازنده آنزیمهای لازم در چرخه زندگی ویروس میباشد. برای تکثیر ویروس بایستی ویروس سلول میزبان را مورد حمله قرار داده و اختیار دستگاه متابولیکی آن را به عهده گیرد. در جریان تکثیر ویروسی ، یک ذره ویروسی ، صدها حتی هزاران ویروس تولید میکند. این تغییرات شدید در سلول میزبان ، به مرگ آن منجر میگردد.
ویروس شناسی با رشتههای میکروبیولوژی ، زیست شناسی سلولی ، ژنتیک ، انگل شناسی ، قارچ شناسی پزشکی و بیوشیمی ارتباط نزدیک دارد.
به مطالعه روابط بین موجود زنده و محیط اطراف آن اکولوژی گفته میشود. ویروسهای مختلف دارای مکانیزمهای دقیق و پیچیدهای برای ادامه حیات و انتقال از یک میزبان به میزبان دیگر هستند. روش انتقال یک ویروس از میزبان به میزبان دیگر به ماهیت واکنش متقابل بین ویروس و میزبان بستگی دارد.
ویروسها به روشهای زیر انتقال مییابند:
یکی از مسائل مهم در علم میکروبیولوژی و ویروس شناسی مطالعه در مورد نحوه و راه ورود عوامل بیماریزا به بدن موجود سالم است. ویروسها ممکن است بطور مستقیم از شخص بیمار به انسان سالم سرایت کنند. مثلا ویروس سرماخوردگی مستقیما بوسیله ترشحات حفرههای بینی منتقل میشود. برخی ویروسها از دستگاه گوارش و بوسیله غذای آلوده منتقل میشوند و سپس از طریق دستگاه گردش خون خود را به یاختههای حساس میرسانند. مثلا پولیو ویروس از این طریق وارد میشود و پس از تقسیم در بافتهای لنفاوی و دستگاه گوارشی خود را به دستگاه عصبی میرساند.
انتقال برخی از بیماریهای ویروسی توسط موجود زنده صورت میگیرد. کنترل اینگونه بیماریها از نظر پزشکی فوقالعاده مهم است. مثلا بیماری تب زرد ، توسط حشره و بیماری هاری توسط گوشتخواران آلوده مانند سگ منتقل میشوند. عوامل مولد برخی از این گونه بیماریها دارای دو میزبان هستند و در هر دو میزبان فعالیت میکنند.
ویروسها ، موجوداتی قابل انتقال هستند. ویروسها در گیاه از طریق رابطهای سیتوپلاسمی به نام پلاسمودسماتا از یاختهای به یاخته دیگر راه مییابند. ویروسها حرکت سریعتری نیز دارند که طی آن از یک بخش گیاه به بخش دیگر آن از طریق آوندها انتقال مییابند.
ناقلین در طبیعت ویروس را از گیاه آلوده میگیرند و آن را پس از ایجاد زخم ، به گیاه سالم منتقل میسازند. ناقلین تنها عوامل طبیعی نیستند که در انتشار ویروسها موثر هستند، بلکه دو راه دیگر نیز در طبیعت وجود دارد که ویروسها به کمک آنها انتشار مییابند: یکی انتقال از طریق تماس و دیگری از راه دانه گیاه است.
از مهمترین ناقلین ویروسهای گیاهی ، حشرات هستند. حدود 400 گونه حشره شناخته شده است که قادر به انتقال بیش از 200 نوع ویروس هستند. انتقال ویروسهای گیاهی تنها بوسیله حشرات انجام نمیگیرد، بلکه کنهها ، نماتودها و قارچها نیز در انتقال آنها دخالت دارند. با آنکه تفاوتهای بسیاری بین گروههای مختلف ناقلین وجود دارد، ولی همه آنها در یک صفت مشترک هستند و آن اینکه تماما در یاختههای عاری از زخم گیاهان رخنه میکنند و ویروس را از گیاه آلوده میگیرند و به گیاه سالم انتقال میدهند.
میران اطلاعات قابل دسترسی در هر زمینه برای تمامی ویروسها ، یکسان نیست و روشی که بر اساس آن ویروسها شناسایی میشوند، به سرعت در حال تغییر است. امروزه اکثرا از بررسی توالی ژنی به عنوان یک روشی اولیه برای شناسایی ویروس استفاده میشود و بدین ترتیب نیاز به سایر اطلاعات کلاسیک نظیر چگالی شناوری ویروس، کاهش یافته است. دادههای مربوط به توالی ژنی ، معیارهای پیشرفته طبقه بندی محسوب شده و گاهی باعث ایجاد خانوادههای جدیدی از ویروسها میشوند. اساسهای طبقه بندی به صورت زیر است:
در این سیستم ویروسها را بر اساس مورفولوژی ویریون ، ساختمان ژن و نحوه همانندسازی به گروههای بزرگتری تحت عنوان خانواده تقسیم بندی کرده و در انتهای نام هر خانواده ویروسی از پسوند « ویریده » استفاده مینمایند. در هر خانواده ویروس بر اساس تفاوتهای فیزیکی _ شیمیایی ، تقسیمات کوچکتری به نام جنسی نیز وجود دارد. معیارهایی که برای شناسایی هر جنس بکار میرود، از خانوادهای به خانواده دیگر متفاوت است. چند خانواده ویروسی که خصوصیات مشترکی با یکدیگر دارند، یک راسته ویروسی را تشکیل میدهند.
در سال 1995 ، کمیته بینالملی طبقه بندی ویروسها بیش از 4000 ویروس جانوری و گیاهی را به 71 خانواده ، 11 زیر خانواده و 164 جنس و صدها ویروس که هنوز جایگاه آنها تعیین نشده است، تقسیم بندی کرد. امروزه مشخص گردیده که اعضای 24 خانواده ویروسی برای انسان و جانوران ، بیماریزا هستند.
آفات و بيماريها :
قارچها مانند گياهان زراعي در برابر بيماريها و آفات آسيب پذير هستند . بيماريها غالبا توسط باکتريها , کپکها يا گونه هاي مختلف ويروسها ايجاد ميشود . باکتريها و کپکهاي بيماريزا پارازيت هستند , با اينکه بعضي از آنها ممکن است ساپروفيت نيز باشند .
بزرگترين خسارتي که باکتري بر روي قارچ بوجود مي آورد بيماري مامي ( Mummy ) نيز شوند . ( که البته هنوز به اثبات نرسيده است . )
کپکهاي پارازيت ممکن است متعلق به Ascomycetes,Basidiomycetes , Phycomycetes و قارچهاي ناقص باشند . کپکها بوسيله پارازيت شدن روي ميسيليوم قارچها در بستر خسارت مي زنند . در اثر بروز کپک زرد و False Truffle تمام ميسيليوم قارچ يا فقط قسمتي از آن بين ميرود و در نتيجه باعث کاهش محصول مي شود . در ديگر موارد کپکهاي پارازيت به قارچهاي جوان يا تازه روئيده حمله نموده و باعث مردن , فاسد شدن و پائين آمدن کيفيت محصول مي شود . کپکهاي ساپروفيت هم باعث خسارت مي شوند , زيرا آنها بر سر مواد غذايي با قارچها رقابت ميکنند . قارچها و ساپروفيتها هر دو روي مواد مرده زندگي مي کنند ( Weed Moulds ) ويروس بيماري Die Back , مخصوصا در مراحل رشد اوليه , معمولا قابل تشخيص نيست . يک حمله شديد توسط ويروس باعث کاهش قابل توجه محصول و ظهور انواع و اقسام نقائص و بد شکليها ميشود . ميسيليوم قارچي که مورد حمله ويروس قرار ميگيرد , رشد کمي خواهد داشت و عاقبت مي ميرد .
موجودات پارازيت قسمتي از گياه را مي خورند و حفره هايي ايجاد مي کنند و يا بوسيله قطعات دهاني زننده مکنده خود شيرابه گياه را مي مکند که با اين عمل باعث انتقال برخي بيماريها ميشوند .
در يک مزرعه پرورش قارچ , توسط مگسها , پشه هاي ريز , کنه ها و نماتودها هم خسارت ايجاد مي شود . در ضمن لاروهاي مگسها و پشه هاي ريز نيز ميسيليومها را مي خورند و در قارچها ايجاد حفره هايي مي کنند . کنه ها مربوط به خانواده عنکبوتيان هستند و بوسيله خوردن ميسيليوم قارچ خسارت مي رسانند . و همچنين بعضي از کنه ها قارچها را لکه دار و چروک مي کنند . نماتودها موجودات کوچک و بي رنگي هستند که بدن کشيده و ساده اي دارند , آنها دستگاه تنفسي و گردش خون ندارند . نماتودهاي پارازيت اندامي شبيه دهان دارند که بوسيله آن در گياهان ايجاد حفره هايي مي کنند و شيره آنها را مي مکند . نماتودهاي ساپروفيت اين اندام را ندارند . بيشتر نماتودها بصورت غير مستقيم به قارچها صدمه مي زنند . زيرا آنها مواد غذايي قارچ را مصرف مي کنند . و موادي ترشح مي کنند که مانع رشد ميسيليوم قارچ ميشود .
نقص و بدشکلي در قارچ (Malformations) معمولا از کشت نادرست يا انتخاب غلط يک ماده شيميائي براي مبارزه و کنترل حشرات نتيجه مي شود . در بعضي موارد , بد شکلي ممکن است توسط موتاسيون ( جهش ) ايجاد شود .
به واسطه پيشرفت تکنيکهاي پرورشي , روشهاي جديد و کاملي براي جلوگيري از خسارت بعضي از بيماريها و آفات کشف شده است . براي مثال , پاسوريزاسيون (Peak-Heating) توسط Lambert در سال 1935 ابداع شد . پاستوريزاسيون , پرورش دهندگان را به روشي مجهز کرد , که توسط آن آفات و بيماريهاي مضر موجود در کمپوست را توانستند از بين ببرند , بدون استفاده از حرارت C60-58 به مدت چند ساعت , اين امکان را بوجود آورد که موجودات مضر حاضر در کمپوست از بين بروند , بدون اينکه بر رشد ميکروفلورهاي مورد نياز ( Microflora ) تاثير چشمگيري بگذارد . بيشتر کپکها , خواستار بستري با شرايط رشد بسيار ويژه هستند . در اين رابطه مشاهده شده , در بستري که شرايط عمومي مطلوبي دارد ولي هنوز مقدار زيادي آمونياک ( (Anhydrous Ammonia در آن وجود دارد , قارچها رشد نمي کنند و يا خيلي کم و ضعيف رشد مي کنند . در چنين کمپوستي کپک زيتوني
( Olive green mould ) براحتي مي تواند گسترش يابد .
يک پرورش دهنده سعي مي کند مواد غذايي مورد نياز قارچ را از راه انتخاب مواد اوليه فراهم کند . مواد غذائي اوليه بواسطه تخمير بعضي از اجزا , مکمل ها يا مواد زائد در طي فرايند کمپوست سازي بدست مي آيد .
اگر کربوهيدراتهاي سهل الوصول به اندازه کافي تخميز نشوند , ممکن است کپکهاي رقيب Weed Moulds مانند Thrichoderma Aspergillus , و غيره ... گسترش يابد . اگر PH بالا باشد قارچ نمي تواند به راحتي رشد کند . در حالي که کپکي مانند , Plaster mould , PH بالا , را ترجيح مي دهد . با استفاده از خاصيت اسيديته کمپوست , مي توانيم مانع گسترش بعضي از موجودات رقيب بشويم .
براي پرورش دهندگان هميشه امکان تهيه يک ترکيب کاملا مناسب ) Selective ) يا استريل کردن مواد مغذي پايه وجود ندارد , که در اينصورت روشهاي ديگري را , ميتوان اتخاذ کرد . در صورت وجود اين شرايط مي توان با استفادده از بذر ( اسپان ) کافي , محصول مورد نظر را برداشت کرد , که البته توصيه نمي شود .
هر موجود زنده و همچنين هر کپکي , احتياج به شرايط آب و هوائي خاصي در محيط دارد . وقتي پرورش دهنده متوجه حضور يک کپک مضر مي شود , ( مانند Cobweb يا کپکي مانند Wet Bubble که باعث بروز خسارت مي شود ) که بهترين درجه حرارت براي رشد و ايجاد خسارت در آنها C 20-18 است , با کم کردن دما مي تواند , مانع رشد آنها يا کم شدن فعاليت آنها بشود .
باکتريهايي که باعث ايجاد لکه هاي قهوه اي بر روي کلاهک قارچ مي شوند , در درجه حرارت بالا به بهترين شکل گسترش مي يا بند . به منظور جلوگيري از ايجاد خسارت توسط اين باکتريها , اولين قدم تغيير شرايط آب و هوائي است . به صورتي که اين موجودات نتوانند رشد کنندو گسترش آنها کم شود . که در اين مورد بايد رطوبت هوا را کاهش داد . اين نکته قابل ذکر است که مبارزه شيميائي فقط بعد از بکارگيري تمام راههاي ممکن صورت مي گيرد .
روشهاي کنترل فيزيکي :
پرورش دهنده قارچ , مرتب بادماي بالا ( بخار آب ) براي جلوگيري و مبارزه با بيماريها و آفات سروکار دارد . بدين معني که د رطول Peak - Heating کمپوست , براي کشتن موجودات مضر , دما به مدت 12-6 ساعت در درجه C 60 نگه داشته مي شود . اين عمل پاستوريزاسيون Pasteurization ناميده مي شود که در ابتداي فرآيند Peak - Heating رخ مي دهد .
يکي ديگر از کاربردهاي خيلي مهم کنترل فيزيکي Cook-out مي باشد . که در پايان چرخه پرورش , و قبل از خالي کردن سالن صورت مي گيرد , که دماي سالن ( همراه با محتويات ) براي مدت 12 ساعت در درجه حرارت C º 70 نگه داشته مي شود . اين عمل براي نابود کردن اسپورهاي حامل ويروس و ميسيليومهاي حاوي ويروس در مدت 12 ساعت صورت مي گيرد .
در عمل , فکتورهاي ديگر نيز اهميت دارند . براي مثال , دماي بالا در رطوبت بالاي محيط , تاثير زيادتري در انتشار بيماريها پيدا ميکند . در اينصورت براي بدست آوردن شرايطي مانند محيط آزمايشگاه , بايد دماي محيط خشک , نسبت به محيط مرطوب , کمي بالاتر باشد , و طول زمانيکه سالن بايد در اين دما باقي بماند نيز بايد افزايش يابد .
گرفتن حشرات با نوارهاي چسبناک و لامپهاي مخصوص , و يا استفاده از دستگاه Electrocuting و غيره .... از ديگر روشهاي کنترل فيزيکي بيماريها و آفات در مزارع قارچ مي باشد . روشي که براي کنترل استفاده مي شود , بستگي به نوع بيماري , فرآورده هاي قابل دسترس و هزينه آن در مقايسه با روشهاي ديگر دارد .
بيماريها و آفات مهم در اين بخش بصورت زير طبقه بندي شده است :
1- 1- کپکها :
1-1 1-1 کپکهاي که در کمپوست وجود دارند . ( کپک سبز زيتوني , قارچ کلاهک جوهري , ...)
1-2 1-2 کپکهاي که در کمپوست و در خاک پوششي وجود دارند . ( کپک قهوه اي , پلاستر سفيد , ...)
1-3 1-3 کپکهاي که در خاک پوششي وجود دارند . ( کپک قهوه اي , داکتيليوم , ورتيسيليوم و مايکوگون)
2- 2- باکتريها :
2-1 لکه باکتريايي
2-2 مامي
3- 3- ويروس : Dieback
4- 4- موجودات مضر :
4-1 حشرات
4-2 کنه ها
4-3 نماتودها
5- 5- بدشکليها :
5-1 Rosecomb and crocodile
5-2 Overlay and stroma
5-3 Opean veil or hardgil and sagging socks
مجموعهای از چند ویروس موجب بیماری خطرناک در قارچ خوراکی میشود که تحت نامهای بیماری قهوهای، بیماری ساقه آبکی، بیماری X و بیماری خشکیدگی قارچ در منابع گزارش شده است. این بیماری موجب خسارت شدید به محصول قارچ در بسترها میشود. معمولاً ساقه قارچ بیمار در اثر بیماری کشیده و قارچ به شکل چوب طبل یا بشکهای شکل در میآید. . کلاهک قبل از موعد باز میشود. باید توجه داشت که باز شدن قبل از بلوغ تیغههای کلاهک قارچ و دراز شدن ساقه قارچ ممکن است در اثر عوامل زیست محیطی و زراعی نیز به وجود آید.
بیماری ویروسی ممکن است علائم مشخصی نداشته باشد اما کاهش میزان محصول در واحد سطح شاید بهترین و مشخصترین علامت بیماری باشد. ویروس باعث ضعیف شدن و کاهش مسلیوم قارچ میشود. انتقال ویروسها از طریق اسپُراسپان به راحتی صورت میگیرد. لاروها، زنبورها و کنهها به عنوان ناقلان ویروسهای قارچ خو« بیماری فیزیولوژیکی »
بیماری تاج خروسی: در این بیماری اسپُرُُفُر (اسپرهایی که وجود دارند) حالت غیرعادی پیدا می کند، تیغه ها کوچک شده و در روی سطح کلاهک قارچ تشکیل می شود و یا در هین تغییر شکل دادن حالت باز مثل تاج خروس پیدا می کند. این بیماری عمدتاً در اثر ورود حاصل از سوزاندن روغن و ذغال در اطراف سالنها به وجود می آید. چنانچه کلاهک قارچ در مراحل اولیه تشکیل در معرض بخار یا گازهای ناشی دُز بالای قارچ کُش از مصرف قارچ کش ها یا گازهای ضدّعفونی کننده قرار گیرد نیز دچار تغییر شکل خواهد شد، زیرا این مواد سبب اختلال در رشد کلاهک و تیغه ها می شود.
الف- دستکاری شرایط محیطی: هوادهی صحیح و اجرای دقیق آبیاری (رطوبت)، کنترل حرارت، رطوبت و غلظت Co2
ب- روش فیزیکی: پاستوریزاسیون خاک پوششی به وسیله بخار آب و اشعه تابی با طول موج کوتاه.
ج- مبارزه شیمیایی: استفاده از سمّ پُرُکُلوراز مَنگَنِز و کاربرد مواد کُلُردار.
د- کنترل بیولوژیکی: به کارگیری باکتریهای آنتاگونیست علیه بیماری لکه قهوه ای. در مبارزه بیولوژیک باید هیچ مانعی برای باکتریهای آنتاگونیست وجود نداشته باشد. با یکبار مصرف باکتریهای آنتاگونیست در خاک پوششی کنترل قابل قبولی را بدست می آورد، باکتریهای آنتاگونیست برای قارچهای خوراکی مضر نبوده و مقدار محصول را کاهش نمی دهند، سازگاری با سایر روشهای کنترلی دارد .
بونياويريده Bunyaviridae
بونياويريده تعداد زيادی حداقل 200 ويروس دارای Envelope با زنجير منفی RNA قطعه شده را در بر دارد. اين ويروسها بر اساس خصوصيات ساختمانی و بيوشيميايی به 4 جنس تقسيم شده اند: بونياويروس (Bunyavirus)، فلبوويروس (Phlebovirus)، نايروويروس (Nairovirus) و هنتاويروس (Hantavirus). اکثر بونيا ويروسها آربوويروس هستند يعنی از طريق آرتروپود، بندپايان منتقل می شوند) که به وسيله ی پشها، کنه ها، يآ مگسها انتشار می يابند و در شرايط محيطی اندمی هستند. هنتاويروسها مورد استثنا بوده زيرا به وسيله ی جوندگان حمل می شوند.
ساختمان
بونياويروس، ذراتی تقريبا گرد به قطر 90 تا 120 نانومتر هستند. Envelope ويروس دارای دو نوع گليکوپروتئين (G1 و G2) بوده که سه زنجير منفی انحصاری بزرگ (L)، متوسط (M) و کوچک (S) را در برگرفته است و با پروتئين در ارتباط بوده و نوکلئوکپسيد را تشکيل می دهد. قطعات ژنوم ويروسها La crosse و مشابه آن، ويروس آنسفاليت کاليفرنيا گرد هستند. نوکلئوکاپسيد دارای پليمراز SNA وابسته به RNA (پروتئين L) و دو پروتئين غير ساختمانی (NSm و NSn) می باشد. بر خلاف ساير ويروسهای زنجير منفی RNA، بونياويريده ها فاقد پروتئين ماتريکس می باشند. 5 جنس از بونياويريده ها به وسيله تفاوتهای زير از هم متمايز شده اند:
1
تکثير
بونياويريده مانند ويروسهای زنجير منفی RNA دارای envelope تکثير می يابند. بعد از واکنش گليکوپروتئين G1 با گيرنده های سطح سلول، ويروس به روش اندوسيتوز وارد سلول شده و با غشای آندوزومی به علت اسيدی بودن وزيکل ادغام می شود. رهايی نوکلئوکاپسيد به درون سيتوپلاسم موجب می شود که سنتز mRNA و پروتئين آغاز شود.
زنجير M از RNA، پروتئين غيرساختمانی NSm و پروتئينهای G1 (چسبنده ويروسی) و پروتئين G2 و زنجير L از RNA ، پروتئين L (پلی مراز) را کد می کند. زنجير S از RNA دو پروتئين غير ساختمانی N و NSs را کد می کند.
تکثير ژنوم به وسيله ی L همچنين الگوهای جديدی را برای رونويسی فراهم می سازد. بدين وسيله ميزان سنتز mRNA افزايش می يابد. سپس گليکوپروتئينها سنتز شده و بعد از اين که به دستگاه گلژی منتقل شد در اندوپلاسميک رتيکولوم گليکوزيله می شوند، اما به غشای پلاسما انتقال نمی يابند. ويريونها با جوانه زدن در درون دستگاه گلژی تجمع يافته و با متلاشی کردن سلول يا به روش اگزوسيتوز رها می شوند.
پاتوژنز
مانند آربو ويروسها، بونياويريده دارای مکانيزمهای بيماری زايی مشابه با توگاويروسها و فلاوی ويروسها می باشند. برای مثال اين ويروسها به وسيله ی حامل آرتروپود انتشار می يابندو به درون خون وارد می گردند و ويرمی را آغاز می کنند. پيشرفت بعد از اين مرحله به ويرمی دومی و انتشار بيشتر ويروس منجر شده و ويروس را به مکانهای مورد هدف مشخص رسانده که در آنجا بيماری خاص ويروسی مانند گرفتار شدن سيستم عصبی مرکزی، کبد، کليه و اندوتليوم عروق رخ می دهد.
بسياری از بونياويريده ها موجب آسيب به نرون ها، گليال و تورم مغز شده که به آنسفاليت منجر می شود. در برخی عفونتها که ويرمی رخ می دهد (مانند تب دره ريفت)، نکروز کبدی مشاهده می شود در ساير عفونتهای ويرمی (مانند تب هموراژيک کريمه-کنگو و بيماری هموراژيک هنتان)، ضايعات به صورت تراوش پلاسما و گلبولهای قرمز از ميان اندوتليوم عروق ظاهر می شوند. در عفونت تب هموراژيک کريمه-کنگو و بيماری هموراژيک هنتان، اين ضايعات در کليه شايع بوده و با نکروز هموراژيک کليه همراه است. ويروس هنتا بر خلاف اکثر بونيا ويروسها عفونت را در ريه آغاز می کند و در ريه باقی می ماندو موجب تخريب، خونريزی بافت و بيماری کشنده ريوی می شود.
اپيدميولوژی
اکثر بونياويروسها به وسيله پشه ها، کنه ها و مگس هایphlebotomus آلوده به جوندگان، پرندگان و حيوانات بزرگتر انتقال می يابند. سپس حيوانات مخزن ويروس شده و بدين وسيله چرخه عفونت ادامه می يابد. هنگامی که انسان به محيط حشران وارد می شود آلوده می گردد. انتقال ويروس در هنگام تابستان روخ داده اما بر خلاف بسياری از ربوويروس ها برخی بونيا ويريده ها قادرند در زمستان در تخم پشه ها زنده مانده و در يک مکان باقی بمانند.
بسياری از اعضای اين خانواده از ويروسها در آمريکای جنوبی، جنوب شرقی اروپا، جنوب شرقی آسيا و آفريق يافت شده اند و اسامی متفاوتی از مکان های اکولوژيکی را بر آنها نهاده اند. ويروسهای موجود در گروه آنسفاليت کاليفرنيا (ماندد ويروس La. Crosse) به وسيله پشه ها انتشار يافته و در جنگل های آمريکای شمالی يافت شده اند. حدود 150 مورد از انسفاليت در هنگام تابستان هر سال در ايالات متحده رخ می دهد اما اکثر عفونتها بدون علائم هستند. اين ويروسها معمولا به وسيله Aedes triseriatus و Culiseta انتشار می يابندکه در آب موجود در حفره های درختان و در لاستيک های دور انداخته شده پرورش می يابند.
هنتا ويروسها، حامل آرتروپودی ندارند اما هر يک از اين ويروسها در گونه ی خاصی از جوندگان حفظ می شوند. انسان به علت تماس نزديک با جوندگان يا از طريق استنشاق ادرار جوندگان آلوده می شود. در ماه مه 1993 ، شيوعی از سندرم ريوی هنتا ويروس در Four Corners در نيومکزيکو رخ داد. علت آن به افزايش تماس نزديک با حامل موش گوزن (Deer Mouse) در هنگام فصل بارندگی زياد (غير معمول)، در دسترس بودن فراوان غذا و افزايش در جمعيت جوندگان نسبت داده شده است. نژادهای ويروس Sin Nombre و Convict Creek از افراد بيمار و جوندگان جدا شد. از آن زمان هنتاويروس با موارد ديگری از بيماری مجرای تنفسی در ارتباط بوده است.
سندرم های کلينيکی
بونياويروسهايی که از طريق پشه منتقل می شوند معمولا عامل بيماری تب دار عير اختصاصی مشابه آنفولانزا همراه با ويرمی می باشند. تمايز اين بيماری از بيماری های ديگر مشکل است. دوره کمون اين بيماری حدود 48 ساعت بوده و تب حدود 3 روز ادامه دارد. اکثر بيماران مبتلا به عفونت، حتی آنهايی که به وسيله ويروسهای شناخته شده ای آلوده شده اند که موجب بيماری شديد می شود (مانند ويروس تب دره دريفت، ويروس La Crosse) بيماری خفيفی دارند.
بيماری های انسفاليت (مانند آنسفاليت حاصل از La. Crosse) بعد از دوره کمون حدود يک هفته به طور ناگهانی بروز می کنند و علائم بيماری شامل تب، سردرد، بی حالی و استفراغ است. حمله ناگهانی بيماری در 50 درصد از بيماران مبتلا به آنسفاليت معمولا در اوايل بيماری رخ می دهد. علایم التهاب مننژ گاهی مشاهده می شود. بيماری به طور متوسط حدود 7 روز ادامه دارد. مرگ در کمتر از 1 درصد بيماران رخ داده اما اختلالات ناشی از حمله بيماری ممکن است به صورت عوارض بعدی در 20 درصد موارد رخ دهد.
تبهای هموراژيک مانند تب دره دريفت با خونريزی های ناشی از نشت خون، خون مردگی پوست، خون دماغ، استفراغ خون، سياه شدن مدفوع به علت وجود خون و خونريزی از لثه ها اختصاص يافته است. مرگ در نيمی از بيماران مبتلا به خونريزی رخ می دهد. سندرم ريوی هنتا ويروس، بيماری خطرناکی بوده که مرحله مقدماتی آن با تب و درد عضله شروع شده و به سرعت به وسيله ی ادمای بينابينی ريوی، نارسايی تنقسی و مرگ در مدت چند روز دنبال می شود.
تشخيص آزمايشگاهی
به طور کلی، آزمايشهای سرولوژی برای اثبات تشخيص عفونت با بونياويروس انجام می شود. آزمايش خنثی سازی ويروس را می توان برای شناسايی ويروس مورد استفاده قرار داد. آزمايشهای اختصاصی برای وجود ايمونوگلوبولين M (IgM) در اثبات عفونت حاد مفيد هستند. تغيير سرولوژی يا افزايش 4 برابر در تيتر آنتی بادی IgG برای اثبات عفونت اخير به کار می رود اما واکنشهای متقاطع در جنسهای مختلف ويروس شايع هستند.
با آزمايش ELISA می توان آنتی ژن ويروس را در نمونه های کلينيکی از بيماران مبتلا به ويرمی شديد (مانند تب دره دريفت، تب هموراژيک با سندرم کليوی، تب هموراژيک کريمه-کنگو) مشاهده نمود. آزمايشهای ELISA که می تواند آنتی ژن ويروس را در پشه ها مشاهده کند، توسعه داده شده است.
هنتاويروسهای Sin Nombre و Convict Creek با استفاده از RT-PCR (واکنش زنجير پليمراز ترانس کريپتاز معکوس) شناسايی شده اند. RNA ويروس موجود در بافت بيمار با استفاده از نسخه بردار معکوس به دست آمده از يک رتروويروس، به DNA مکملی آن تبديل شده و سپس پرايمرهای DNA نشان دهنده ی توالی های خاص هنتاويروس برای تکثير سنتز توالی های خاص هنتاويروس مورد استفاده قرار گرفته است.
درمان، پيشگيری و کنترل
هيچ گونه درمان خاصی برای عفونتهای ناشی از بونياويريده موجود نيست. بيماری در انسان با قطع تماس بين انسانها و حاملين ويروس که می تواند آرتروپود يا پستاندار باشد، جلوگيری می شود. حاملين آرتروپود به وسيله موارد زير کنترل می شوند:
کنترل جوندگان موجب کاهش انتقال بسياری از ويروسها به ويژه هنتاويروس می شود. واکسنهای تب دره ريفت برای استفاده از انسان و حيوانات (گوسفند و گاو) ساخته شده است.
1- از بين بردن شرايط حامل رشد؛ 2- استفاده از حشره کش ها؛ 3- نصب توری و حفاظ در پنجره ها و درها؛ 4- پوشيدن لباس محافظ؛ 5- کنترل هجوم کنه و حيوانات.
تا اواخر قرن 19 اصطلاح ویروسهای پالایهپذیر برای مشخص کردن عوامل عفونی که از صافیهای عبور دهنده باکتریها، قارچها و پروتوزوئرها میگذرند، اطلاق میشد. چند سال بعد اصطلاح پالایهپذیر حذف شد و کلمه ویروس به معنی سم اختصاصا به عوامل عفونی پالایهپذیر غیر قابل رویت با میکروسکوپ نوری اطلاق گردید. طی دهه اول قرن 20 اغلب دانشمندان عقیده داشتند که ویروسها عوامل عفونی مشخصی هستند که فقط از نظر اندازه با سایر میکروارگانیسمها تفاوت دارند. ولی به زودی کشف گردید که ویروسها روش خاص خود را برای تولید مثل دارند و ترکیب شیمیایی آنها مشخص میباشد. ابداع میکروسکوپ الکترونی و پیشرفت در روشهای تجزیهای موجب پیشرفت در شناسایی ساختمان و اختصاصات فیزیولوژیکی ویروسها شد. ویروسها به چند دلیل مورد توجه خاص میکروبیولوژیستها قرار دارند.
این ذرات اساسا با کلیه میکروبهایی که شناخته شده، از نظر ساختمان و چرخه زندگی تفاوت دارند.
گرچه برای اغلب عفونتهای باکتریایی داروهای متعددی در دسترس قرار دارد ولی برای بیشتر عفونتهای ویروسی داروی موثری وجود ندارد و از اینرو ویروسها در اغلب کشورها بیماریهای تهدید کننده حیات انسان ایجاد میکنند.
به احتمال زیاد ، ویروسها با برخی از انواع سرطانها در انسان رابطه دارند.
تاریخچه
علم ویروس شناسی ، پس از استفاده از واکسن آبله توسط ادوارد بوخنر (1798) ، تهیه واکسن علیه بیماری هاری بوسیله پاستور (1884) و انتقال بیماری موزائیک توتون از گیاه آلوده به گیاه سالم توسط مایر در سال 1886 آغاز شده است. در سال (1892) ایوانوسکی ، ثابت کرد که عامل مولد بیماری موزائیک توتون از صافیهای بسیار ریز نگهدارنده باکتری عبور میکند. ولی نتوانست به اهمیت مساله پی ببرد. تا این که بیچرنیک (1898) دانشمند هلندی که باید او را پدر ویروس شناسی به حساب آورد ادعا کرد که عامل بیماری موزائیک توتون ، باکتری نیست و عامل مسری دیگری است. استنلی در سال 1935 با استفاده از روشهای جدید خالص کردن پروتئینها ، ویروس را خالص کرد و به پاس این خدمت ، موفق به دریافت جایزه نوبل شد.
صفات عمومی ویروسها
عواملی هستند که واجد یک نوع "]اسید نوکلئیک هستند. دارای پوشش پروتئینی در اطراف اسید نوکلئیک میباشند. در درون سلولهای زنده با بکار گرفتن ماشین سنتزی سلول میزبان تکثیر پیدا میکنند و اسید نوکلئیک ویروسی را به سایر سلولها منتقل میسازند. چون ویروسها فاقد ]آنزیمهای لازم برای متابولیسم هستند، لذا برای تکثیر یافتن بایستی از ماشین متابولیکی سلول میزبان استفاده نمایند. این کیفیت از نظر]پزشکی جهت پیدا کردن داروهای ضد ویروسی فوقالعاده اهمیت دارد. زیرا اکثر داروهایی که تکثیر ویروسها را متوقف میسازند، برای اعمال سلول میزبان نیز اثر میگذارند. ولی وجود لیپیدها در سطح خارجی برخی از ویروسها آنها را در برابر حلالهای لیپیدها نظیر اتر ، آسیبپذیر میسازد.
منشا تکاملی ویروسها
sina285
07-12-2008, 12:26 PM
اصطلاحات و تعاریف در ویروس شناسی
· کپسید:پوشش یا غلاف پروتئینی کهژنوم اسید نوکلئیک را در بر میگیرد.
· کپسومر (Capsomer):واحدهایمورفولوژی هستند که با استفاده از میکروسکوپ الکترونی در سطح ویروسهای 20 وجهی میتوان آنها را مشاهده کرد. هر کپسومر متشکلاز مجموعهای از پلی پتدیدمیباشد. کپسومرهایی که کاملامشابه یکدیگرند، گاهی از لحاظ شیمیایی با یکدیگر تفاوت دارند.
· ویروس ناقص (Defective Virus):ذره ویروسی را گویند که در بعضی از جنبههای همانند سازی از لحاظ عملکردی ناقصاست.
· پوشش Envelope:غشا لیپیدی است کهاطراف برخی از ذرات ویروسی را احاطه میکند. این پوشش طی روند کامل شدن ویروس وجوانه زدن از غشا سلولی بدست میآید. گلیکوپروتئینهای رمزگذاری شده توسط ویروس درسطح پوشش قرار میگیرند که اصطلاحا آنها را پیلومرمینامند.
· نوکلئوکپسید:مجموعه پروتئین _ اسیدنوکلئیک را گویند که در واقع فرم بسته بندی شده ژنوم ویروس است. این اصطلاح معمولاوقتی بکار میرود که نوکلئوکپسید یک جز ساختمانی کوچک از یک ذره ویروسی پیچیدهترباشد.
· واحدهای ساختمانی (Structural unit):ساختمان پایه پوسته از جنس پروتئین است و معمولا مجموعهای از چند واحد پروتئینیمتفاوت میباشد. واحد ساختمانی غالبا به عنوان پروتومرشناخته میشود.
· زیر واحد:یک زنجیره واحد پلی پپتیدیکه به صورت پیچ خورده میباشد را زیر واحد گویند.
· ویریون:ذره ویروس کامل است که دربرخی موارد معادل نوکلئوکپسید است، اما در ویریونهای پیچیده شامل مجموعه نوکلئوکپسید و پوشش محیطی آن است. ویریون در انتقال اسید نوکلئیک ویروسی از سلولیبه سلول دیگر نقش دارد.
· دوره تغذیه اکتسابی:زمانی است کهناقل عاری از ویروس از منبع ویروس تغذیه میکند.
· پایداری:زمانی است که یک ناقل ، پساز جدا شدن از منبع ویروس ، میتواند آلوده باقی بماند.
· ویروسهای نیش زاد:ویروسهایی هستندکه بر روی نیش آروارهای حمل میگردند و اکثر یا تمام ویروسهای ناپایا را شاملمیشوند.
· ویروسهای گردش کننده:ویروسهاییهستند که از دیواره معده ناقل عبور میکنند و واردخونولنف میشوند. سپس از طریق غدد بزاقیقطعات دهانی ناقل را آلوده میسازند. اینها در ناقل تکثیرنمییابند.
· ویروسهای تکثیر شونده:ویروسهاییهستند که در بدن ناقل خود تکثیر مییابند.
تنش یخبندان
تنش يا استرس (stress)در تعريف عام عبارت است از هر نيرويي که به جسمي وارد شود که بر اثر اين نيرو تغييراتي در ابعاد جسم بوجود آيد که آن تغييرات را استرين(strain)گويند.
در گياهان استرس برابر است با تحريکاتي که منجر به برهم خوردن تعادل زيستي گياه شود.
حالت تنش در شرايطي پيش مي آيد که يک عامل محيطي خارج از حد نرمال بر گياه اثر گذارد.سرمازدگي يکي از مهمترين استرسهاي محيطي موثر در رشد گياهان و توليد محصولات زراعي است.سرمازدگي و يخ زدگي توزيع جغرافيايي،رشد فصلي و کاهش معني دار توليد را در بسياري از گياهان زراعي باعث مي شوند.
تنش به دو دسته تقسيم مي شوند:
1)زيستي Biotic stress
2)غير زيستيAbiotic stress
از جمله تنش هاي غيرزيستي مي توانبه تنش دما (temperature stress) اشاره نمود که اين نوع تنش نيز
خود به 3 بخش تقسيم مي شود.
1)تنش سرما Chilling stress
2)تنش يخبندان Freezing
3)تنش حرارت بالا Heat stress
تنش سرما:
اين تنش در دماي بالاتر از صفر اتفاق مي افتد و در نتيجه بر حالت عادي گياه اثري ندارد.
اين درجه حرارت را بين c15-0 تقسيم بندي کرده اند که گياهان براساس نوع گياه از نظر حساسيت به تنش سرما در اين محدوده قرار مي گيرند.آثار اوليه تنش سرما عبارتند از :تغيير رنگ،کلروز،کاهش عمومي رشد،تخريب بافت هاي سلولي،عدم جوانه زني،بذور،عدم انتقال مواد فتوسنتزي،عدم جذب عناصر غذايي ...
از نظر فيزيولوژيکي برخي از آثار اين تنش الاستيک يا برگشت پذير خواهند بود و با رفع دوره سرما بهبود خواهند يافت.مانند کاهش موقت فتوسنتز.توقف رشد سلولي،کاهش جذب آب و مواد معدني.
برخي از آثار ديگر اين تنش مانند فتوسنتز در اثر تخريب کلروپلاست ها غير قابل برگشت يا پلاستيک مي باشند.از نمونه هاي ديگر آثار غيرقابل برگشت تنش سرما مي توان اثر بر تنفس ،پيري زودرس را نام برد.
تنش يخبندان:
تنش يخزدگي زماني پيش مي آيد که درجه حرارت به پايين تر از نقطه انجماد آب(صفر درجه سانتي گراد)تنزل نمايد.در اثر اين تنش در داخل بافت ها يخ تشکيل مي شود.مکانيزم اين عمل به شرح زير مي باشد. يخ زدگي آب بين سلولي باعث منفي تر شدن پتانسيل آب بين سلولي نسبت به درون سلول مي شود.با توجه به اينکه آب از محل داراي پتانسيل بيشتر به طرف محل داراي پتانسيل آب کمتر حرکت مي کند،بنابراين آب درون سلول به فضاي بين سلولي که داراي پتانسيل مي باشد حرکت مي کند.علت اين امر برقرار تعادل پتانسيل آب بين سلولي و درون سلولي مي باشد.در اين حالت برگ ها و ساير اندام هاي گياه حالت پلاسموليز بخود مي گيرند.تا اين مرحله گياه آسيب جدي نمي بيند.در واقع مرگ سلولي زماني اتفاق مي افتد که هوا گرمتر مي شود.زيرا با ذوب شدن يخ سلول ها،با توجه به اينکه سلول ها جهت تنظيم فشار بايد آب جذب کنند و اين جذب باعث بالا رفتن فشار تورگر مي شود،فشار زياد به غشا هاي سيتوپلاسمي آسيب رسانده و آنرا از چند نقطه پاره مي کند و لذا سلول بر اثر پارگي غشا از بين مي رود.به همين دليل گياهان حساس به تنش سرما مانند ذرت،لوبيا و نيشکر به هنگام قرارگيري در معرض دماهاي پايين به صورت شل و خيس در مي آيندو غشا سلولي آنها بسيار آسيب مي بيند.
اثرات دماهاي پايين بر نيشکر:
سرما و يخبندان اثرات مختلفي بر قلمه هاي نيشکر،بوته هاي جوان و نيشکرهاي بالغ دارد.تنش سرمازدگي(نه يخ زدگي)بر قلمه هال به مدت 3 هفته ،منجر به کاهش تعداد ساقه،ارتفاع ساقه،وزن ساقه و عملکرد شکر مي شود و نتايج اين تنش به راتون ها نيز منتقل مي شود.
مطالعات نشان مي دهند که نيشکرهاي جوان مي توانند دوام درجه حرارت حداقل (min)حدود 1- درجه سانتيگراد را به مدت 4-2ساعت بدون کاهش در تعداد ساقه يا قابليت زيست آنها تحمل مي کنند.هرچند دوام درجه حرارت در c4- تعداد و قابليت زيست ساقه را کاهش ميدهد.تعداد و قابليت زيست ساقه را کاهش مي دهد.
تعدد وقوع سرمازدگي اثرات مضر را از طريق کاهش عملکرد ني وشکرنشان مي دهد.در گياه جوان نيشکر و گياهان جوان مزارع راتون بيشتر جوانه هاي اوليه و ثانويه يا همه آنها که سر از خاک بيرون آورده اند و مريستم يا نقاط رشدي آنها که بالاي سطح زمين است در اثر يخ زدگي از بين خواهند رفت،در اين گياهان رشد مجدد پس از رفع سرما و يخ زدگي،توسط مريستم هاي ثانويه که نقاط رشدي آنها در زير خاک مي باشد و از سرما محافظت شده اند از سرگرفته مي شود.
اثريخ زدگي زودرس بر نيشکرهاي رسيده از لحاظ تکنولوژيکي،توليد و ذخيره ساکارز را کم يا قطع مي کند که ممکن است شکر توليدي را کم کند. يخزدگي شديد همچنين باعث تغيير در کيفيت شربت پس از آسياب مي شود. پس از يخزدگي،ساکارز در شربت خلوص و عملکرد شکرکاهش مي يابد.همچنين مي تواند باعث کاهش وزن ساقه نيشکر در زمان پس از يخزدگي شود.درجه حرارت حدود يخزدگي ابتدا آسيب زدن به برگ ها مي شود.يک يخ زدگي ملايم بين c5/1 -0 براي ساعاتي کوتا ممکن است باعث کلروزنواري يا سوختگي در حاشيه برگها شود.تغييراتي معني دار کيفيت شربت ايجاد نخواهد شد مگر اينکه سرمازدگي بيشتر از چند ساعت طول بکشد.يخ زدگي کمي بيشتر حدود c4- تا 2- براي مدت چند ساعت،قهوه اي شدن وسيع برگ ها و مرگ جوانه انتهايي را بدنبال خواهد داشت.عکس العمل ارقام مختلف دراين خصوص متفاوت مي باشد.
برخي از جوانه هاي جانبي از بين خواهند رفت،نيز يخزدگي ممکن است بافت ميانگره هاي بالايي را ازبين ببرد.تغييرات در کيفيت شربت ممکن است در طول يک يا دو هفته ظاهر شده که با توجه به واريته متفاوت مي باشد.يخزدگي شديدتر از 5- تا 4- درجه سانتي گراد براي ساعاتي کوتاه برگ ها را کاملا قهوه اي کرده و بخشي يا تمام ساقه يخ مي زند.جوانه انتهايي و همه يا تقريبا همه جوانه هاي جانبي از بين خواهند رفت،کاهش کيفيت شربت نيز ممکن است در طول چند روز آغاز شود.يخ زدگي در دماي پايين تر از 6- درجه سانتي گراد تقريبا همه برگ ها،جوانه ها و بافت هاي داخلي ساقه را تا سطح زمين از بين مي برد.گرچه برخي از ساقه ها در مقابل شکسته شدن مقاومت ميکنند ولي ساقه هاي شکسته نيز به چشم مي خورند.کاهش کيفيت شربت ممکن است چند روز پس از وقوع يخ زدگي،يکسري متغييرها نيز ممکن است وجود داشته باشند.از جمله اين متغييرها مدت يخ زدگي مي باشند. درجه حرارت حدود 1- درجه سانتي گراد براي مدت 48 ساعت بصورت مداوم و يکنواخت مي تواند همانند درجه سانتي حرارت 6- درجه سانتي گراد در مدت کوتاه خسارت وارد کند. نيشکرهاي کاملا يخزده ممکن است براي مدت يک تا دو هفته جهت آسيابها غيرقابل پذيرش باشند.تصميم فوري براي برداشت برخي از مزارع جهت جلوگيري از صدمه ديدن ساير مزارع مورد نياز است. هواي مرطوب و گرم پس از يخزدگي نيز ميزان تخريب مزارع را بيشتر مي کند. ميزان خسارت به ساقه ها از طريق خرد کردن ساقه ها و مشاهده بافت هاي يخزده يا بافت هاي خيس شده قابل تخمين است.دماهاي پايين بصورت نرمال در نزديکي سطح زمين مي باشند.بنابراين نيشکرهاي ورس کرده براي يخزدگي مستعدتر هستند. ميزان خسارت يخزدگي در نيشکر بايد مورد توجه قرار گيرند:
1) برآورد و تشخيص يخزدگي نبايد بيشتر از يک هفته پس ازيخزدگي در مزعه آغاز شود.
2) اثرات يخزدگي بصورت تجمعي است،چنانچه تکرار شود،برآورد و تخمين مجدد مورد نياز است.
3) حتي با وجود اينکه محور ساقه مي تواند به رنگ قهوه اي درآيد.جوانه ها و نقاط رشدي گياه مي توانند از آسيب مصون بمانند.
4) اثرات يخزدگي برروي برگها هميشه نمي تواند مشخص کننده وسعت تخريب داخلي ساقه ها باشد.
5) تشخيص يخزدگي بايد حداقل ازچند نقطه داخلي نسبت به خطوط حاشيه مزارع انجام شود.
6) جهت تشخيص يخزدگي ،ساقه ها بايد بصورت طولي برش داده شوند
علت تلخ بودن پرتقال های یخ زده
در زمستان سالي که گذشت (1386) يخبندان شديد سبب گرديد که دماي 13ـ درجه سانتي گراد براي چند روز آسيب جدي به درختان ميوه و مرکبات در باغ و انبار وارد شود و سبب تلخي ميوه پرتقال گردد.
علت چيست؟ عامل تلخي ماده اي به نام نارنجين مي باشد که در ميوه هاي جوان و نا بالغ بيشتر از ميوه هاي رسيده توليد مي شود. يخبندان سبب افزايش توليد اين ماده و حرکت آن از پوسته به گوشت ميوه مي شود.
نارنجين چيست؟ نارنجين فلاونوئيدي است که داراي ساختمان اگليکون گليکوزيدي است و در گياهان خانواده گل ستاره ، سرخس ، نعناع ، آراليا و برخي گياهان ديگر وجود دارد.
در خانواده مرکبات ، نارنجين در سه جنس سيتروس ، گلامنيا و کامکوات وجود دارد. در جنس سيتروس بيشترين ميزان آن در گريپ فروت و شدوک توليد ميشود. نارنجين در بافت هاي مختلف گياهي شامل برگ ، شاخه هاي در حال رشد ، نهال هاي بذري 1 تا 5 ساله ،بذر جوانه زده و بخش هاي مختلف ميوه توليد ميگردد و پائين ترين غلظت در ريشه ، ساقه ، برگ هاي مسن و بذرها بوجود مي آيد.
کاربرد و اثرات درماني نارنجين :
نارنجين داراي اثرات ضد تومور و ضد سرطان سينه ميباشد. نارنجين سبب حفاظت معده در مقابل زخم هاي ايجاد شده ميشود. به عنوان آنتي اکسيدان و کاهش دهنده چربي خون اهميت فراواني دارد. در آزمايشات بر روي حيوانات ، نارنجين سبب افزايش کارائي جذب دارو ها براي فشار خون بالا ميشود. در کشاورزي از نارنجين به عنوان محرک رشد برخي سبزيجات استفاده مي گردد.
یخبندان و تخریب پوشش گیاهی
یخبندان به گیاهان اسیب می رساند، زیرا در اثر یخبندان بافت گیاهان یخ می زند. یخ زدن بافت گیاهان یک فرایند فیزیکی است که به وسیله ایجاد و تشکیل یخ در هسته شده و محرک باکتریهاست. گسترش و تداوم دمای شب در گیاهانی که در فضای باز قرار دارند و در مرحله رشد گیاه مخرب است. گیاهان سبز شامل مقدار زیادی آب است که سبب ایجاد یخ زدگی در دمای انجماد شده و و باعث گسترش گسیختگی دیواره های سلول و بافت گیاه می باشد.
بخاطر وجود ماده شیمیایی در بافت گیاه در دماهای زیر صفر درجه یخ می زند.زمانی که یخ ها ذوب شدند اب از سلولها تراوش می کند. گسیختگی سلولها و نشت اب نتیجه مرگ گیاه می باشد.
در مورد گندم، فشار یخبندان می تواند باعث برگ مانند شدن و مرگ آن شود. تخریب باعث توسعه برگ گیاهان شده و تاثیر آن بر محصولات می شود. هر چند اسیب یخبندان در طی رشد ساقه می تواند اساساً تولید محصول را کاهش دهد. اسیب پذیری به برگ در مرحله رشد آن در نهایتاً باعث تغییر رنگ برگ و تیره شدن آن می شود.
ساقه اسیب دیده تغییر رنگ داده و اغلب پیچیده شده و بصورت گره زده در می اید.
در مرحله بالا امدن اسیب یخ زدگی می تواند بخش تولید مثل را تحریب نماید. اسیب پذیری به اسانی بعد از خوشه دهی غیر منتظره است زیرا از رشد گل جلوگیری می کند.در مرحله گل دهی بخش تولید مثل گیاه ممکن است بعضی از خوشه ها تخریب شده و اگرچه انها نتوانند تولید دانه بکنند.
روش های محافظت از گیاهان در برابر یخبندان
روشهای محافظت از گیاهان ممکن است به روش های فعال و غیر فعال تقسیم شوند.
روشهای غیر فعال شامل انتخاب یک مکان و انتخاب متنوع و چندین روش دیگر مانند برس زنی و امایش سطح خاک می شوند. این روشها به صرف انرژی زیادی نیاز ندارند.
سیستم های فعال محافظت با استفاده از روش هایی مانند ابیاری، گرمایش و ماشین های بادی انرژی زیادی را صرف می کنند. روش های فعال نیاز به صرف انرژی زیادی هستند. انتخاب مناسب روشهای محافظت به عوامل مختلفی وابسته است که می توان به مکان،نوع محصول، اشاره نمود ، مزایا و معایب روش های محافظت وابسته به هزینه ها و اصول عملیات روش هاست.
تعدادی از عوامل شامل ایجادکیسه های هوایی است که در زمان دماهای خیلی پایین استفاده می شود. قبل از برنامه ریزی یک محصول یا باغستان، بهترین روشها محافظت از یخبندان به دقت برای آن مکان انتخاب می شوند.سایت مورد نظر باید بر اساس شرایط متداول و پایدار اقلیمی در آن محل انتخاب شود و شیب و ویژگی های خاکشناسی آن مشخص شود. امکان دارد که در برابر هوای سرد حصار یا مانع مانند فنس،پرچین یا درخت کاری
بعضی از حصار موقعیت مناسبی برای جلوگیری از حساسیت های سرمایش جهات محافظت از گیاه مناسب نیستند. برداشت یا کم کردن درختان که مانع ایجاد هوای سرد می شود مطلوب است. اگر یک مکان دارای زهکشی هوای سرد می باشد در این هنگام می توان باید نگران تخریب یخبندان بود. حسایت درختان میوه به یخبندان در تپه های شیب دار به جهت زهکشی مناسب هوای سرد و رانده شدن آن به دره کمتر است. چنین مکانهایی در طی یخبندان تابشی معمولا 2 تا 4 درجه گرمتر می باشند.
یخبندان و پایداری خاکهای زراعی
کاشت گیاهان مقاوم در برابر سرما و یا خاکهایی که دارای محافظت بیشتر نسبت به سرما می باشند یکی از شیوه های فرار از خطر سرمازدگی و حفظ درختان میوه جهت تولید بیشتر محصول می باشد. جودر نسبت به جوی معمولی مقاومت بیشتر در برابر یخبندان دارد و جو نسبت به گندم دارای مقاومت بیشتر است. تنوع در ژنتیک در باعث تغییرات گیاهان نسبت به هم در برابر فشارهای یخ زدگی نیز می شود.
تاریخ مناسب برای کشت:
بهترین و مناسب ترین راهبرد ذخیره و تولید محصول در شرایط یخبندان انتخاب زمان مناسب برای کاشت محصول می باشد. وارد کردن محصول در مرحله دانه دهی، مقاومت نسبت به یخبندان را شدیدا کاهش می دهد.
اگر تاریخ کشت محصولات در روشها و مراحلی تنظیم شود که از دوره های یخبندان سنگین حفظ شود، آن هنگام از تخریب در امان می ماند. در مورد گندم لازم است مرحله گل دهی بعد از خطرات بالای یخبندان اتفاق بیفتد. نتایج آزمایشات در NSW نشان می دهد که گندم می تواند از اسیب یخبندان حفظ شود در یک سطح وسیع شکوفه دهی محصول در اواسط سپتامبر در مناطق اطراف ترانگی، در اواخر سپتامبر در منطقه نارابی، و در اوایل سپتامبر در ناحیه تامورس اتفاق می افتد.
تاخیر در زمان گل دهی احتیاج دارد در برابر اسیب ها متعادل شود که بتواند، در یک دوره از درجه حرارت های بالاو فشار رطوبتی دانه شروع به پر شدن کند، هر هفته تاخیر بعد این تاریخ در شکوفه دهی می تواند ثمر دهی محصول شدیدا کاهش می یابد.
ذخیره گرمایی در خاک
فراوانی یخبندان و شدت آن در باغستانهایی که دارای خاک آماده، خشک و پوشیده از کود و گیاه است با باغستانهایی که دارای خاک مرطوب، فشرده و عاری از علف هست، مقایسه می شود. برای اینکه خاک برهنه و عاری از علف بوده و دارای فشردگی، ذخیره رطوبت دارای گرمایی بیشتر در طی روز از خاک پوشیده و دارای سایه و خشک می باشد. در شب این گرما آزاد شده و به لایه پایین هوای محاط شده در درختان میوه و گیان وارد می شود .و حداقل تخریب یخبندان اتفاق می افتد. در جوامع گیاهی ایستاده، یخبندان به سه شیوه افزایش می یابد:
سایه اندازی بر خاک، باز داشتن جریان گرما در خاک، خشک کردن خاک و بالا بردن سرمایش تشعشعی در سطح که می تواند در سطح میوه رخ دهد.
ضخامت کودهای گیاهی انتشار یخبندان را افزایش داده و و در سرتاسرلایه خاک ازجریان گرما در طی روز جلوگیری می کند و جریان گرما را در بالای پوشش در طی شب با تاخیر همراه است. در زمینهای خشک ایجاد هوا در خاک که می تواند جلوی جریان گرما را بگیرد و گرمای پایین را در طی روز ذخیره کند.
بنابر این حفاظت خاک مرطوب با تکرار آبیاری های سبک در نگهداری از خاک عریان و فشرده سازی خاک با غلطک بهترین تکنیک برای تخریب یخبندان در باغستان ها، تاکستان ها است.
پوشاندن پوشش گیاهی
کاشت درختان با سایبان بزرگ در باغستان مقداری از یخ زدگی را از بین می برد. نخل خرما در کالیفرنیا و درختان صنوبر در الابامای جنوبی بعنوان سایبان جهت پوشش درختان مرکبات استفاده می شود.
برس کشی راه معمولی جهت محافظت پوشش گیاهی از گزند یخبندان است. پوششی از کاغذ ضخیم قهوه ای رنگ با استفاده از تیرهای نوک تیز در مت ردیفهای شرقی – غربی گیاهان استفاده می شود.
به یک زمین پر از بوته نگاه کنید. در طی روز، بعنوان یک محافظ در برابر بادهای سرد بعنوان یک بادشکن عمل م کند، هنگامیکه در شب تشعشع کاهش می یابد. امواج یا چرخش پوشش پلی پروبلین در یک ضخامت زیاد از میوه ها محافظت می کند. مواد استفاده شده، چندین درجه را محافظت می کنند. پلاستیک سفید همبسپار نیز به عنوان محافظت کننده در گلخانه عمل می کند اما، برای گیاهان و میوه ها استفاده نمی شود. روشنایی و پوشش متوسط بهترین محافظت را برای رشد کم محصول مانند توت فرنگی ایجاد می کند.
تغذیه:
کاشت گیاهان برگ ریز پاییزی، مانند هلو ;که از تغذیه سالم بهره مند نیست مخصوصاً در مورد نیتروژن، شدیدا در معرض خطر یخبندان قرار دارد. شکوفه میوه چنین درختانی سلامتی کمی دارند و به اسانی در برا بر یخبندان صدمه می بینند. کاربرد نیمه تابستان یا کار برد فوری نیتروژن می تواند توان میوه را افزایش داده و شکوفه گیاه رشد کند و بعضا تاخیر در گلدهی در میوه های هسته دار مانند هلو ایجاد کند. هرچند درختان میوه با نیاز به باروری کم مانند سیب و گلابی نیاز معمولی به باروری در اواسط و اواخر تابستان ندارند. مانند زغال اخته.
آبیاری
ابیاری قدیمیترین، عمومی ترین و موثر ترین روش محافظت در برابر یخبندان می باشد. ابیاری با نصب آب پاش در بالا یا پایین تاج پوشش گیاهی استفاده می شود. اب پاشی تاج پوشش گیاهی با رها کردن اب با گرمای نهان آب زمانی اب از مایع به یخ تبدیل می شود مقداری گرما تولید می کند. در طول یخ زدن گرمای نهان ازداد شده و گرمای از دست رفته پوشش گیاهی و محیط را جبران می کند. در شرایط بهتر، اب پاشی چرخشی یک بار در هر دقیقه و بکار بردن آب به میزان 2 تا 4 میلیمتر اب در یک ساعت کفایت می کند. پشتیبانی کردن منبع اساسی می باشد، عمل نکردن منبع زیانبار خواهد بود. یک بار شروع کردن ابیاری باید تا صبح زمانی که نور خورشید به درختان برخورد ادامه پیدا کند. در دیگر فصل ها اب پاشی می تواند بعنوان سرد کنند تبخیری استفاده شود، سر کنند مصنوعی، تاخیر در شکوفه دهی، جلوگیری از افتادن میوه ها، جلوگیری از افتاب سوختگی و بهبود رنگ میوه ها را باعث می شود.
بخاری:
گرمسازی باغستان بریا محافظت از در برابر یخبندان در بعضی از کشورها استفاده می شود. هزینه بالای سوخت باعث می شود که از دیگر روشها استفاده شود. استفاده از بخاری چندن مزیت دارد. بیشتر بخاری ها جهت سوخت نفت طراحی شده اند و می توانند به وسیله شبکه ای از لوله ها به هم متصل می شوند. مزیت این سیستم این است که می توان میزان سوخت رسانی به بخاری ها را کنترل نمود و فشار سوخت را تنظیم کرد.
سیستم خط لوله می تواند برای استفاده از گاز طبیعی طراحی شود. پروپان، نفت خام، و سیستم گاز طبیعی برای خانواده مرکبات می تواند استفاده شود. بخاری با سه مکانیسم محافظت را فراهم می کنند:
ماشین های بادی
هدف استفاده از ماشین های بادی،انتشار هوای گرم در زیر سطح محصولات می باشد. ماشین های بادی فقط در سرایط یخبندان تشعشعی موثر می باشند.انها باید با اطلاع دقیق ما از چگونگی تاثیر یخبندان در یک ناحیه یا باغستان نصب شوند. نوعی از ماشین های بادی با پره هایی با قط 5 متر که بر روی برج استیلی که 10 متر ارتفاع دارد قرار گرفته اند و تقریبا برای 4 هکتار از منطقه مناسب هستند. این در صورتی است که منطقه مسطح باشد. پروانه های این ماشین ها با نیرویی 85 تا 100 هکتو پاسکال نیاز دارند. ماشین های بادی همزمان با بخاری های بکار گرفته می شوند. زمانی که این دو روش ترکیب می شود نیاز به تعدادی بخاری در هکتار به نصف کاهش پیدا می کند.
پیش بینی یخبندان؛پیش بینی فصلی
شاخص نوسان جنوبی مخصوصاً SOI در طی پاییز ایجاد شده یک ابزار نسبتا معتدل برای تعیین تاریخ یخبندان های گذشته و تعدادی از زورهاییخبندان در استرالیا با یک زمانی که 4 تا3 ماه می باشد. فاز نوسان جنوبی عاملی که باعث یخبندان های اواخر پاییز می شود. فصلی که یخبندان های زیادی دارد و در ارتباط با این الگوها است و برای اینکه به النینو وابسته و نتیجه کاهش بارندگی است. اسمان صاف و سرمایش تشعشع سطح زمین در طی زمستان و اوایل پاییز بوجود می اید.
بالا امدن سریع فاز نوسان جنوبی در اواخر پاییز نشاندهنده یخبندان های محدود در این فصل و یخبندان زود رس می باشد. به بیانی دیگر دوره یخبندان در داخل یک فصل قدیمی نخواهد بود. دلیلی که برای ای نظریه وجود دارد، میانگین بارش و پوشش ابر است که برای یک تعدا بیشتری از زوزها در نتیجه تشعشع تابشی سطح زمین در فصل زمستان وجود دارد.
پیش بینی برای یک تا دو روز اینده
شرایط هواشناسی برای ایجاد یخبندان اسمان صاف، اینورژن دمایی و سرعت باد کمتر از 7 کیلومتر در ساعت می باشد. این شرایط اب و هوایی با سیستم پر فشارهمراه می باشند که در فصل زمستان بوجود می اید.اگر اسمان صاف باشد جو نسبتاً ارامی در طی شب بوجود امده و نقشه های هوا در تلویزیون نشان می دهد که ناحیه ای با یک سیستم پرفشار اتفاق افتاده است.انتظار یخبندان در طی یک شب اینده اتفاق خواهد افتاد.
نگهداری از گیاهان در سرما
زمستان سرد و بخصوص سرمازدگی باعث یخ زدن آب در سلولهای گیاهی می شود و به دیواره سلول صدمه می زند. گیاهان یخ زده به راحتی قابل تشخیص اند، رشد آنها دچار نقص شده و برگهایشان پیچ خورده و سیاه می شود. گیاهان همیشه سبز قهوه ای می شوند. سرمازدگی زمانی بدتر می شود که گیاهان در معرض نور خورشید قرار بگیرند زیرا یخ زدگی آنها به سرعت از بین می رود و بدین شکل دیواره سلولهایشان تخریب می شود.
حتی گیاهان پرطاقت و گیان هان سبز نیز در سرمای شدید که خاک یخ می زند آسیب می بینند. زیرا ریشه ها نخواهد توانست آب را بالا بکشند و گیاه از کمبود رطوبت می میرد.
همیشه پیشگیری از درمان بهتر است، پس برای کاهش اثرات مضر سرما برای گیاهان تلاش کنید:
-از نگهداری گیاهان طلایی رنگ یا چند رنگ که معمولاً ظریف و کم طاقت اند، خودداری کنید.
-گیاهانی را انتخاب کنید که در محل زندگی شما تا حد قابل قبولی محکم و پرطاقت باشند.
-از کودهای شیمیایی غنی شده با نیتروژن زیاد استفاده نکنید زیرا باعث می شود گیاه شیره زیادی تولید کند که در اوایل و اواخر سال گیاه را در معرض خطر بیشتری قرار می دهد.
-گونه های گیاهی حساس تر را در جای سرپوشیده قرار دهید. مانند زیر درختان و بوته های بزرگ و در مقابل دیوارها. در طول زمستان به آنها مقداری گرما بدهید و محافظت کنید.
-گیاهان با غنچه یا شاخه های جوان را در قسمتهای شرقی باغچه نکارید.
-شاخه های قدیمی گیاهان حساس را در فصل سرما هرس نکنید تا قسمتهای مرکزی و جوان گیاه از یخ زدگی در امان بمانند. اگر گیاه در پاییز هرس شده باشد احتمال آسیب دیدن آن در سرمازدگی هست.
گیاهان ظریف تر باید در گلدان نگهداری شوند تا در موقع هوای بد بشود آنها را جابجا کرد.
گیاه یخ زده را در معرض نورخورشید قرار ندهید، اگر نمی توان آن را جابجا کرد، رویش را با پلاستیک سیاهی بپوشانید تا نور نبیند.
شاخه های درختان بزرگ و بوته ها را تکان دهید تا برف نشسته روی آن بریزد و وزن برف باغث تغییر شکل شاخه ها نشود.
گیاهان آسیب دیده را با کود مناسب تعذیه کنید و گیاهان جوانتر را حتما در گلخانه نگهداری کنید زیرا بسرعت شروع به جوانه زدن می کنند و در معرض هوای سرد زودتر سرما زده خواهند شد.
اثرات دماهاي پايين بر نيشکر:
سرما و يخبندان اثرات مختلفي بر قلمه هاي نيشکر،بوته هاي جوان و نيشکرهاي بالغ دارد.تنش سرمازدگي(نه يخ زدگي)بر قلمه هال به مدت 3 هفته ،منجر به کاهش تعداد ساقه،ارتفاع ساقه،وزن ساقه و عملکرد شکر مي شود و نتايج اين تنش به راتون ها نيز منتقل مي شود.
مطالعات نشان مي دهند که نيشکرهاي جوان مي توانند دوام درجه حرارت حداقل (min)حدود 1- درجه سانتيگراد را به مدت 4-2ساعت بدون کاهش در تعداد ساقه يا قابليت زيست آنها تحمل مي کنند.هرچند دوام درجه حرارت در c4- تعداد و قابليت زيست ساقه را کاهش ميدهد.تعداد و قابليت زيست ساقه را کاهش مي دهد.
تعدد وقوع سرمازدگي اثرات مضر را از طريق کاهش عملکرد ني وشکرنشان مي دهد.در گياه جوان نيشکر و گياهان جوان مزارع راتون بيشتر جوانه هاي اوليه و ثانويه يا همه آنها که سر از خاک بيرون آورده اند و مريستم يا نقاط رشدي آنها که بالاي سطح زمين است در اثر يخ زدگي از بين خواهند رفت،در اين گياهان رشد مجدد پس از رفع سرما و يخ زدگي،توسط مريستم هاي ثانويه که نقاط رشدي آنها در زير خاک مي باشد و از سرما محافظت شده اند از سرگرفته مي شود.
اثريخ زدگي زودرس بر نيشکرهاي رسيده از لحاظ تکنولوژيکي،توليد و ذخيره ساکارز را کم يا قطع مي کند که ممکن است شکر توليدي را کم کند. يخزدگي شديد همچنين باعث تغيير در کيفيت شربت پس از آسياب مي شود. پس از يخزدگي،ساکارز در شربت خلوص و عملکرد شکرکاهش مي يابد.همچنين مي تواند باعث کاهش وزن ساقه نيشکر در زمان پس از يخزدگي شود.درجه حرارت حدود يخزدگي ابتدا آسيب زدن به برگ ها مي شود.يک يخ زدگي ملايم بين c5/1 -0 براي ساعاتي کوتا ممکن است باعث کلروزنواري يا سوختگي در حاشيه برگها شود.تغييراتي معني دار کيفيت شربت ايجاد نخواهد شد مگر اينکه سرمازدگي بيشتر از چند ساعت طول بکشد.يخ زدگي کمي بيشتر حدود c4- تا 2- براي مدت چند ساعت،قهوه اي شدن وسيع برگ ها و مرگ جوانه انتهايي را بدنبال خواهد داشت.عکس العمل ارقام مختلف دراين خصوص متفاوت مي باشد.
برخي از جوانه هاي جانبي از بين خواهند رفت،نيز يخزدگي ممکن است بافت ميانگره هاي بالايي را ازبين ببرد.تغييرات در کيفيت شربت ممکن است در طول يک يا دو هفته ظاهر شده که با توجه به واريته متفاوت مي باشد.يخزدگي شديدتر از 5- تا 4- درجه سانتي گراد براي ساعاتي کوتاه برگ ها را کاملا قهوه اي کرده و بخشي يا تمام ساقه يخ مي زند.جوانه انتهايي و همه يا تقريبا همه جوانه هاي جانبي از بين خواهند رفت،کاهش کيفيت شربت نيز ممکن است در طول چند روز آغاز شود.يخ زدگي در دماي پايين تر از 6- درجه سانتي گراد تقريبا همه برگ ها،جوانه ها و بافت هاي داخلي ساقه را تا سطح زمين از بين مي برد.گرچه برخي از ساقه ها در مقابل شکسته شدن مقاومت ميکنند ولي ساقه هاي شکسته نيز به چشم مي خورند.کاهش کيفيت شربت ممکن است چند روز پس از وقوع يخ زدگي،يکسري متغييرها نيز ممکن است وجود داشته باشند.از جمله اين متغييرها مدت يخ زدگي مي باشند. درجه حرارت حدود 1- درجه سانتي گراد براي مدت 48 ساعت بصورت مداوم و يکنواخت مي تواند همانند درجه سانتي حرارت 6- درجه سانتي گراد در مدت کوتاه خسارت وارد کند. نيشکرهاي کاملا يخزده ممکن است براي مدت يک تا دو هفته جهت آسيابها غيرقابل پذيرش باشند.تصميم فوري براي برداشت برخي از مزارع جهت جلوگيري از صدمه ديدن ساير مزارع مورد نياز است. هواي مرطوب و گرم پس از يخزدگي نيز ميزان تخريب مزارع را بيشتر مي کند. ميزان خسارت به ساقه ها از طريق خرد کردن ساقه ها و مشاهده بافت هاي يخزده يا بافت هاي خيس شده قابل تخمين است.دماهاي پايين بصورت نرمال در نزديکي سطح زمين مي باشند.بنابراين نيشکرهاي ورس کرده براي يخزدگي مستعدتر هستند. ميزان خسارت يخزدگي در نيشکر بايد مورد توجه قرار گيرند:
1) برآورد و تشخيص يخزدگي نبايد بيشتر از يک هفته پس ازيخزدگي در مزعه آغاز شود.
2) اثرات يخزدگي بصورت تجمعي است،چنانچه تکرار شود،برآورد و تخمين مجدد مورد نياز است.
3) حتي با وجود اينکه محور ساقه مي تواند به رنگ قهوه اي درآيد.جوانه ها و نقاط رشدي گياه مي توانند از آسيب مصون بمانند.
4) اثرات يخزدگي برروي برگها هميشه نمي تواند مشخص کننده وسعت تخريب داخلي ساقه ها باشد.
5) تشخيص يخزدگي بايد حداقل ازچند نقطه داخلي نسبت به خطوط حاشيه مزارع انجام شود.
6) جهت تشخيص يخزدگي ،ساقه ها بايد بصورت طولي برش داده شوند.
با این روش ها مقاومت گياهان به سرما و يخ زدگی را افزایش دهید
|
|
|
|
|
سرما و يخ زدگی همه ساله خسارات قابل توجهی را به اقتصاد وچرخه توليد کشورتحميل می کند. بنابر اين برای مقاومت گياهان به سرماويخ زدگي لازم است تا مديريت تنش رعايت شود. |
تاثیر سرما بالای درختان میوه
مقدمه:
ازآنجاييکه معلوم است نباتات به خصوص ميوه جات وغله جات به نسبت اهميت اقتصادي و حياتي شان درزندگي بشر ارزش به سزاي دارند ونباتات به صورت مستقيم وغير مستقيم مورد استفاده انسان ها قرار ميگيرند که به صورت مستقيم از ميوه ، چوب وغيره استفاده ميشود . وبه صورت غير مستقيم در جلو گيري از آ لودگي هوا تاثيرات شان بالاي اقليم ودرجه حرارت ودر جذب مواد کاربني وتوليد نمودن اوکسيجن هوا نقش اعظمي داشته ميباشند ، بنأ يک حقيقت انکار ناپذيري است که نباتات درحيات بشريت ضامن وتضمين کننده حيات شان است پس بايد انسان تا حد امکان کوشش نمايد که ازنعمت بزرگ الهي استفاده درست نموده ودر حفظ و مراقبت آن تلاش به خرچ دهد تا ازبوجود امدن عوامل ناگوار محيطي که با عث از بين رفتن شان ميشود محفوظ بمانند .
نبا تات از جمله ميوه جات که داروخانه بدن انسان هاي روي زمين محسوب ميشود . گاهي مورد هجوم عوامل ناگوارطبيعي قرار گرفته واين عامل غير مترقبهء طبيعت است که به شکل عوامل فزيکي عمل نموده وباعث ازبين رفتن محصولات ميشود که از آن جمله ميتوان از سرما هاي که در اثر يک جريان قطبي و عبورآن از منطقه پيش مي آيد که موجب تقليل شديد وناگهاني درجه حرارت وسقوط ميزان الحراره به چندين درجه تحت صفر ميشود که موجب خسارات سنگين باغداران ميگردد. و بعضآ سرما هاي که باعث از بين رفتن ميوه جات منطقه بوده ودر يک محدوده بدون اينکه هواي سردي از ساير جاها به منطقه نفوذ کند در اثر تشعشع از خود محل به وجود ميآيد که اين نوع سرما ها برخلاف سرما هاي قطبي بوده ودر شبهاي ساکت و آرام بدون ابر و جريان باد، برف وباران ظاهر ميشود . واگر اين سردي در اواخر زمستان ويا در اوايل بهار بروز کند خطرناک بوده و باعث از بين رفتن ميوجات ميشود
براي پيش گيري از سرماي قطبي چاره اي نداريم بجز اينکه باغ ها ي ميوه خود را با شرايط اقليمي مطا بقت دهيم، اما با سرماي نوع دوم که يک سرماي منطقوي ومحيطي است تا حد جلو گيري و مبارزه نما ييم که از تخريب آن ميوجات خويش را مصِِؤن نگاه کنيم البته ناگفته نبايد گذاشت که تاثير سردي هوا بالاي درختان ميوه يک موضوع بسيار با ارزش در حيات ميوه جات بوده معلومات اندکي را جمع آوري نمودم اميد وارم که مورد پسند شما قرار بگيرد.
شناساي سرما وپيش بيني ان :
تعريف انواع سرما: دو نوع سرما ممکن است در هر منطقه بوجود آيد:
1. سرماي که دراثر هجوم يک جريان سرد قطبي و عبور آن از منطقه پيش مي آيد که موجب تقليل شديد و ناگهاني درجه حرارت و سقوط ميزان الحراره به چندين درجه تحت صفر ميشود . اين جريان اغلبا توأم با نزولات آسماني بوده و خاصيت کلي آنها اين است که همواره ازيک جاه ديگر به منطقه منتقل ونفوذ ميکنند و محلي نميباشند و بيشتر در دوران خواب درختان در دوره غير فعال ، يعني زمستان بروز ميکنند که درختان ميوه سرد سير تا حد زيادي درمقابل آن مقاومت ودوام دارند. البته به ند رت در بعضي سال ها چنين سرما هاي در اوايل فصل بهار و خزان ديده ميشود و موجب خسارات سنگين باغداران ميگردد.
2. سرماي که کاملا منطقه اي بوده و در يک محدوده معين و محيط محدود بدون اينکه هواي سردي از ساير جاها به منطقه نفوذ کند ، دراثر تشعشع در خود محل بوجود ميآيد . اين نوع سرما بر خلاف سرماي اول ، همواره درشب هاي ساکت و آرام بدون ابرو باد و برف وباران ظاهر ميشود ، و اگردر اواخر زمستان يا اوايل بهار بروز کند خطرناک محسوب ميشود .
درمقابل سرماي اول ، که بيشتر درفصل زمستان و گاهي نيز در اوايل بهار به وجود مې آيد ، بشر چاره زيادي نميتواند بکند و بايد سعي کرد ، درختان ومحصولات را باشرايط اقليمي تطبيق داد . ولي باسرماي نوع دوم ميتوان تا حد مبارزه کرد و از گزند آن مصؤن ماند . بدان جهت ابتدا به معرفي وشناسايي سرماي نوع دوم ميپردازيم و سپس از سرماي نوع اول بحث خواهيم کرد.
با توجه به اينکه بروز سرماي تصادفي دربهار ويا خزان بيشتر از حد اقل درجه حرارت درزمستان ، محدوده رشد وتوليد درختان ميوه سرد سير را محدود ميکند ، بايد به اهميت اين قبيل سرما ها توجه بيشتر داشت . مناطق زيادي را ميتوان پيداکرد که علي الرغم داشتن کليه شرايط مساعد ، تنها به علت بروز مکرر هواي سرد بهاري که شگوفه و ميوه هاي جوان را در يک شب از بين ميبرد کشت وپرورش پاره اي ميوجات به صورت تجارتي در سطح بزرگ در آن نقاط ميسر نبوده است . اين محدوديت بيشتر درمورد آن دسته از درختان ميوه است که دربهار زود تر ازساير انواع ، شگوفه ميکنند ، مثل بادام و زرد آلو وتا حد شفتالو ،اين هواي نامساعد که مانع پرورش اين قبيل درختان است ممکن است دريک منطقه به طور گسترده وجود نداشته باشد و يا امکان دارد دريک ناحيه اي که کشت وپرورش اين درختان کاملا مؤفقيت آميز و بي خطر است مکان هاي باشد که به علت شرايط خاص توپوگرافي (پستي وبلندي سطح زمين ) و اقليمي ، بالاخص درمعرض سرماهاي بهاري ديرس يا خزاني زود رس قرار گيرند ونتوان درين نقاط به پرورش اين محصولات بدون ريسک اقدام کرد . بنابر اين نبايد آب وهواي منطقه را خود تصور کرد که در تمام نقاط ميتو ا ن فلان محصول را کشت کرد و يا با لعکس نبايد بخاطر بروز يک سرماي منطقوي غير عادي درمناطق که عملاً سالم بوده و باغهاي چندين ساله از درختان مورد نظر سالها به خوبي وبي خطر درآنجا رشد کرده اند ، از کشت و پرورش درختان ميوه مناسب آن منطقه صرف نظرنمود .
سرماي زود رس خزاني کمتر موجب محدوديت کشت ميوجات سردسير ميشود . اين موضوع براي محصولات مثل انگور و انواع توت بعضي سالها ودربعضي نقاط ممکن است ايجاد محدوديت بکند . بايد دانست که در دنيا کمتر جاي را ميتوان پيدا کرد که به طوراثتثنايي همواره مصؤن از هواي نامساعد بود ه و محصولات آنها درطول سالها هيچ وقت در اثر عوامل طبيعي صدمه نديده باشند . بنا براين از ين حيث زياد نا اميد شد ودر حد ممکن با کمک گرفتن ازدانش وعلم امروزي و شناخت کامل از محيط با دقت به پرورش انواع ميوه جات به صورت موفقيت آميز نايل آمد .
شناساي انواع يخبندان بوسيله دهقانان:تعيين انواع يخبندان هم براي برنامه ريز وهم براي دهقان اهميت به سزاي دارد زيرا روش هاي معمول حفاظت گياهان در پاره از مواقع آنقدر سريع و نا گهاني اتفاق مي افتد که با هيچ معياري نميتوان اين آفت درجه حرارت محيط را تعين نمود.
براي يک برنامه ريز لازم است که انواع يخبندان هاي را که در يک منطقه بوجود مې ايد بشناسد تا در پلان خود که براي کشت محصول، در آن منطقه در نظردارد مؤفق بوده بتواند به موقع وسايل حفاظت از سرما و يخبندانهاي اتفاقي را پيشبيني و با قبول عوامل خطر مانند يخبندان هاي جبهه اي اقدام به زراعت نمايد.
همان طوريکه دهقان بايد با تشخيص نوع يخبندان در شب هاي سرد وخطران بتواند روشهاي حفاظت از سرما را به کار گرفته و از خسارت آن جلوگيري ميکند.
يخبندان جبهه اي را مي توان به وسيله باد شديد سرد تشخيص كند که در اين حالت ممکن است آسمان ابري يا نيمه ابري باشد . به هر حال باد شديد باعث نزول سريع درجه حرارت و محيط ميشود.
بعد ازيک يخبندان جبهه اي معمولاً قسمت هاي از درختان آسيب ميبينند که همانند ګياهان هرزه درزير سايه درختان قرارگرفته اند وبرگ هاي که درداخل حجم درخت يا دريک ارتفاع مناسب از درخت قراردارند مصؤن از خسارت ميباشند.
يخبندان تشعشعي همانطوريکه قبلا نيز اشاره شد در مواقع که آسمان صاف، بدون ابر و آرام است بيشتر اتفاق مي افتد در چنين شرايطي امکان دارد که بعضي مواقع نسيم هاي ملايم ، ضعيف و کم دوام نيز وجود داشته باشد.
از نظر يک ديده بان آموزش ديده، وضعيت روشنايي نسبي در شب و فقدان ا رزش و حرکت ملايم شاخ و برگها از خصوصيات يخبندان تشعشعي است يخبندان تشعشعي معمولا بعد از عبور جبهه به وقوع مي پيوندد و بايد آنرا ز يخبندان جبهه اي تفکيک نمود.
در يخبندان جبهه اي خسارت سرما زده گي موقع اتفاق مي افتد که جبهه در حال عبور است و درجه حرارت هواي جبهه اي ممکن است آنقدر سرد نباشد که خطر را ايجاد نمايد. ولي هواي جبهه اي ميتواند درجه حرارت نبات و خاک را آنقدر سريع و به ميزان تقليل دهد که تشعشع شبانه در شب بعد به حد نهايي رسيده و باعث يخبندان گردد. عبور جبهه اي سرد در روز ابري نيز خطرناک ميباشد زيرا هواي ايجاد شده در روز از تابش انرژي افتاب کاسته و مانع از گرم شدن خاک و نبات ميشود. اين امر اگر با عبور جبهه اي سرد کننده در طول روز و تشعشع هاي منفي در شب هاي قبل يا بعد توأم شود خطر سرما زدگي و خسارت يخبندان تقريبا زياد ميباشد. در يخبندانهاي تشعشعي تنها تنه درخت که مستقيما در معرض قرار دارند خساره ميبينند و برگها و شاخه هاي داخلي درختان تقريبا از تشعشع هاي از دست رفته تقريبا در امان نيستند. البته در شرايط يخبندان تشعشعي شديد ممکن است حتي تنه از درختان که در معرض تشعشع نيستند نيز خساره بينند.
با وجود يخبندانهاي تشعشعي و جبهه اي که فوقا به آن اشاره شد ممکن است يخبندان هاي مختلط نيز وجود داشته باشند که به گياهان خسارت وارد مي سازند. به اين ترتيب که يخبندان هاي تشعشي حرارت خاک و گياه را کاهش داده و يخبندان هاي جبهه اي حتي در شرايط آسمان ابري اثرات منفي و سرما زدگي شديد خودرا داشته باشد.
سرماي بهاري وارتباط آن با مسايل بيولوژيکي درختان ميوهپرورش دهنده درختان ميوه سرد سير نه تنها از چگونگي وکيفيت توليد سرما درمنطقه اطلاعات كافي داشته باشد،بلکه لازم است درجه بروز خطر،براي انواع درختان ميوه مورد پرورش خودرانيز بداند واقتصادي ترين ومؤثرترين طرق مبارزه وجلو گيري از صدمات وخسارات وارده از اين بلاي طبيعي ياد بگيرد ودر وقت ضرورت بكار برد.تا حد درباره چگونگي بروز سرماي محلي توضيحات داده شده،ودرمورد درجه بروز خطر براي انواع درختان مثمر سردسيري،اززمان ظهور غنچه وبازشدن گل تاتوليد ميوه ومراحل اوليه رشدوطروق تشخيص درجه خساره وارده ازسرما به شگوفه هاوعکس العمل هرنوع درخت ميوه درمقابل آن وميزان محصول صحبت خواهيم کرد.
درجه بروز خطرميزان مقاومت ودوام انساج مختلف نباتات برحسب نوع وجنس آنها و حالات مختلف تکامل ، درزمان هاي مختلف رويش ، درمقابل حرارت هاي پايين متفاوت است درمورد دلايل فزيالوژيکي و فزيکي اين اختلاف مقاومت در درون گياه ، بعدأ درقسمت خود به تفصيل بيشتر بحث خواهيم کرد. درينجا ارتباط موضوع را بااعضاي توليد کننده درختان مثمر يعني غنچه وگل و ميوه ئ تازه تشکيل يافته مورد بررسي قرار خواهيم داد ولي لازم است قبل از اينکه حدود تقريبي مقاومت گل وميوه هر نوع را بيان کنيم به نکات زير توجه کنيد :
چند نکته مهم
• درجه حرارت خطرناک تعين شده براي مراحل مختلف گل وميوه جوان درنقاط مختلف دنيا يکسان نيست ودر بعضي موارد حتي تا 5پنج درجه باهم ديگراختلاف دارند (به علت يکسان نبودن شرايط محيط وخواص ذاتي ارقام مورد مطالعه).
• وضع هر گل يا هردسته گل ، با توجه موقعيت خاص قرارگرفتن آن درروي درخت ، از نظر ميزان تشعشع ودرجه حرارت فردي ، باديگراختلاف دارد .
• چندين گل که ظاهراً به همديگر شبيه و درشرايط مشابه قرار دارند ، ممکن است به علت اختلاف درشرايط دروني مقاومت هاي متفاوتي نسبت به يک درجه حرارت نشان دهند .
• ارقام مختلف درختان از يک نوع ، مقاومت هاي متفاوتي دارند.
از ملاحظات فوق نتيجه ميگيريم که درشرايط باغ و محيط هاي آزاد نميتوان دقيقأ تعين کرد که تا چه حد شگوفه هاي ميوه ميتواند سرد تراز محيط مجاور باشند و درچند درجه ذرات يخ در انساج نباتي تشکيل وظاهر ميشود ودرچند درجه حرارت صدمه وارد ميگردد؟ يا يک يخبندان غير منتظره و آني بعد از سرد شدن شگوفه ها در اثر تشعشع ، تا چه حد ميتواند زيان بخش باشد و تا چه حدود شگوفه ها قادر هستند خودرا با آن تطبيق دهند ؟
با تو جه به عوامل گوناگون ، مطمين تر آنست که فرض کنيم درجه حرارت خطرناکي که باروش هاي علمي لابراتواري تعين ميشود ، تا حد ي کمتر از حرارتي است که معمولا درطبيعت اتفاق ميافتد و با ميزان الحراره هاي معمولي منصوبه درهواي آ زاد نشان داده ميشود .
زيرا همواره اختلاف بين حرارت هواي محيط وهواي مجاور نبات در شرايط طبيعي بخاطر تشعشع اضافي وجود دارد که علاوه بر تشعشع سطح زمين ، به وسيله خود شگوفه ها درمحيط هر درخت ايجاد ميشود . به همين جهت تعين دقيق حرارت خطرناک که موجب از بين رفت انساج گل يا ميوه هاي جوان ميشود ، درتمام سطح باغ وبراي همه درختان عملا غيرميسراست . بااين حال نتيجه مطالعات محقيقين ثابت کرده است که ميتوان از روي درجه توليد شبنم و ارتباط آن با بروز سرما ميزان صدمه وارده را تخمين کرد . طبق گزارش آنان ، بااندازه گيري درجه حرارت هوا درلحظه ظهور شبنم ميتوان به ميزان خسارت و صدمه وارده ازسرما تاحدي پي برد . زيرا واضح است هر قدر شبنم در حرارت هاي بالاتري توليد شود ، صدمه وارده از سرما کمتر خواهد بود و بالعکس به طورمثال اگر شبنم در حرارت صفر درجه تشکيل شود ، مقدار خسارت خيلي کمتر خواهد بود ، تا زمانيکه تشکيل شبنم در 2تا 3 درجه تحت صفر اتفاق افتاده باشد. و اين اختلاف ، ناشي از ميزان فيصد ي رطوبت هوا ميباشد .
فزيولوژي خساره يخبندان:
بطورکلي گياهان به دوطريق زير ازيخبندان آسيب مي بينند:
الف: يخبندان درون حجره
اين نوع يخبندان خيلي سريع بوده ومنجربه تشکيل کريستل هاي يخ درداخل حجرات ميگردد.براي تشکيل يخ درداخل حجره گياهي ،حرارت حجره بايد در ظرف مدتي کمترازنيم ساعت از صفربه 10درجه سانتي گريد تنزل نمايد.
اين نوع يخبندان کمتر درطبيعت اتفاق مي افتد دليل آن اينست که شدت سرماي هوا واختلاف کاهش ناگهاني جبه بايد آنقدرزياد باشد که بتواند درمدت نيم ساعت منجر به سرد شدن ناگهاني عضوېنبات وانجمادحجرات نبات شود.اين يخبندان رادرشرايط آزمايشگاهي مي توان ايجاد نمود،ولي ذکراين نکته حايزاهميت است که اگرعمل سردشدن وانجماد حجرات باسرعت کافي انجام شود حجرات يخ بسته وبصورت متبلور درميآيند بعد از ذوب شدن دوباره به زندگي خود ادامه دهند.
عمليات آزمايشگاهي با چنين يخ بندان سريع بر روي مگس خانگي وپوستهاي پيازبا فرو بردن آنها درنايتروجن مايع انجام وموارد ذکر شده فوق به اثبات رسيده است.
الف : يخبندان بيرون حجره درطبيعت اختلاف درجه حرارت حجره نباتي وهوا پيش ازچند درجه نمي باشد .بنا برين يخبندان هميشه درفضاهاي بين حجروي به وقوع پيوسته و معمولا رطوبت بين حجره را منجمد ميکند در چنين حالت اختلاف فشار بين آب حجره، آب واکيول وفضاهاي بين حجره به وجود ميآيد که باعث ميشود رطوبت واکيول ها حرکت نموده و بر وي کرستال هاي يخ فضاي بين حجروي جذب شوند ( متراکم گردد) اين فعل و انفعالات تا طلوع افتاب ادامه يافته و گاهي منتج به تشکيل يخ هاي که چندين برابر اندازه حجرات هستند ميشود .و اين عمل باعث پارگي حجرات و فساد آنها ميگردد درين نوع يخ زده گي پروتو پلازم توانايي خود را از دست داده ونميتواند مجدأ رطوبت ازدست داده را جذب نمايد به همين دليل است که اندام هاي خساره ديده (يخ زده ) نسبت به اندام هاي سالم نبات وزن مخصوص کمتري دارند، زيرا تبادل رطوبت درنباتات ازطريق مجراها انجام ميشود وبه همين دليل است که ميوه هاي يخ زده مرکبات موقع خوردن خشک ميباشد ، شايد اين فرضيه درست باشد که محقيقين اصلاح نباتات در جهت يافتن ارقام متحمل به خشکي موفق به پيدانمودن ارقام مقاوم به سرمازده گي نيز شدند .
علايم خساره وصدمه سرمازدگي:
تعين ميزان يا فيصدي خساراه ناشي از سرما ، تنها با ملاحظه درجه ميزان الحراره ميسر نميباشد. براي اطلاع دقيق ترضرورت دارد نزديکهاي ظهر بعد از شب که سرما بروز کرده چندين شگوفه را به طوراتفاقي چيده و به دقت تخمدان آنهارا معاينه کرد . ممکن است گل برگها به ظاهر سالم باشند ، ولي فريب آنرا نبايد خورد بلکه بايد با معاينه تخمدان و دانه هاي درون آن ، که لطيف تر از انساج احاطه کننده آنها (گل برگ ها ) هستند ، از سلامت ياصدمه ديدن آ نها اطلاع حاصل کرد زيرا تخمدان ودانه هاي بذر معمولا حساس ترين اعضا در مقابل سرما ميباشند . اگر اينها سالم وسبز بودند دراکثر موارد گل ، سالم تلقي ميشود . ولي مثل اکثر اتفاقات طبيعي اين قانون نيز عموميت ندارند بلکه درختان ميوه اي دانه دار سيب وناك درختان هسته دار آلو و زردآلو و... در ارتباط با اين موضوع حالات مختلفي نشان ميدهند .
طبق نظر دانشمندان ، اگر سرما بعد عمل تلقيح پيش آيد ، گل هاي سيب مقدار ازصدمه وارده ازسرما به بذر هارا تحمل ميکند و ميوه به رشد خود ادامه ميدهد به طورکه بعضي انواع سيب قادر اند ميوه هاي بدون دانه خودرا ، تا مرحله رسيدن وقابل خوردن پرورش دهند ، هرچند اين قبيل ميوه ها کوچکتر ازاندازه معمولي ميباشند ناك ازين حيث ازسيب نيز بهتر عمل ميکنند و ميوه اکثر انواع ناك ، علي الرغم از بين رفتن بذور ، قادر هستند به رشد خود ادامه داده و به طور طبيعي برسند . درسيب اگر خسارات به انساج مجاور حفره بذر ها وارد شود ، ميوه به مرحله کمال نخواهد رسيد ، ولې ناك که چنين صدمه ديده باشند شکل غيرعادي پيدامي کنند يعني اطراف دم ، ضخيم شده وبه اصطلاح دم کوتاه ميشوند . ولي به مرحله کامل رسيدن ميرسند . صدمه وارده به ناك موقع مو ثر خواهد بوده که سرما به انساج گوشتي اطراف تخمدان به ضخامت اکثري اثر کرده باشند و به عبارت ديگر ، روي انساج ناشي از تلقيح ثانوي نيز اثر گذاشته باشد .
درانواع هسته دار ها ممکن است ميوه صدمه وارده را ابتدا نشان ندهد ولي درآخرين مراحل بزرګ شدن ، قبل از رسيد ن ، ميوه صدمه ديده ازسرما معمولامقدارصمغ ترشح ميکند و حالت طبيعي خودرا ازدست ميدهد اين نوع ميوه ها ممکن است به مرحله پخته شدن نرسند و قبل از آن بريزند . اگر صدمه سرما زياد تر باشد ، آنها بعد ازگل کردن درمدت کمي ريخته ميشود . درميوه جات هسته دار ، اگرقاعده اله تانث صدمه ببيند خيلي به ندرت ممکن است ميوه بتواند به نموي خود تا حدرسيدن ادامه دهد . طبق نظريه بژوهشگران درآلو ، بعد از تلقيح وشروع اولين مراحل تشکيل ميوه حساس ترين قسمت را آوند هاي اطراف تخمدان تشکيل ميدهند بعد به ترتيب جدار هاي تخمدان ، قسمت گوشتي ميوه ، د رمراحل بعدي حساسيت به سرما قرارگرفته اند .
قبل از پايان دادن اين بحث ، ياد آوري اين نکته لازم است که دربعضي موارد صدمه وارد ه به محصول لازم نيست که حتما با نزول درجه ميزان الحراره به تحت صفر همرا ه باشد .
بلکه آزمايشات علمي و تجربي نشان داده است که دربعضي ميوه جات ، پايين امدن درجه حرارت براي چند روز حتي درحرارت هاي کم بالاي صفر درموقع گل موجب وارد آمدن صدمه به محصول شده است و اين صدمه ناشي از صدمه مستقيم به گل و اعضاي جنسي ان نيست ، بلکه به علت عدم رشد ساختمان توليد كننده ګرده به سرعت لازم در اثر سردي محيط ميباشد . اين تاخير در رشد موجب ميشود که پالن و گميت هاي آن در داخل آن نتواند به موقع وارد تخمدان شوند و خودرا به تخمک يا اويول برسانند، درنتيجه گل ، قبل از انجام تلقيح در اثر بوجو د آمدن طبقه جدا کننده درزير تخمدان يا دم گل ، بريزد همچنين هواي سرد باراني وبادي حتي اگربه تحت صفر نرسد ، دردرختان که تلقيح آنها به وسيله زنبور بايد انجام گيرد ، موجب عدم فعاليت حشرات يا تقليل آن شده و ازين راه سبب عدم تشکيل ميوه و کمي يا فقدان محصول خواهد شد . بنابرين نتيجه ميگيريم که تنها هواي تحت صفر نيست که موجب خسارت و کمي محصول ميشو د ، بلکه هواي سرد بالاي صفر نيز درين ضايعه ميتوانند به طريق ديگري موثر باشد .
درتائيد اين مطلب به مطالعات که درين زمينه از طرف دانشمندان به عمل آمده اشاره ميکنيم :
ا گر پالن ، دروقت نمو درمعرض حرارت كمتراز2C درجه سانتي گريد به مدت شش ساعت قرار گيرد رشد آن مختل خواهد شد ازطرف ديگر آزمايش روي سيب نشان داده است اگردانه هاي پالن را تا (-3) درجه سرد کند ، تعداد دانه هاي که نمو ميکنند به 33% تقليل خواهد يافت درصورتي که همان گرده درحرارت معمولي ، رشد 84% داشته است ووقتي که گرده يک رقم سيب را به مدت 30دقيقه درحرارت (-8) درجه سانتي گريد قراردهند ، فقط 25% آنها رشد خواهند کرد ، درصورتيکه پالن هاي سرمانزند همان رقم ، 67% سبز ميشوند.
روشهاي حفاظت نباتات ازسرماويخبندان:در مناطقي که سرماي بهاري در اکثر سالها موجب از بين رفتن يا خسارات محصول ميشود با غداران به طريق مختلف براي کم کردن اثر سرما يا جلو گيري از خساره وارده تلاش مي کنند .
موضوع سرما زدگي درختان ميوه زود گل مانند بادام ،زردآلو ،آلو و شفتالو در بعضي از نقاط حتي سيب و ناك وچارمغ از اهميت خاصي برخوردار است،بطوريکه در بعضي از سالها بروز يا عدم بروز سرما اين قبيل محصولات بخصوص بادام و زردآلو اثر مي گذارد.
آزمايشات و تحقيقات زيادي در زمينه جلوگيري از سرما زدګي محصولات در دنيا صورت گرفته که مؤثر بودن آنها از نظر علمي و عملي محرز بوده ولي اجراي آنها در باغات کشور بستگي به شرايط اقتصادي ووضع توليد هر منطقه دارد.
ذيلاً به روش مهم جلوگيري از خطر سرمازدگي يا کم نمودن خسارات آن اشاره و انتخاب هر يک از روشهاي موثررا به امکا نات مالي دهقا نان حمايت هاي وزارت زراعت ازپروژه هاي مقا بله با سرماواگذارمي کنيم .
قابل ذکراست که حفاظت گيا هان ازسرمازدگي عمدتا به دوبخش عمده تقسيم مي شوند .
روشهاي حفاظت فعال ۱-
۲-روشها ي حفاظت غيرفعال
سيستم هاي روشها ي فعال نيا زبه خرچ نسبتاً زياد وزمان محدودي است
ولي روشهاي غير فعال ميتوان درفرصت هاي مناسب بااقدامات ازقبيل تغذيه مناسب وپاشيدن موادوانتخاب ارقام مقاوم وغيره نسبت به حفاظت محصول ونباتات اقدام نمود .
1. روش هاي فعال حفاظت
2. حفاظت بوسيله بخاري
3. حفاظت بوسيله بخاري متداولترين وقديمي ترين روشي است که درباغهايميوه مورداستفاده قرارميگيرد.
اساس آن تامين انرژي حرارتي بوسيله سوخت مواد درطول يک شب سردمي باشد براساس ازمايشات انجام شده تشعشع هاي حرارتي ازدست رفته درچنين شبهاي مساوي 9 فيصد الئ 18 فيصد کالري درسانتي مترمربع دردقيقه است
چون راندمان گرم شدن پائين است بااساني 3 فيصد تا 5 فيصد کا لري درهر سانتي متر مربع درهردقيقه تآمين شود تادرجه حرارت عليرغم تشعشع هاي خالص حرارتي ازدست رفته باغ ميوه ثابت بماند .
علت پائين بودن راندمان حرارتي اين است که مقدارزيادي ازتشعشع حرارتي بدون اينکه حتي به درختان برسد درفضا ازبين ميرود گرچه هواي گرم شده بدليل سبکتر بودن بطرق بالا صعودمي کند ولي حرارتي که به بالاترازسطح محوطه گياه ميرودحرارت ازدست رفته محسوب مي شود حرارت ازبخاري به درخت ازطريق تشعشع وجابجائي هواانجام مي شود، تشعشع حرارتي بوسيله اندامهاي نبات که مستقيما درميدان عمل بخاري ها قراردارندجزب مي شود .
نتيجه گيري و سفارشات:-همه ميداند که نباتات بخصوص ميوه جات براي انسان ها اهميت حياتي داشته و سرشار از ويتامين ها و ديگر مواد ميباشد که ضروريات وجود انسان ها را براورده ساخته و ضامن سلامتي شان ميباشد، پس حفاظت و مراقبت از بعضې عوامل محيطي که باعث از بين بردن ميوجات ميگردد يک امر لازمي است.
از جمله عوامل محدود کننده ميوه جات يکي هم سرما هاي بهاري و خزاني ميباشد که در اکثر سال ها موجب از بين بردن يا خسارات ميوجات ميشود.
آزمايشات و تحقيقات زيادي در زمينه جلوگيري از سرما زده گي محصولات در دنيا صورت گرفته که مؤثر بودن آنها از نظر علمي و عملي محرز بوده و اجراي آنها در باغ ها بستگي به شرايط اقتصادي و وضع توليد منطقه دارد.
ذيلاً به چند روش مهم جلوگيري از سرما زده گي يا کم نمودن خسارات آن اشاره مينمائيم، البته جهت جلوگيري سرما ها از دو روش استفاده کرده ميتوانيم.
روشهاي حفاظت فعال است: که اين روش مخارج زياد ايجاب ميکند.
روش هاي حفاظت غير فعال است: درين روش ميتوان با بلند بردن مقاومت نباتات و استعمال مواد بالاي آنها که يک روش وقايوي است اقدام کرد.
طريقه هاي را که براي جلوگيري از سرماي غير مترقبه جلوگيري مينمايد قرار ذيل تشريح ميکنيم.
حفاظت به وسيله بخاري که متداول ترين و قديمي ترين روش است که در باغ هاي ميوه مورد استفاده قرار ميگيرد، البته اين روش غير اقتصادي بوده فعلاً مورد استفاده قرار نميگيرد.
انتخاب باغ هاي ميوه در جا هاي که هوا جريان داشته باشد.
فرش نمودن پلاستيک سياه در روي باغ که در طول روز انرژي آفتاب را جذب نموده و از طرف شب حرارت را بلند ميبرد.
آتش نمو دن تاير موتر و ديگر مواد سوخت که باعث با لا بردن هواي سرد از سطح باغ ميشود، البته دود از طرف شمال صورت گيرد تا به تمام باغ انتشار پيدا کرده بتواند.
فرش نمودن ريگ درشت به سطح باغ که در طول روز حرارت را جذب نموده و در شب حرارت سطح باغ را بلند برده و هواي سرد را از سطح باغ بلند ميکند
منابع .مآخذ.
1. معيني- مهندس عباس علي - مباني علمي پرورش درختان ميوه.ص ص107،108،109
2. رسولزادگان - يوسف - ميوه کاري در مناطق معتدله.ص ص545،546
3. فاوست - ميکلوس - فزيولوژي درختان ميوه مناطق معتدله.ص ص454،455،456
4. قاسمي - تراب امير - سرما زده گي گيا هان.ص ص 17،18،19
5. فرانسيس - چارليز - کشاورزي پايدار در مناطق معتدله. ص ص756،757
6. سالارديني، داکتر علي اکبر - حاصل خيزي خاک.ص ص137،138
قشقایی ائلینی دریا قیاس ائد چالخانیر چالخانیر برقرار اولور

فهرست مطالب:
پیشینهی تاریخی ایل قشقایی/ منشأ نام ایل قشقایی/ تاریخ مهاجرت ترکان به فلات ایران/ تاریخ مهاجرت ترکان قشقایی به فارس/ اسناد موجود تاریخی/ موقعیت جغرافیایی و جمعیت/ حدود قلمرو ایل بزرگ قشقایی/ جمعیت عشایر کوچندهی ایران/ زبان و فرهنگ ایل بزرگ قشقایی/ زبان ترکی/ جمعیت مردم ترک زبان در دنیا/ سواد آموزی در عشایر/ تأسیس مدارس عشایری در فارس/ پوشاک مردم قشقایی/ تزیینات و زیورآلات زنان در ایل قشقایی/ پوشاک مردان قشقاییی/ موسیقی در ایل قشقایی_ ...
تهیه و تدوین: نوروز دُرداری (فولادی) ghashghaietribe.persianblog.ir
ناشر: انتشارات قشقایی shiraznashr.blogfa.com
۷۷۲ صفحه قیمت: ۶۵۰۰ تومان
برای تهیه آن میتوانید با شماره تلفن های ۲۲۴۵۴۰۱-۰۷۱۱و ۰۹۱۷۱۱۱۸۵۸۰ تماس بگیرند. امکان ارسال کتاب به تمام نقاط ایران وجود دارد. نشانی شیراز، خیابان پیروزی (نمازی سابق). جنب بانک تجارت.
مقدمه ی کتاب در این آدرس موجود است.
کتابلاری کی قشقایونینگ فرهنگ،ادبیاتی و...ایچون چاپا ائتیردمیشلر
شوری پس از خشکی از مهم ترین و متداول ترین تنش های محیطی در سطح جهان و از جمله ایران است ( 10 ). بخش قابل توجهی
از اکوسیستم های طبیعی و زراعی دنیا تحت تنش شوری قراردارد در ایران معادل 25 درصد مساحت زمین های کشور دارای شوری
است ( 12 ). امروزه به علت استفاده بی رویه از منابع طبیعی و به کارگیری تکنولوژ ی های نامناسب در تولید محصولات کشاورزی به
ویژه در رابطه با آب آبیاری بخش قابل توجهی از زمی ن های کشاورزی درمناطق خشک با پدیده شوری مواجه هستند . ( 23 ). انتخاب
و جدا کردن ژنوتیپهای متحمل به تنش به دو روش م ستقیم / سنجش عملکرد / و غیر مستقیم / بر اساس صفات مورفولوژیک و
فیزیولوژیک که با تحمل تنش همبستگی دارند /انجام می شود ( 30 ). یکی از راه های مقابله با شوری انتخاب و پیدا کردن ارقام
مقاوم به شوری از طریق به کار گرفتن روشهای اصلاحی است اگر چه امکان انتخاب و اصلا ح گونه های مقاوم به شوری در یک
. ( سری از گیاهان علوفه ای مناطق معتدل وجود دارد ( 6
شوری درایران بالغ بر 25 میلیون هکتار تخمین زده شده است و اهمیت بهره گیری از این اراضی درتولید محصول ایجاب می کند
تا علاوه بر اقداماتی که در زمینه معرفی ارقام متحمل یا مقاوم ب ه شوری صورت گرفته فعالیتهای جهت دار و کامل تری درزمینه
. ( اصلاح ارقام برای این قبیل اراضی انجام شود( 2
تحمل تنش در یک ژنوتیپ گیاهی به برخىاز ویژگیهای فیزیولوژیک و مورفولوژیک آن بستگی دارد . امروزه تلاش برای یافتن
معیارهایی که بتوان از آنها به طور مؤثری در ان تخاب ژنوتیپهای متحمل یا مقاوم بهره جست ادامه دارد . با این حال احتمال اینکه
ژنهای تحمل به تنش در یک گیاه متمرکز و توسط روشهای فیزیولوژیک شناخته شود بسیار کم است، بنابراین پایداری و ثبات
عملکرد و اجزای آن تحت شرایط تنش همچنان از جمله شاخصهای اصلی انتخاب برا ی یافتن ژنوتیپ های متحمل به تنش در
بسیاری از برنامه های اصلاحی به شمار می رود( 5). برای تعیین تحمل نسبی در ژنوتی پ های مورد بررسی از شاخ ص های حساسیت
NaCl از رشد گیاهچه های جو جلوگیری م ی کند ولی kCl و NaCl فیشر و مائورر استفاده می شود ( 17 ). افزایش میزان نمک SSI
مانع از رشد گیاهچ ه های جو م ی گردد ( 28 ). همبستگی بین تحمل به شوری درمرحله جوانه زنی وگیاهچه ای در جو kCl بیشتر از
مشاهده نشده است ( 24 ). افزایش شوری باعث افزایش جذب سدیم و کاهش جذب پتاسیم و جذب اندک کلسیم شده، شوری
را در برگ های جو کاهش م یدهد ( 27 ). جو در بین غلات چه در مرحله جوان یزنی و چه در مرحله بعدی رشد Na / K نسبت
مقاوم ترین گیاه نسبت به شوری است ( 4) اگرچه جوگیاهی بسیار متحمل به شوری است ( 28 ) اما شوری رشدگیاه را کند می کند
علاوه براین تعداد معدودی اثرات ظاهری نظیر تیره شدن رنگ برگ و افزایش حالت آبدار ی گیاه صرفاً در بعضی از گیاهان دیده می
شود ( 3) شوری تعداد برگهای روی ساقه اصلی و تعداد سنبلچ ه ها را در سنبله به طور معنی درای محدود و تعداد پنجه ها را شدیداً
کاهش می دهد. جو را در توده شن ساحلی کشت دادند که با آب دریا آبیاری م ی گردید مشاهده شد که عملکرد دانه به کمتر ازنصف
کاهش یافت ( 15 ).گزارش شده که در اثر استفاده از آب شور سبز شدن گیاهچ ه ها تحت تاثیر قرار گرفته است . همچنین درصد
. ( جوانه زنی و سبز شدن بذور جو به طور معنی داری کاهش یافت و درصد ظهور گیاهچه نیز به طور معن یداری به تاخیر افتاد( 8
شوری با اثر بر مریستم انتهائی ساقه جو و تعدادبرگ و تعداد سنبلچه در سنبله باعث کاهش عملکرد م ی شود ( 22 ). شوری باعث
کاهش عملکرد دانه جو از طریق کاهش تعداد پنجه بارور، تعداد سنبله ، تعداد دانه در سنبله و وزن دانه می گردد. همچنین شوری
طول دوره پر شدن دانه، ارتفاع و تعداد برگ به ویژه در ارقام حساس را کاهش م یدهد که کاهش عملکرد نتیجه کاهش تعداد
سنبله در هر گیاه و وزن دانه در هر سنبله بود ( 1).شوری قبل از توسعه سنبلچ ه های جو ، تعداد دانه در سنبله و تعداد پنجه بارور را
در شرایط شوری در گیاه جو و درخت پرتغال مشاهده شد( 13 ). ارتفاع و LAR و NAR، RGR کاهش داد( 19 ). همچنین کاهش
تعداد پنجه به طور معن ی داری با افزایش شوری آب آبیاری کاهش یافت . عملکرد دانه و عملکرد بیولوژیکی جوهای آبیاری شده با
16 به طور معنی داری کاهش یافت .کاهش در تعداد سنبله درهر گیاه و وزن دانه نیز معنی دار بو د شوری باعث / هدایت الکتریکی 7
کاهش عملکرد دانه از طریق کاهش تعداد پنجه بارور، تعداد سنبله، تعداد دانه در سنبله و وزن دانه می گردد. شوری ارتفاع بوته به
.( ویژه در ارقام حساس را کاهش م ی دهد که کاهش عملکرد نتیجه کاهش تعداد سنبله در هر گیاه و وزن دانه در هر سنبله بود ( 9
درمجموع شوری قبل از توسعه سنبلچ ه ها تعداد دانه در سنبل ه ها و پنج ه های بارور را کاهش داد . شوری تعداد پنجه را در انواع شش
ردیفه کمتر از تعداد پنجه در جوهای دو ردیفه کاهش داد . با افزایش شوری، تعداد دانه در سنبله ، وزن هزار دانه و به طور کلی
کارایی عملکرد دانه کاهش م ی یابد ( 26 ). چند معیار برای گزینش ژنوتیپ ها بر اساس عملکرد آنها در شرایط نرمال وتنش دار
نشان دهنده تحمل SSI از آن جمله است و گزارش شده که مقادیر پایی ن تر SSI پیشنهاد شده است که شاخص حساسیت به تنش
،( بالا به تنش می باشد ( 16 ). گزارشاتی حاکی بر رابطه میزان رطوب ت نسبی بافت و میزان تحمل گیاه درمقابل تنش وجود دارد ( 7
تحقیق حاضر باهدف بررسی تاثیر تنش شوری بر روی برخی از صفات مورفولوژیک و فیزیولوژیک ، عملکرد و اجزای عملکرد و
مقایسه شاخص حساسیت به تنش و انتخاب ژنوتی پهاى متحمل جو اجرا شده است.
مواد و رو شها
1383 به منظور تاثیر تنش شوری بر خصوصیات زراعی تعدادی از ژنوتیپ های جو در ایستگاه - این آزم ایش در سال زراعی 84
تحقیقات کشاورزی گرگان و مزرعه شوری مرکز تحقیقات کشاورزی گرگان اجرا شد .دراین آزمایش تعداد 10 لاین جو مورد ارزیابی
قرار گرفتند ( جدول 1) . در این بررسی ژنوتیپ های مورد نظر دردو محیط بدون شوری و تنش شوری در قالب طرح بلوکهای
با 4 تکرار کشت گردید . هر ژنوتیپ در 6 خط 6 متری که فاصله خطوط 20 سانتیمتر بودکشت شد . بر ( RCBD) کامل تصادفی
اساس نتایج تجزیه خاک 75 کیلو گرم فسفات به صورت فسفات دو آمونیوم و معادل 80 کیلوگر م ازت از منبع اوره (که نیمی از
ان در زمان کشت ومابقى به صورت سرک مصرف شد ) درهر هکتار مصرف شد . قبل از کاشت بذرها با استفاده از قارچ کش
کاربوکسی تیرام ضد عفونی شدند.
جدول 1: مشخصات ژنوتیپ های مورد استفاده
1- WW319*GIZA119/MAF/02/VOLLA
2- ARIZONA 5908/ATHS//L640/3/1640/L527
3- ICB116218
4- ICB118516
5- ICB116138
6- MARTIN
7- M126/CM67//AS/PRO/3/ALANDA
8- LOCAL BARIEY
9- SAHRA ( L.B.IRAN )
10- ER/Apm ( B-79-1) / Wi229 / Wi2269
طی دوره رویش گیاهان ، مراقبت های لازم زراعی صورت گرفت .صفات مختلفی از جمله : تعداد کل پنجه درگیاه ، تعداد پنجه
بارور، تعداد سنبله در متر مربع، ارتفاع بوته، نسبت سدیم به پتاسیم، طول سنبله، تعداد سنبلچه در سنبله، تعداد دانه در سنبله،
سطح برگ، ضریب پایداری غشاء، محتوی نسبی کمتر آب برگ، وزن هزار دانه، عملکرد بیولوژیکی، عملکرد دانه و شاخص برداشت
0 متر از ابتدا و انتهای هر کرت حذف شدند . به منظور تعیین عملکرد / اندازه گیری شدند . در هنگام برداشت بوته های کناری و 5
اقتصادی و بیولوژیک ژنوتی پ ها، بوت ه های موجود در سطح مورد نظر برای برداشت نهایی، به طور کامل از روی خاک بریده شدند .
بوته های برداشت شده برای تعیی ن عملکرد بیولوژیک توزین شدند . سپس بوت ه ها به وسیله کمباین برداشت آزمایشات کوبیده شدند،
با استفاده از نسبت وزن دانه به عملکرد دانه + عملکرد کاه و کلش محاسبه شد . بر این اساس میزان رطوبت (HI) شاخص برداشت
بعد از کامل شدن برگ پرچم از رابطه (RWC) نسبی
RWC = ووززنن خخششکک –– ووززنن اترش ب اع ×۱۰۰
محاسبه شد ( 18 ) ضریب پایداری غشاء
صفتی است که تحمل ژنوتیپ یا بافت گیاهی را نسبت به تن ش های مختلف از (CMS)
جمله شوری نشان می دهد بنابراین تعداد ده دیسک از برگ ها تهیه و در شیشه های حاوی 20 میلی لیتر آب مقطر به مدت 24
موجود K و Na ساعت نگهداری شدند . سپس هدایت الکتریکی محلول حاوی املاح خارج شده از بافت گیاه اندازه گیری شد نسبت
توسط فرمول پیشنهادی فیشر و مائورر ( 17 ) با (SSI) در برگ به روش فلم فتومتری محاسبه شد ( 7). شاخص حساسیت به تنش
استفاده از رابطه زیر محاسبه شد:
( عملکرد ژنوتیپ در شرایط نرمال / عملکرد ژنوتیپ در شرایط تنش ) – 1
SSI = ( میانگین عملکرد کلیه ژنوتیپها در شرایط نرمال / میانگین عملکرد کلیه ژنوتیپها در شرایط تنش ) – 1
کمتر از یک باشد نشان دهنده مقاومت به تنش است . SSI که هر چه مقدار
درصد تغییرات صفات که در جدول شماره 5 آمده از رابطه زیر محاسبه شد:
میانگین صفت در محیط تنش – میانگین صفت در محیط نرمال × 100
میانگین صفت در محیط نرمال
= درصد تغییرات
تجزیه آماری داده های حاصل و محاسبه ضرایب همبستگی ساده بین صفات و همچنین مقایسه میانگین ها با استفاده ا ز آزمون
انجام شد . SAS و تجزیه علیت صفات موثر بر عملکرد دانه با استفاده از برنامه نرم افزاری LSD
نتایج و بحث
با توجه به جداول 2 و 3 مشخص می گردد که اکثر صفات اندازه گیری شده در 10 ژنوتیپ جو هم در شرایط نرمال و هم در
شرایط تنش شوری تفاوت معنی دار در سط ح 5 و 1درصد دارند و این امر نشان دهنده این واقعیت است که در بین 10 ژنوتیپ جو
مورد بررسی از نظر مقاومت یا حساسیت به تنش ، تنوع ژنتیکی متفاوتی وجود دارد . معنی دار بودن اجزای عملکرد بیانگر این است
که لاین ها از نظر این صفات دارای پتانسیل متفاوتی هستند که امک ان دستیابی به ژنوتیپهایی با صفات برتر جهت اصلاح عملکرد
می باشند و نشان دهنده تنوع در میان این لای نها می باشد.
همان طور که درجدول 4 ملاحظه می گردد که بالاترین عملکرد در شرایط تنش شوری مربوط به لاین شماره 9 با عملکرد
2055 کیلوگرم در هکتار کمترین / 0 بوده و رقم شماره 7 با عملکرد 08 / 3885/59 کیلوگرم در هکتار با شاخص حساسی ت 83
در (SSI) را در بین 10 ژنوتیپ داشت. با مراجعه به ستون شاخص حساسیت به تنش (SSI =1/ عملکرد و بیشترین حساسیت ( 62
جدول شماره 4 مشخص می گردد که تنوع ژنتیکی زیادی در بین این لای ن ها موجود م ی باشد. در این بررسی از مجموع 10 ژنوتیپ
6 ژنوتیپ شاخص حساسیت به تنش کمتر از یک داشتند و به عنوان ژنوتیپ های متحمل شناخته م ی شوند. بنابراین ژنوتیپ های
مختلف دارای آستانه حساسیت به تنش متفاوتی هستند. با توجه به جدول 5 مشخص م یگردد که در بین اجزای عملکرد تعداد دانه
در سنبله کمتر از همه تحت تأثیر تنش قرار گرفته است که این نتیجه مخالف با یافت ه های کووال و کووال ( 1996 ) می باشد و وزن
.( هزار دانه بیش از همه تحت تأثیر تنش قرار گرفته است که این نتایج موید گزارشات اهدایی است ( 2
جدول 4- میانگین عملکرد، شاخص برداشت و شاخص حساسیت به تنش شوری در جو
S SI ژنوتیپ ها عملکرد دانه شرایط نرماشلا خص برداشت عملکرد دشان راهی ط تنش ششاور خیص برداشت
0/43 47 2103/81 44/8 3690/68 1
1/17 54/3 2555/08 44/8 3866/53 2
0/87 44 2415/26 37/8 3230/93 3
0/04 42/8 2385/59 40/8 2413/14 4
0/34 47 2684/32 42/8 2974/58 5
1/18 38/3 2150/42 36 3273/3 6
1/62 47 2055/08 46/5 3883/47 7
1/41 35 2150/42 40 3631/35 8
0/83 45 2947/03 43/3 3885/59 9
0/49 34/3 2542/37 36 2970/34 10
جدول 5- درصد تغییرات میانگین صفات در محیط های نرمال و تنش شوری در ارقام جو
صفات میانگین صفت در
محیط تنش شوری
میانگین صفت در
محیط نرمال درصد تغییرات صفات
25/53 117/06 87/ ارتفاع بوته(سانتیمتر) 18
16/94 6/61 5/ تعداد پنجه کل 49
6/35 4/88 4/ تعداد پنجه بارور 57
48/94 850/6 434/ تعداد سنبله در متر مربع 45
8/13 7/01 6/ طول سنبله(سانتیمتر) 44
6/06 46/35 43/ تعداد دانه در سنبله 54
8/41 19/27 17/ تعداد سنبلچه در سنبله 65
16/98 39/22 32/ وزن هزار دانه(کرم) 56
44/03 23030 عملکرد بیولوژیک(کیلو کرم در هکتار) 12889
29/07 3381/99 2398/ عملکرد دانه(کیلو کرم در هکتار) 94
-5/33 41/25 43/ شاخص برداشت 45
16/68 51/27 20/ میزان رطوبت نسبی 73
-13/05 106/63 120/ ضریب پایداری غشاء 55
35/72 26/85 17/ شاخص سطح برگ 26
-466/67 0/33 1/ نسبت سدیم به پتاسیم۷ 8
همان طوری که در جدول 5 مشخص شده مقدار نسبی آب بر گ
تغییر نسبتا زیادى را در بین صفات نشان م ی دهد. نتایج (RWC)
گزارش فریک و پیترز ( 2002 ) نیز نشان می دهد که با افزایش شوری , مقدار نسبی آب برگ کاهش م ی یابد. زیرا در شرایط تنش
. ( شوری سرعت طویل شدن سلول ها کاهش می یابد و تورژسانس کاهش یافته و دیواره سلولها سخت و ض خیم می گردند ( 21
همچنین در جدول شماره 5 نسبت سدیم به پتاسیم تغییر زیادی را نشان م ی دهد (به صورت منفی ) که این با یافت ه های فریک و
همکاران که گزارش کردند با افزایش شوری مقدار سدیم افزایش نشان م ی دهد، مطابقت نشان م ی دهد. با توجه به جداول 6 و 7
مشخص می شود که عملکرد دانه با وزن هزار دانه در هر دو شرایط نرمال و تنش شوری همبستگی مثبت داشته، اما با تعداد پنجه
بارور همبستگی منفی و پائینی نشان می دهد . چنین استنباط می شود که انتخاب مقادیر بالاتر این صفات در رابطه با عملکرد دانه
موثراست.به عبارت دیگرانتخاب برای ارقام برخوردار از عملکرد دانه زیاد و اجزای مرتبط با عملکرد تحت هر دو شرایط موثرتر از
انتخاب در شرایط مطلوب یا به طور جداگانه در شرایط تنش دار است ( هر چند که در شرایط تنش وراث ت پذیری صفات پایین و
پاسخ به گزینش کمتر است).
جدول 6- تجزیه علیت صفات برگزیده بر روی عملکرد دانه 10 ژنوتیپ جو معمولی در شرایط نرمال
همبستگی کل اثر غیر مستقیم اثر مستقیم مسیر
وزن هزار دانه با عملکرد دانه
0/187 اثر مستقیم n.s
0/1449 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
-0/09926 اثر غیر مستقیم از طریق تعداد دانه در سنبله
0/0096 اثر غیر مستقیم از طریق تعداد پنجه بارور
0/24 همبستگی کل n.s
تعداد سنبلچه در سنبله با عملکرد دانه
-0/483 اثر مستقیم n.s
-0/0561 اثر غیر مستقیم از طریق وزن هزار دانه
0/5672
0/00528
اثر غیر مستقیم از طریق تعداد دانه در سنبله
اثر غیر مستقیم از طریق تعداد پنجه بارور
0/03 همبستگی کل n.s
تعداد دانه در سنبله با عملکرد دانه
0/709 اثر مستقیم **
-0/02618 اثر غیر مستقیم از طریق وزن هزار دانه
-0/3864 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
-0/0096 اثر غیر مستقیم از طریق تعداد پنجه بارور
30 / همبستگی کل n.s
تعداد پنجه بارور با عملکرد دانه
-0/048 اثر مستقیم n.s
-0/0374 اثر غیر مستقیم از طریق وزن هزار دانه
0/05313 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
-0/1418 اثر غیر مستقیم از طریق تعداد دانه در سنبله
-0/17 همبستگی کل n.s
به ترتیب به مفهوم وجود اختلاف معنی دار در سطح 1 و 5 درصد و عدم وجود تفاوت معنی دار است . n.s علائم **و * و
جدول 7- تجزیه علیت صفات برگزیده بر روی عملکرد دانه جو معمولی در شرایط تنش شوری
همبستگی کل اثر غیر مستقیم اثر مستقیم مسیر
وزن هزار دانه با عملکرد دانه
0/008 اثر مستقیم n.s
-0/02737 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
0/08493 اثر غیر مستقیم از طریق تعداد دانه در سنبله
0/00511 اثر غیر مستقیم از طریق تعداد پنجه بارور
0/07 n.s
0/161 n.s
همبستگی کل
تعداد سنبلچه در سنبله با عملکرد دانه
اثر مستقیم
-0/00136 اثر غیر مستقیم از طریق وزن هزار دانه
-0/39783 اثر غیر مستقیم از طریق تعداد دانه در سنبله
0/01022 اثر غیر مستقیم از طریق تعداد پنجه بارور
-0/23 همبستگی کل n.s
تعداد دانه در سنبله با عملکرد دانه
-0/447 اثر مستقیم n.s
-0/00152 اثر غیر مستقیم از طریق وزن هزار دانه
0/14329 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
0/00949 اثر غیر مستقیم از طریق تعداد پنجه بارور
-0/30 همبستگی کل n.s
تعداد پنجه بارور با عملکرد دانه
-0/073 اثر مستقیم n.s
-0/00056 اثر غیر مستقیم از طریق وزن هزار دانه
-0/02254 اثر غیر مستقیم از طریق تعداد سنبلچه در سنبله
0/05811 اثر غیر مستقیم از طریق تعداد دانه در سنبله
-0/04 همبستگی کل n.s
به ترتیب به مفهوم وجود اختلاف معنی دار در سطح 1 و 5 درصد و عدم وجود تفاوت معنی دار است . n.s علائم **و * و
در بین صفات مورد بررسی، وزن سنبله که مولفه ای از تعداد دانه در سنبله و وزن دانه است بیشترین همبستگی مثبت را با عملکرد
در شرایط نرمال نشان داد و همبستگی بین تعداد دانه در سنبله و عملکرد دانه در شرایط نرمال مثبت و در سطح احتمال 1 درصد
معنی دار بود که این نتیجه با بیشتر بررسی های انجام شده همخ وانی دارد (ذکری و گرافیوس 1978 ، چادری 1977 ، ساین و ساین
1973 ). هر چند تأثیر وزن دانه بر روی عملکرد کمتر از تعداد دانه ست ولی این رابطه نیز مثبت است . این گونه روابط نیز به
دفعات دیده شده است (پوری و ویلیامز 1985 ، گارسیا و همکاران 1991 ). رابطه بین وزن دانه و عملکرد در هر دو محیط نرمال و
تنش شوری غیرمعنی دار بدست آمد که با نتایج گزارش شده توسط ذکری و گرافیوس ( 1978 ) مطابقت دارد . در تنش شوری و
شرایط نرمال بین برخی از اجزاء عملکرد با عملکرد همبستگی منفی وجود دارد و با افزایش تعداد دانه به علت افزایش ظرفیت
مخزن در مقابل مقدار ثابتی از مواد ذخیر ه ای، طبیعی است که در هر ظرفیت مخزن، تعداد کمتری ماده ذخیره شود و بالعکس و
( این نکته قابل توجه است که ماهیت روابط بین اجزاء صرفاً ژنتیکی نبوده و از محیطی به محیط دیگر تغییر م ی نماید (آدامز 1976
و به همین دلیل در آزمایش ها نتایج مختلف و ضد و نقیضی دیده می شود. اثر غیر مستقیم تعداد دانه در سنبله از طریق وزن هزار
دانه منفی بوده و این مسئله باعث شده که همبستگی بین تعداد دانه در سنبله با عملکرد دانه در شرایط تنش شوری منفی و معنی
دار نباشد . اثر مستقیم تعداد دانه در سنبله و عمل کرد در شرایط نرمال مثبت و معنی دار است ، اما با توجه به اهمیت رابطه منفی
این صفت با وزن هزار دانه و تعداد سنبلچه در سنبله، مقدار همبستگی کل به تعداد زیادی کاهش یافته است . اثر غیر مستقیم
( تعداد دانه در سنبله از طریق وزن هزار دانه در هر دو محیط منفی و ناچیز ا ست که این مدل در آزمایش پوری و ویلیامز ( 1985
آورده شده است .با توجه به اهمیت رقابتی بین اجزای تشکیل دهنده عملکرد و اینکه تعداد دانه در سنبله مهمترین جزء موثر بر
عملکرد در شرایط نرمال تشخیص داده شد و از آنجائیکه شکل گیری این صفت در اوایل دوره رشد تعیین می گ ردد ، لذا فراهم
نمودن شرایط رشدی مناسب در این دوره و انتخاب تراکم گیاهی مناسب یکی از راه های افزایش عملکرد جو می باشد . گفته می
شود در غلات دانه ریز افزایش بیوماس تقریباً به حد نهایی خود رسیده است (دوفینگ و نایت 1992 ) ، لذا افزایش عملکرد دانه از
طریق تخصیص بیشتر مواد فتوسنتزی به دانه ها عملی خواهد بود که در این صورت شاخص برداشت افزایش محسوس خواهد
داشت. در مجموع با توجه به موارد بحث شده در بالا لاین شماره 9 به عنوان متحمل ترین انتخاب شد.
خذ: Ĥ منابع و م
1. اسماعیلی،م و ن .بابائیان. 1377 .واکنش فتوسنتزی و هدایت روزن های دو رقم گندم و دو رقم جو تحت تنش شوری
.273- . چکیده مقالات ششمین کنگره زراعت و اصلاح نباتات ایران. بابلسر . صفحه 284
2. اهدایی، ب، 1373 . انتخاب برای مقاومت به خشکی درگندم، مقالات کلیدی اولین کنگره زراعت و اصلاح نباتات،
انتشارات دانشکده کشاورزی دانشگاه تهران .
3. خورشیدی، م . 1368 . اثر شوری بر جوانه زنی گیاهان مهم زراعی . پایان نامه کارشناسی ارشد زراعت . دانش کده کشاورزی،
دانشگاه تبریز.
4. سرمدنیا، غ و ع ، کوچکی . 1367 . جنبه های فیزیولوژیکی زراعت دیم. انتشارات دانشگاه فردوسی مشهد.
5. عبد میشانی، س. ع. ا. شاه نجات بوشهری. 1374 . اصلاح نباتات تکمیلی. جلد اول. انتشارات دانشگاه تهران. 320 صفحه.
6. قره یاضی، ب . 1371 . دستور زی ژنتیکی گیاهان زراعی با هدف افزایش مقاومت به تنش شوری . موسسه بی ن المللی تحقیقات
. 8- برنج کشور. چکیده مقالات پنجمین کنگره زراعت و اصلاح نباتات ایران. کرج. صفحه 9
7. نوری نیا، ع . 1380 . ارزیابی واکنش ژنوتیپ های مختلف گندم هگزاپلوئید به تنش شوری، پایان نامه د وره دکتری زراعت .دانشگاه
آزاد اسلامی واحد علوم و تحقیقات تهران .
8. Adams, M. W. 1976. Basic of yield component compensation in crop with special reference to the
field bean Crop Sci .7: 505-510
9. Al Tahir, O. A. 1997. Effects of water quality and frequency of irrigation growth and yield of barley.
Agron. J. 48: 74-75
10. Akhaii, H. and M.Ghorbanli. 1993. A contribution to the halophytic vegetable and flora of Iran. In: H.
leith and A. A. Almasson (eds) towards the Rational use of High salinity tolerant.
11. Chaudhary, B. D. 1977. Variability correlation and path analysis in barley . Genet . 18:325-330
12. Choukr, A.R. 1996. The potential halophytes in the development and rehabiliation of arid and semiarid
zones Halophytes and Biosalin. Agriculture. p: 3-13.
13. Cramer, G. R., Epestein, e., and Lauchii, A. 2001. Effects of sodium, potassium and calcium on saltstressed
barley. Physiologia Plantarum, 80, (1): P.83.
14. Dofing, S. M. and C. W. Knight. 1992. Alternative model for path analysis of small grain yield. Crop
Sci . 32:487-489 .
15. Epstein, E., and J. D. Rushow. 1980 .Saline cultured of a genetic approach Sci. 210: 399-404
اصلاح مقاومت به خشکی در گیاهان زراعی
تنش خشکی مانع از تظاهر کامل پتانسیل ژنتیکی گیاهان زراعی می شود و از اینرو موجب کاهش تولیدات کشاورزی می گردد. در مقاومت به خشکی سه مکانیزم دخالت دارند که عبارتند از فرار از خشکی، اجتناب از خشکی و تحمل به خشکی. صفات مختلف مورفولوژیکی، فیزیولوژیکی و بیوشیمیایی باعث ایجاد مقاومت به خشکی می شوند. نحوه توارث (تک ژنی و چند ژنی بودن) و نوع عمل ژن (افزایشی و غیرافزایشی بودن) در صفات مورفولوژیکی و فیزیولوژیکی متفاوت است. با این حال، ژنهای مسؤل بیوسنتز انواع مواد محلول سازگار (compatible solutes) شناسایی و از موجودات مختلفی همچون گیاهان، مخمر، موش و انسان همسانه سازی (کلون) شده اند. روشهای اصلاحی مختلفی برای مقاومت به خشکی وجود دارند که هر یک دارای مزایا و معایبی هستند. در هر برنامه اصلاحی وجود روشهای کارآمد برای شناسایی و انتخاب ژنوتیپ های مناسب ضروری می باشد. شناسایی و انتقال ژنهای مسئول بیوسنتز متابولیت های متعددی همچون پرولین، ترهالوز، و پلی آمینها از موجودات مختلف به گیاهان زراعی از طریق مهندسی ژنتیک بطورموفقیت آمیزی صورت گرفته است. به عنوان مثال، ژن hva1 جو که مسئول سنتز پروتئین های فراوان در اواخر دوره جنین زایی (Late embryogenesis abundant proteins) می باشد از طریق روش انتقال تصادفی (shotgun) به برنج منتقل شده و منجر به تولید برنج تراریخت گردیده است. فقدان یک رهیافت تلفیقی و روشهای دقیق غربال کردن، دانش کم درباره اساس ژنتیکی مقاومت به خشکی، همبستگی منفی بین مقاومت به خشکی و عملکرد، و نبود ژنهای مناسب برای تولید گیاهان تراریخت از عوامل اصلی محدود کننده اصلاح ژنتیکی مقاومت به خشکی می باشند. در برنامه های تحقیقاتی آینده برای مقاومت به خشکی لازم است موارد زیر لحاظ شود: جستجو برای یافتن تنوع ژنتیکی وسیع در صفات مرتبط با مقاومت به خشکی، انتقال همزمان چندین ژن از طریق روشهای اصلاحی متداول یا مهندسی ژنتیک، استفاده از تکنیک RNA ناهمسو ، ارزیابی پلی پپتید های القاء شده در شرایط تنش خشکی واستفاده از یک رهیافت تلفیقی.
خشکی در واقع یک رویداد هواشناختی است که با عدم وقوع بارندگی در یک دوره زمانی همراه می باشد، دوره ای که به اندازه کافی بلند است تا باعث تخلیه رطوبتی خاک و تنش کمبود آب همراه با کاهش پتانسیل آب در بافتهای گیاهی گردد. اما از دیدگاه کشاورزی، خشکی عبارت است از ناکافی بودن مقدار و توزیع آب قابل استفاده در طی دوره رشد گیاه که این امر موجب کاهش بروز توان کامل ژنتیکی گیاه می گردد. خشکی عامل اصلی محدود کننده تولیدات کشاورزی می باشد که گیاه را از رسیدن به حداکثر توان محصولدهی باز می دارد (٨). اثر خشکی بر عملکرد و درآمد نهایی زارع کاملا شناخته شده است. اغلب گیاهان زراعی بویژه در طی دوره گلدهی تا نمو بذر به تنش کمبود آب حساسند. حتی گیاهانی مانند ارزن دم روباهی، سورگوم و لوبیا چشم بلبلی نیز که در نواحی خشک و نیمه خشک کشت می شوند در مرحله زایشی تحت تاثیر تنش خشکی قرار می گیرند.
در کشاورزی، مقاومت به خشکی عبارت است از توانایی یک گیاه زراعی برای تولید محصول اقتصادی با حداقل کاهش عملکرد در شرایط تنش نسبت به شرایط بدون تنش (٨). برای اینکه متخصص ژنتیک بتواند ژنوتیپ های برتر را از طریق روشهای متداول اصلاح نباتات و یا با استفاده از بیوتکنولوژی اصلاح نماید لازم است درک درستی از اساس ژنتیکی مقاومت به خشکی داشته باشد.
مکانیزم های مقاومت به خشکی
از نظر ژنتیکی، مکانیزم های مقاومت به خشکی را می توان به سه دسته تقسیم کرد که عبارتند از فرار از خشکی، اجتناب از خشکی و تحمل به خشکی (۲و٨). با این وجود، گیاهان زراعی معمولا بیش از یک مکانیزم را برای مقاومت در برابر خشکی بکار می گیرند. اجتناب از خشکی عبارت است از توانایی یک گیاه برای کامل کردن چرخه زندگی خود قبل از گسترش تنش کمبود آب در خاک و گیاه. این مکانیزم شامل توسعه سریع فنولوژیک (زود گلدهی و زود رسی)، انعطاف پذیری نموی (تنوع در طول دوره رشد بسته به شدت تنش کمبود آب) و انتقال فراورده های فتوسنتزی ما قبل گلدهی به دانه.
اجتناب از خشکی عبارت است از توانایی گیاه برای حفظ پتانسیل آب نسبتا بالا در بافتها علی رغم وجود کمبود رطوبت در خاک. تحمل به خشکی عبارت است از توانایی گیاه برای مقابله با کمبود آب با پایین آوردن پتانسیل آب بافتها. اجتناب از خشکی از طریق مکانیزم های بهبود جذب آب، ذخیره سازی آب در سلولهای گیاهی و کاهش از دست رفتن آب تحقق می یابد (۲و٨). واکنش گیاهان در برابر تنش کمبود آب تعیین کننده میزان تحمل به خشکی آنهاست. به عنوان مثال، برخی ژنوتیپ های چغندر قند که ریشه های عمیق تری دارند قادر به جذب آب بیشتری بوده و دیرتر پژمرده می شوند و در شرایط جشکی تنوع ژنتیکی برای میزان پژمردگی، سرعت رشد برگ، تنظیم اسمزی و هدایت روزنه ای در واریته های مختلف چغندر قند مشاهده شده است (۱).
اجتناب از خشکی با دو روش صورت می گیرد: ۱) حفظ آماس با افزایش عمق ریشه، سیستم ریشه ای کارآمد و افزایش هدایت هیدرولیکی، ۲) کاهش هدر رفتن آب با کاهش هدایت اپیدرمی (روزنه ای و عدسی)، کاهش جذب نور از طریق لوله ای شدن یا تاخوردن برگها، و کاهش سطح برگ برای پایین آوردن میزان تبخیر (۲و٨). در شرایط تنش خشکی، گیاهان با متعادل کردن حفظ آماس و کاهش هدر رفتن آب زنده می مانند. مکانیزم های تحمل به خشکی عبارتند از حفظ آماس از طریق تنظیم اسمزی (فرایندی که باعث تجمع مواد محلول در سلول می گردد)، افزایش اتساع پذیری سلول، کاهش اندازه سلول و تحمل در برابر آب کشیدگی از طریق مقاومت پروتوپلاسمی(۲و٨).
متاسفانه اغلب این سازگاریها دارای معایبی هستند. ژنوتیپی که دوره رشد کوتاهی دارد معمولا کم محصول تر از ژنوتیپ دیگری با دوره رشد معمولی می باشد. مکانیزم هایی که باعث مقاومت به خشکی از طریق کاهش هدررفتن آب می شوند (مانند بسته شدن روزنه ها و کاهش سطح برگ) معمولا منجر به کاهش جذب دی اکسید کربن می گردند. تنظیم اسمزی با حفظ آماس گیاه مقاومت به خشکی را افزایش می دهد اما افزایش غلظت مواد محلول که تنظیم اسمزی را موجب می شود می تواند علاوه بر انرژی لازم برای تنظیم اسمزی اثرات نامطلوبی نیز درپی داشته باشد. درنتیجه، سازگاری گیاه باید ضمن حفظ محصولدهی مناسب، منعکس کننده تعادل میان فرار، اجتناب و تحمل به خشکی باشد.
ژنتیک مقاومت به خشکی
مقاومت به خشکی صفت پیچیده ای است که بروز آن بستگی به عمل و عکس العمل میان صفات مختلف مورفولوژیکی (زودرسی، کاهش سطح برگ، لوله ای شدن برگ، میزان موم، سیستم ریشه ای کارآمد، ریشک دار بودن، پایداری عملکرد و کاهش پنجه زنی)، فیزیولوژیکی (کاهش تعرق، افزایش راندمان مصرف آب، بسته شدن روزنه ها و تنظیم اسمزی)، و بیوشیمیایی (تجمع پرولین، پلی آمین، ترهالوز و غیره، افزایش فعالیت آنزیم نیترات ردوکتاز وافزایش ذخیره سازی کربوهیدراتها) دارد. مکانیزم های ژنتیکی کنترل کننده این صفات چندان شناخته شده نیستند.
شناسایی ژنهای کنترل کننده صفات مورفولوژیکی و فیزیولوژیکی و محل آنها در روی کروموزومها امکان پذیر بوده و نحوه توارث آنها و ماهیت عمل ژن گزارش گردیده است. توارث چندژنی خصوصیات ریشه بوسیله Ekanayake و همکاران (۳) گزارش شده است. طول و تراکم ریشه ها بوسیله آللهای غالب و ضخیم بودن راس ریشه بوسیله آللهای مغلوب کنترل می شود. با این وجود، لوله ای شدن برگ و تنظیم اسمزی وراثت تک ژنی نشان داده اند. Tomar و Prasad (۹) یک ژن مقاومت به خشکی بنام Drt1 را در برنج گزارش دادند که با ژنهای ارتفاع بوته، رنگدانه و ریشک دار بودن پیوستگی دارد و دارای اثر پلیوتروپی بر روی سیستم ریشه می باشد. در لوبیا چشم بلبلی نیز گزارش شده است که مقاومت به خشکی بوسیله یک ژن غالب کنترل می شود (٨).
اگرچه گزارشات دیگری در این زمینه برای سایر صفات وجود دارد، تحقیقات بیشتری لازم است تا کنترل ژنتیکی صفات مورفولوژیکی و فیزیولوژیکی موثر در مقاومت به خشکی روشنتر شود.
علاوه بر تغییرات مورفولوژیکی و فیزیولوژیکی، تغییرات بیوشیمیایی نیز از جمله القای بیوسنتز مواد محلول سازگار روشی برای بیان وقوع تنش خشکی می باشد. در شرایط تنش خشکی، گیاهان سعی می کنند محتوای آب خود را با انباشته کردن مواد محلول متعدد که غیر سمی بوده و خللی در فرایندهای گیاه ایجاد نمی کنند حفظ نمایند. به این خاطر این مواد را مواد محلول سازگار می نامند. بعضی از آنها عبارتند از فروکتان، ترهالوز، پلیول ها، گلایسین بتایین، پرولین و پلی آمینها (۲و٨). ژنهای مختلفی که مسئول آنزیمهای دخیل در بیوسنتز این مواد محلول هستند شناسایی شده و از موجودات مختلف از جمله باکتریها، مخمر، انسان و گیاه همسانه سازی شده اند که در قسمت های بعدی همین مقاله مورد بحث قرار خواهند گرفت.
اصلاح مقاومت به خشکی
سه روش برای اصلاح مقاومت به خشکی وجود دارد. روش اول عبارت است از اصلاح برای عملکرد بالا در شرایط بدون تنش. از آنجایی که انتظار می رود حداکثر پتانسیل ژنتیکی عملکرد در شرایط بدون تنش تحقق یابد و همبستگی مثبت بالایی بین عملکرد در شرایط تنش و بدون تنش وجود دارد، ژنوتیپی با عملکرد بالا در شرایط بدون تنش عملکرد نسبتا" بالایی نیز درشرایط تنش خواهد داشت. این فلسفه اصلی این روش می باشد. با این وجود، مفهوم بروز حداکثر پتانسیل ژنتیکی در شرایط بدون تنش مورد بحث می باشد زیرا اثر متقابل ژنوتیپ و محیط می تواند مانع از رسیدن ژنوتیپ پر محصول به عملکرد بالا در شرایط تنش خشکی گردد. بنابراین، روش دوم یعنی اصلاح برای عملکرد بالا در شرایط تنش خشکی واقعی پیشنهاد شده است اما مشکل این روش آن است که شدت تنش خشکی از سالی به سال دیگر و در نتیجه، فشار انتخاب محیطی بر روی مواد اصلاحی از نسلی به نسل دیگر بسیار متغیر است. این مسأله همراه با وراثت پذیری پایین عملکرد موجب پیچیدگی و کند شدن برنامه اصلاحی می گردد(۲و٨).
روش سوم که می تواند جایگزینی برای دو روش مذکور باشد عبارت است از اصلاح مقاومت به خشکی در ژنوتیپ های پر محصول با وارد کردن مکانیزم های مورفولوژیکی و فزیولوژیکی مقاومت به خشکی. اما انتقال مقاومت به خشکی به ژنوتیپ های پر محصول پیچیده است زیرا اساس فیزیولوژیکی و ژنتیکی سازگاری به شرایط تنش خشکی کاملا" معلوم نیست. برعکس، اصلاح پتانسیل عملکرد یک ژنوتیپ مقاوم می تواند روش امیدبخش تری باشد به شرط اینکه تنوع ژنتیکی در داخل چنین ژنوتیپی وجود داشته باشد. برای دستیابی به ژنوتیپ های مقاوم به خشکی و پرمحصول می توان از انتخاب همزمان در محیطهای بدون تنش برای عملکرد و در شرایط تنش خشکی برای پایداری عملکرد استفاده کرد(۲و٨).
روش اصلاحی بکار رفته برای مقاومت به خشکی همان روشی است که برای سایر اهداف اصلاحی استفاده می شود. بطور کلی، می توان از روشهای انتخاب شجره ای و بالک (دسته جمعی) برای اصلاح گیاهان خودگشن و از روش انتخاب دوره ای برای اصلاح گیاهان دگرگشن استفاده کرد. با این وجود، اگر هدف ما انتقال چند صفت مؤثر در تحمل به خشکی به یک ژنوتیپ پرمحصول باشد، تلاقی برگشتی روش مناسبی است. از طرف دیگر، تلاقی دو والدی (هاف سیب یا نیمه خواهری و فول سیب یا تمام خواهری) موجب حفظ پایه ژنتیکی وسیع شده و امکان تهیه ژنوتیپ های مطلوب مقاوم به خشکی را فراهم می سازد (٨). با این حال، موفقیت هر برنامه اصلاحی، بویژه برای مقاومت به خشکی، بستگی به وجود روش مناسب ارزیابی یا غربال کردن دارد.
روشهای ارزیابی مقاومت به خشکی
هر اقدامی برای اصلاح ژنتیکی مقاومت به خشکی با استفاده از تنوع ژتنیکی موجود نیاز به یک روش ارزیابی یا غربال کردن کارآمد دارد که باید سریع بوده و قادر به ارزیابی عملکرد گیاه در مراحل حساس رشدی و غربال کردن یک جمعیت بزرگ فقط با استفاده از تعداد محدودی مواد گیاهی باشد. همانطوری که قبلا اشاره شد مقاومت به خشکی نتیجه برهمکنش صفات مختلف مورفولوژیکی، فیزیولوژیکی و بیوشیمیایی است و بنابراین می توان از این اجزای مختلف به عنوان شاخصهای گزینش برای غربال کردن تیپ ایده ال (ایدئوتیپ) گیاهی استفاده کرد. بجای یک صفت ساده باید ترکیبی از صفات مختلف که رابطه مستقیم با مقاومت به خشکی دارند به عنوان معیارهای گزینش مورد استفاده قرار گیرد (٨).
Ludlow و Muchow (۶) مزیت صفات مختلفی را که باعث ایجاد مقاومت به خشکی می شوند رتبه بندی کردند. McCreeو همکاران (۷) و Johnson و همکاران (۵) چارچوبی را تعیین کردند تا بر اساس آن بتوان ارزیابی کرد که چه ترکیبی از صفات در وضعیت آب و رشد گیاه مؤثرند و این می تواند فیزیولوژی را به برنامه جامع بهنژادی گیاهان پیوند بزند. اهمیت تهیه یک روش غربال کردن قابل اعتماد از مدتها قبل درک شده است. روشهای مختلفی که تاکنون برای غربال کردن مورد استفاده قرار گرفته اند عبارتند از:
۱ (استفاده از دماسنج مادون قرمز برای غربال کردن ژنوتیپ هایی که کارایی بالایی در جذب آب دارند.
۲ (پخش نواری علف کش متریبوزین در عمق معینی از خاک و استفاده از ید-۱۳۱ و کشت هیدروپونیک (آب کشتی) تحت تنش ۱۵ بار برای غربال کردن رشد ریشه.
۳ (استفاده از روش سایکرومتری برای ارزیابی تنظیم اسمزی.
۴) استفاده از پورومتر انتشاری برای اندازه گیری میزان هدایت آب برگ.
۵) استفاده از تکنیک مینی رایزوترون برای اندازه گیری میزان نفوذ، توزیع و تراکم ریشه در مزرعه با حداقل دست خوردگی.
۱) عکسبرداری هوایی مادون قرمز برای اندازه گیری میزان به تعویق افتادن آب کشیدگی.
۲) استفاده از تبعیض ایزوتوپهای کربن برای انتخاب ژنوتیپ های دارای راندمان مصرف آب بالا.
۳) از آنجایی که کاهش عملکرد نگرانی اصلی زارع می باشد متخصصین اصلاح نباتات بر عملکرد در شرایط تنش خشکی تاکید می کنند. از یک شاخص تنش خشکی که معیاری از خشکی را بر اساس کاهش عملکرد در شرایط تنش نسبت به شرایط بدون تنش فراهم می نماید برای غربال کردن ژنوتیپ های مقاوم به خشکی استفاده شده است. همچنین، از یک محیط تنش خشکی که بطور مصنوعی ایجاد شده است می توان برای انتخاب ژنوتیپ برتر از داخل یک جمعیت بزرگ استفاده کرد. رتبه بندی ظاهری یا اندازه گیری بلوغ، لوله ای شدن برگ، طول و زاویه برگ، شکل ظاهری ریشه و سایر خصوصیات مورفولوژیکی که ارتباط مستقیم با مقاومت به خشکی دارند نیز مورد توجه قرار گرفته اند (٨).
رهیافت بیوتکنولوژیکی برای مقاومت به خشکی
از روشهای دست ورزی ژنتیکی در گیاهان زراعی برای شناسایی ژنهای مقاومت به خشکی و انتقال آنها استفاده شده است. اساسا" با استفاده از دو روش یعنی روش هدفمند و روش تصادفی می توان گیاهان تراریختی را تولید کرد که دارای مقاومت به خشکی هستند.
روش هدفمند
مسیرهای متابولیکی که شامل سنتز پلی آمین، کربوهیدرات، پرولین، گلیسین بتایین و ترهالوز می باشند با مقاومت به خشکی درارتباطند. در این روش که اساس آن متکی بر وجود اطلاعات لازم درباره واکنش بیوشیمیایی برای سنتز این متابولیتها می باشد ژنهای مربوطه را از منابع مختلف به گیاهان زراعی انتقال می دهند. این رهیافت دقیقتر و روشمند تر است و از احتمال موفقیت بیشتری نسبت به روش تصادفی برخوردار است (۲و٨).
در سالهای اخیر، انتقال ژنهای القاء شده در شرایط تنش خشکی که در مسیرهای بیوشیمیایی مختلفی دخالت دارند، از منابع مختلف به گیاهان حساس به عنوان یکی از روشهای امیدبخش درآمده است. به عنوان مثال، ژن TPS1 که در مخمر یافت شده است فعالیت آنزیم ترهالوز-۶- فسفات سینتتاز را کنترل می کند و در بیوسنتز ترهالوز دخالت دارد. این ژن به توتون منتقل شده است. با اندازه گیری میزان هدررفتن آب از برگهای جداشده یا با تعیین اثر قطع آبیاری بر روی مرگ و آسیب دیدگی برگ معلوم شده است که گیاهان تراریخت دارای مقاومت به خشکی بالایی هستند. ژن دیگری بنام P5CS فعالیت آنزیم پیرولین-۵- کربوکسیلات سینتتاز را که در سنتز پرولین دخالت دارد کنترل می کند و تولید بالای پرولین مقاومت به خشکی را در پی دارد. توتون تراریختی که ِژن P5CS منتقل شده از باقلا را بیش از حد بیان می کرد مقدار بالایی از آنزیم مذکور را نشان داد و میزان تولید پرولین در آن نسبت به گیاه شاهد ۱۸-۱۰ برابر بیشتر بود. تولید بیش از حد پرولین وزن تر ریشه و نمو گل در شرایط خشکی را افزایش داد (٨).
ژن باکتریایی SacB که در Bacillus subtilis یافت می شود فعالیت لوان سوکراز را که در سنتز فروکتان دخالت دارد کنترل می نماید. زمانی که این ژن به توتون منتقل شد گیاه تراریخت حاصله تولید فروکتان نمود و در مقایسه با شاهد از عملکرد بالایی در شرایط خشکی ایجاد شده بوسیله پلی اتیلن گلیکول (PEGبرخوردار بود (٨). ژنهای betAو betB که به ترتیب فعالیت کولین دهیدروژناز و بتایین آلدهید دهیدروژناز را کنترل می نمایند در بیوسنتز گلیسین بتایین دخالت دارند و تجمع گلیسین بتایین مقاومت به خشکی را به گیاه می دهد(٨). Holmstrom و همکاران (۴) ژن betB را از باکتری اشرشیا کولی به توتون منتقل کردند.
با در دسترس بودن ژنهای مسئول بیوسنتز پلی آمین مانند ADC (که فعالیت آرژنین دهیدروژناز را کنترل می کند)، ODC (که فعالیت اورنیتین دکربوکسیلاز را کنترل می کند) و SAMDC (که فعالیت اس-آدنوزیل- متیونین دکربوکسیلاز را کنترل می نماید)، اکنون می توان میزان پلی آمین را با استفاده از سازه های همسو و ناهمسوی این ژنها در گیاهان تراریخت دستکاری کرد (٨). گیاهان توتون که با انتقال ژن ODC از مخمر و موش، ژنADC از چاودار و ژنSAMDC از انسان، تراریخت شده اند گزارش گردیده اند اما در مورد اینکه آیا گیاهان تراریخت تحمل به خشکی نشان می دهند یا نه مطالعات کافی صورت نگرفته است. فقط میزان بیان پلی آمینها در گیاهان مورد مطالعه قرار گرفته است. با این وجود، ژن SOD (سوپراکسیداز دیسموتاز) از نخود فرنگی به توتون منتقل شده و گیاهان تراریخت مقاوم به خشکی بدست آمده است (٨).
روش تصادفی
در این روش که روشی غیر مستقیم برای بدست آوردن ژن مورد نظر می باشد تغییراتی که در فرایند سلول و بیان ژن در اثر تنش خشکی ایجاد می شود مورد تجزیه و تحلیل قرار می گیرد. ژنهایی که تحت تنش خشکی بیان می شوند و هیچ نقش خاصی برای آنها پیدا نشده است شناسایی شده اند. اگرچه این روش از دقت کمی برخوردار بوده و احتمال موفقیت در آن پایین است اما می تواند حتی موقعی که هیچ اطلاعات قبلی درباره ژن یا فراورده ژنی وجود ندارد کارساز باشد (٨). بنابراین، به نظر میرسد که روش تصادفی به علت وجود اطلاعات کافی درباره تغییرات بیوشیمیایی در سلول، انتخاب بهتری برای مقاومت به خشکی می باشد. به عنوان مثال، برنج تراریخت حامل ژن hva1 جو که با این روش تولید شده مقاومت به خشکی نشان داده است (٨). ژن hva1 سنتز یک گروه سه پروتئینی LEA (پروتئینهای فراوان در اواخر جنین زایی) را که در طی دوره تنش در اندامهای رویشی انباشته می شوند کنترل می کند (۲).
روش کشت بافت نیز دارای قابلیت ایجاد تنوع سوماکلونال برای مقاومت به خشکی می باشد اما مشکلاتی که در انتخاب واریانت مورد نظر وجود دارد استفاده از این روش را محدود می سازد.
انتخاب به کمک نشانگر
در اغلب برنامه های اصلاحی، اصلاح ژنتیکی مقاومت به خشکی از طریق انتخاب برای عملکرد صورت می گیرد ولی به علت وراثت پذیری پایین عملکرد تحت شرایط تنش و تغییرات زمانی و مکانی در محیط مزرعه، روشهای سنتی اصلاح نباتات از سرعت کندی برخوردار بوده است. نشانگرهای مولکولی مانند چندشکلی در طول قطعات حاصل از برش آنزیمی DNA (RFLP)، DNA چندشکل حاصل از تکثیر تصادفی (RAPD) و آیزوزایم ها موجب افزایش کارایی در تهیه ژنوتیپ های مقاوم به خشکی می گردد زیرا بیان آنها مستقل از اثرات محیطی است (٨).
بعد از شناسایی نشانگرهای مولکولی که با عملکرد یا سایر صفات مورفولوژیکی مرتبط با مقاومت به خشکی درارتباطند می توان از آنها به عنوان معیارهای گزینش برای مقاومت به خشکی استفاده کرد. انتخاب به کمک نشانگر در تهیه ژنوتیپ های مقاوم به خشکی به کار رفته است. بطور مثال، نشانگرهای RFLP مرتبط با تنظیم اسمزی، دوام سبزینگی و صفات ریشه شناسایی شده است (٨).
محدودیت ها
پژوهشگران تعداد بسیار زیادی صفت مرتبط با مقاومت به خشکی را پیشنهاد کرده اندکه می توان از آنها در انتخاب برای مقاومت به خشکی استفاده کرد و تنوع ژنتیکی نیز برای آنها در گیاهان مختلف وجود دارد اما میزان موفقیت در دستیابی به ژتونیپ های مقاوم به خشکی پایین است. این عدم موفقیت احتمالا ناشی از مجموعه ای از عوامل زیر است (۲و٨):
۱) عدم وجود یک رهیافت چند بخشی برای درک واکنشهای تلفیقی گیاه به تنش خشکی و پیچیده بودن کنترل ژنتیکی مکانیزم های مختلف مقاومت به خشکی.
۲) عدم وجود روشهای غربال کردن دقیق و تکرار پذیر.
۳) درباره صفات قابل اعتمادی که بتوان به عنوان شاخصهای مقاومت به خشکی استفاده کرد و همچنین معیارهای گزینش و تاثیر محیط بر روی صفات مرتبط با خشکی اطلاعات کاملی وجود ندارد.
۴) به نظر می رسد سازگاری های مختلفی که موجب کاهش هدر رفتن آب در شرایط تنش خشکی می شوند دارای اثر منفی بر روی عملکرد هستند. به عنوان مثال، لوله ای شدن برگ و بسته شدن روزنه ها هر دو آب گیاه را حفظ می کنند اما میزان جذب نور و ورود دی اکسید کربن به درون برگ را محدود می سازند و اینها به نوبه خود عملکرد را کاهش می دهند. بنابراین، این صفات برای اصلاح مقاومت به خشکی مفید نیستند.
۵) خشکی جذب عناصر غذایی را کاهش می دهد و با تنش گرمایی و در ارتفاعات با تنش سرما ارتباط دارد. این ارتباط برنامه اصلاحی را پیچیده تر می کند.
۶) علی رغم اهمیت راندمان مصرف آب و وجود تنوع ژنتیکی برای این صفت، انتخاب برای راندمان مصرف آب بالا غالبا با کاهش میزان رشد گیاه همراه است. در اغلب موارد، گیاهان راندمان مصرف آب را از طریق کاهش تعرق افزایش می دهند. از آنجایی که تولید ماده خشک رابطه قوی با تعرق کل دارد هر کاهشی در تعرق منجر به کاهش میزان رشد گیاه می گردد.
۷) محدودیت بکارگیری مهندسی ژنتیک در این زمینه به نبود اطلاعات کافی درباره مناسب ترین ژن برمی گردد.
راهکارهای آینده
برنامه های تحقیقاتی آینده برای مقاومت به خشکی باید راهکارهای زیر را مدنظر قرار دهد:
۱) هرچه سریعتر لازم است ذخایر ژنتیکی گیاهان برای صفات مرتبط با مقاومت به خشکی مورد جستجو قرار گیرد و خصوصیات آنها شناسایی شود تا امکان انتقال صفات مطلوب از طریق روشهای سنتی اصلاح نباتات یا بیوتکنولوژی فراهم گردد.
۲) یک صفت تنها نمی تواند مقاومت به خشکی را در حد رضایت بخشی به گیاه اعطا نماید. بنابراین، هدف برنامه اصلاحی برای مقاومت به خشکی باید جمع آوری تعدادی صفت مرتبط با مقاومت به خشکی در یک گیاه باشد.
۳) دست ورزی ژنتیکی فقط توانسته گیاهانی را ایجاد نماید که در تمام موارد تنها با یک ژن تراریخت شده اند. بنابراین، لازم است تعداد زیادی ژن مختلف را که مسئول بیوسنتز مواد محلول سازگار و اسمولیت های مختلف مرتبط با مقاومت به خشکی هستند بطور همزمان به یک گیاه زراعی منتقل کرد (٨).
۴) درک بهتر اساس ژنتیکی مقاومت به خشکی از طریق تکنیک RNA نا همسو باید مورد توجه قرار گیرد، تکنیکی که در آن اثر میزان بیان آنزیمها یا پروتئینهای مختلف در مسیرهای بیوشیمیایی مختلف بر روی مقاومت به خشکی مورد مشاهده قرار می گیرد (٨).
۵) بعضی از پروتئینها مانند LEA، دهیدرین و غیره در شرایط تنش خشکی سنتز شده و در بافتهای گیاهی انباشته می شوند. می توان با مقایسه ژنوتیپ های حساس و متحمل به خشکی از نظر پلی پپتیدهای مختلفی که در پاسخ به تنش خشکی تولید می شوند یک نشانگر پروتئینی را شناسایی کرد که می تواند به تولید گیاهان تراریخت مقاوم به خشکی کمک نماید(۲و٨).
۶) یک رهیافت چند بخشی که شامل ژنتیک، بیوشیمی، بیوتکنولوژی، فیزیولوژی، اصلاح نباتات و زراعت می باشد برای ارزیابی واکنش پیچیده و تلفیقی گیاهان به تنش خشکی و تهیه ژنوتیپ های برتر مقاوم به خشکی مناسب خواهد بود.
منابع:
۱ - نوروزی، پ. ۱۳٨۳. روش کلاسیک و مهندسی ژنتیک برای ایجاد تحمل به تنش خشکی در گیاهان. فصلنامه علمی-ترویجی خشکی و خشکسالی ۱۱:۴۶–۴۳.
2- Basra AS and Basra R.K (1997) Mechanisms of environmental stress resistance in plants. Harwood Academic, Amsterdam, The Netherlands. pp.1-43.
3- Ekanayake IJ, O’Toole JC, Garrity DP and Masajo TM (1985) Inheritance of root growth characters and their relations to drought resistance in rice. Crop Science 25: 927-933.
4- Holmstrom KO, Mantyia E, Welin B, Mandal A, Palva ET, Tunnela OE and Londesborough J (1996) Drought tolerance in tobacco. Nature 379: 683-684.
5- Johnson IR, Melkonian JJ, Thornley JHM and Riha SJ (1991) A model of water flow through plants incorporating shoot/root message control of stomatal conductance. Plant Cell and Environment 14: 531-544.
6- Ludlow MM and Muchow RC (1990) A critical evaluation of traits for improving crop yields in water-limited environments. Advances in Agronomy 43: 107-153.
7- McCree KJ, Fernandez CJ and Ferraz de Oliveria R (1990) Visualizing interactions of water stress response with a whole-plant simulation model. Crop Science 30: 294-300.
8- Mitra J (2001) Genetics and genetic improvement of drought resistance in crop plants. Current Science 80: 758-763.
9- Tomar JB and Prasad SC (1996) Relationship between inheritance and linkage for drought tolerance in upland rice (Oryza sativa). Indian Journal of Agricultural Sciences 66: 459-465.
به منظور بررسي اهميت نسبي صفات زراعي، ميزان تاثير مستقيم و غيرمستقيم آنها بر عملكرد دانه و مطالعه اثر خشكي بروي اين صفات، 26 ژنوتيپ تحت شرايط ديم و فارياب، در سال زراعي 82-1381در مزرعه تحقيقاتي دانشكده كشاورزي دانشگاه تهران كشت شدند. بيست ويک صفت مرفولوژيک وزراعي اندازهگيري شدند. بين ژنوتيپهاي مورد مطالعه از نظر تمامي صفات مورد ارزيابي شده اختلاف معنيداري مشاهده شد. بر اثر خشكي تعداد روز تا رسيدگي، ارتفاع ساقه، طول پدانكل، تعداد برگ، عملکرد دانه در تک بوته، وزن هزار دانه و شاخص برداشت كاهش يافت. ولي در مورد ساير صفات اثر خشكي معنيدار نبود (در نمودار پراکنش بارندگي و نياز آبي گياه مشخص است). همبستگي عملکرد دانه در تک بوته با ارتفاع ساقه، طول پدانكل، سنبلچههاي كل، سنبلچههاي بارور، تعداد برگ، بيوماس، وزن سنبله اصلي، وزن كل سنبلهها، متوسط تعداد دانه در سنبله، وزن هزار دانه، عملكرد كاه و كلش و شاخص برداشت مثبت و معنيدار بود. رگرسيون چند متغيره خطي نشان داد كه در شرايط فارياب شش صفت: بيوماس، عملكرد كاه و كلش، شاخص برداشت، متوسط تعداد دانه در سنبله، وزن هزار دانه و تعداد روز تا گلدهي تقريباً 8/98 درصد از تغييرات موجود در عملکرد دانه در تک بوته را در اين ارقام توجيه مينمايد و در شرايط ديم پنج صفت: متوسط تعداد دانه در سنبله، وزن هزار دانه، بيوماس، عملكرد كاه و كلش و شاخص برداشت تقريباً 7/97 درصد از تغييرات موجود در عملکرد تک بوته را در اين ارقام توجيه مينمايد. نتايج تجزيه عليت در شرايط فارياب نشان داد كه اثر مستقيم بيوماس و شاخص برداشت برروي عملکرد دانه در تک بوته مثبت و بالا ميباشد. اثر غير مستقيم صفات بر روي يكديگر خيلي كم بود و تنها اثر غير مستقيم متوسط تعداد دانه در سنبله و عملكرد كاه و كلش مثبت و بالا بود. در شرايط ديم نيز بيوماس بيشترين اثر مستقيم را بر روي عملکرد دانه در تک بوته داشت و ساير صفات اثرشان بصورت مستقيم بروي عملكرد دانه در تک بوته ناچيز بود. اما بجز شاخص برداشت اثر غيرمستقيم ديگر صفات: متوسط تعداد دانه در سنبله، وزن هزار دانه و عملكرد كاه و كلش بر عملکرد دانه در تک بوته از طريق بيوماس مثبت و بالا بود. نتايج حاصله از اين تحقيق نشان داد كه خصوصياتي از قبيل عملكرد بيولوژيك (بيوماس)، متوسط تعداد دانه در سنبله، وزن هزار دانه، عملكرد كاه و كلش و شاخص برداشت را ميتوان به عنوان شاخصهايي براي انتخاب ارقام با عملکرد بالا در شرايط ديم و فارياب توصيه نمود. ولي ترتيب اثر اين صفات در دو شرايط ديم و فارياب شبيه هم نيست. نقش عملكرد بيولوژيك و عملكرد كاه و كلش در شرايط ديم كم رنگتر ميشود. (به اين معني است براي مثال ما نمي توانيم در شرايط ديم بوتههاي بزرگ با رشد رويشي زياد داشته باشيم چون به دليل تخليه رطوبت در مرحله رشد زايشي با خشکي روبرو شده و عملکرد کاهش مييابد در صورتي که در شرايط آبي ميتوانيم با توليد بوتههاي بزرگ عملکرد را بالا ببريم
تنش خشکی باعث کم شدن تعداد سنبله در واحد سطح ، تعداد دانه در سنبلچه ، عملکرد بیولوژی وزن هزار دانه ، شاخص برداشت تعداد سنبلچه در سنبله ، تعداد دانه : ارقام فونک و چمران در شرایط مطلوب (100 % نیاز آبی )،استورک و در تنش ملایم 75% نیاز آبی و گرین در تنش سخت از عملکرد دانه بالاتری برخوردار است (1 ) . مشاهده شد که تنش خشکی ، فتوسنتز جاری را 20 % کاهش داد در حالی که عملکرد فقط 15 % کاهش یافت . کاهش کمتر بدلیل انتقال مجدد مواد ذخیره ای از ساقه به دانه بود که نشان دهنده نقش بافری ساقه در ثبات عملکرد است . و رقم چمران به دلیل ذخیره بالی ساقه از ثبات عملکرد بالاتری برخوردار بوده است (4) . تنش خشکی باعث کاهش وزن خشک برگها و ساقه ، کاهش سرعت پر شدن دانه می شود . و رقم اصلاح شده فلات به عنوان بهترین رقم شناسایی شد (6) . اثر منفی تنش خشکی بر روی عملکرد دانه به زمان و شدت خشکی بستگی دارد . به علت رسیدگی زودتر دانه در جو ، سازگاری به تنش رطوبتی جو نسبت به گندم بهتر است (7).
در دهه هاي آينده با پديده گرم شدن جهاني هوا و تغيير اقليم در برخي مناطق الگو هاي بارندگي تغيير خواهد كرد و ريسك توليد در شرايط ديم بالا مي رود. كمبود آب روي بسياري از جنبه هاي عملكرد محصول اثر مي گذارد. با توجه به سطح زير كشت جو و توليد در شرايط ديم بدليل عدم مديريت مطلوب از كارآيي مصرف آب مناسبي برخوردار نمي باشد. و نياز به ارتقاء بهره وري از آب در اين شرايط است تا گياه حداكثر استفاده را از آب موجود در خاك داشته باشد.
تنش هاي محيطي و خشکي
تنش یا استرس Stress ، واژهای است که اولین بار توسط دانشمندان علوم بیولوژیک در مورد موجودات زنده بکار برده شد. بعدها این واژه از علم فیزیک گرفته شده و آن را به عنوان هر عاملی که امکان بالقوه وارد آوردن صدمه به موجودات زنده را دارد تعریف نمودند. تنش، نتیجه روند غیرعادی فرآیندهای فیزیولوژیکی است که از تأثیر یک یا ترکیبی از عوامل زیستی و محیطی حاصل میشود. همان طوری که در تعریف آمده، تنش دارای توان آسیبرسانی میباشد که به صورت نتیجه یک متابولیسم غیرعادی روی داده و ممکن است به صورت افت رشد، مرگ گیاه و یا مرگ بخشی از گیاه بروز کند (حکمت شعار، 1372).
تنشهای محیطی را معمولاً به دو دسته تقسیم کردهاند: تنشهای بیولوژیکی Biotic stress و تنشهای فیزیکوشیمیایی Physiochemical stress.
تنشهای بیولوژیکی شامل حمله آفات و امراض به گیاهان میباشد .تنشهای فیزیکی و شیمیایی به پنج گروه تقسیم میشوند که از بین آنها، خسارت وارده به گیاهان زراعی در اثر تنشهای کمبود آب، شوری و دما در سطح جهان گستردهتر بوده و به همین جهت بیشتر مورد مطالعه قرار گرفتهاند (Levitt, 1980).
خشکی و وضعیت جهانی آن
واژه خشکی یک اصطلاح هواشناسی بوده و بیانگر دورهای است که در آن مقدار بارندگی کمتر از مقدار تبخیر و تعرق بالقوه شود. چون کمبود باران باعث تنش کمبود آب خواهد شد، لذا واژه تنش خشکی Drought stress برای مواردی که تنش در اثر عدم وقوع بارندگی مفید ایجاد شده است بکار میرود و بعبارت دیگر، در این حالت تنش کمبود آب[1] به طور طبیعی مد نظر است. اگر گیاه به طور مصنوعی تحت شرایط تنش رطوبتی قرار گیرد در این صورت واژه تنش کمبود آب بکار برده میشود. چنانچه در اثر خشکی هوا، رطوبت داخلی گیاه به کمتر از 50% مقدار عادی خود برسد در این صورت گیاه دچار آبکشیدگی Water deficit stress شده و چنانچه رطوبت داخلی گیاه کمتر از مقدار عادی ولی بالاتر از 50% باشد پسآبیدگی Evaporative dehydration گویند (سرمدنیا، 1374).میزان خسارت وارده به گیاه در اثر تنش خشکی، بسته به طول مدت خشکی، زمان وقوع تنش، فراوانی وقوع تنش، نوع گیاه و خصوصیات ذاتی خاک متفاوت است.در حدود یک سوم اراضی جهان با کمبود بارندگی مواجه ا ند و نیمی از این اراضی دارای بارندگی سالیانه کمتر از 250 میلیمتر میباشند که یک چهارم تبخیر و تعرق بالقوه این مناطق است. به طور کلی مناطق خشک و نیمه خشک جهان در محدودههای بین عرضهای جغرافیایی 15 تا 30 درجه شمالی و جنوبی قرار گرفتهاند و وسعتی در حدود 7/44 میلیون کیلومتر مربع را شامل میشوند. حدود 39% از این مساحت جزء مناطق خشک محسوب میگردد که قسمت عمده آن برای زراعت مساعد نیست (کوچکی و نصیری محلاتی، 1373).در مناطق خشک و نیمه خشک علاوه بر میزان بارندگی کم، توزیع بارندگی از فصلی تا فصل دیگر و از سالی به سال دیگر متغیر بوده و بنابراین پیشبینی میزان و توزیع آن بسیار مشکل است (اهدایی، 1372).در کشور ما نیز به جز سواحل دریای خزر و قسمتهای کوچکی از شمال غربی کشور بقیه مناطق تماماً جزء نقاط خشک و نیمه خشک محسوب میگردند و این در حالی است که مناطق خشک کشورمان نسبت به مناطق نیمه خشک آن، از وسعت بیشتری برخوردار است (اهدایی، 1372).
تنش خشکی
به طور کلی به هر عامل خارجی که نتیجهاش نرخ رشد کمتر از حد معمول باشد، تنش گرفته میشود یعنی هر عاملی که مراحل متابولیک طبیعی یک گیاه را به وقفه میاندازد، محدود میکند یا به طور زیانآوری تسریع میکند (Guriu et al ., 1996) .تنش آبی هم به عدم وجود آب کافی هم به وجود آب اضافه در اطراف گیاه گفته میشود. در حالت اول که در نتیجه خشکی و یا کمبود آب بوجود میآید تحت عنوان تنش کمبود آب شناخته میشود که با تنش خشکی مترادف است (سرمدنیا ، 1372) .
کرامر (1983) خشکی را تحت عنوان نبود یا کمبود بارندگی مراحل حساس رشد گیاه، تعریف نموده است، به عقیده وی طول دوره بدون بارندگی که موجب صدمه به گیاه میشود، تابع نوع گیاه، ظرفیت نگهداری آب، خاک و همچنین شرایط اتمسفری است که بر میزان تبخیر و تعرق تأثیر می گذارد .
وینز ( 1990 ) خشکی را دورهای که کمبود آب چه بصورت حاد و چه بصورت مزمن رشد گیاه را تحت تاثیر قرار می دهد و مانع رشد نرمال آن میشود، تعریف مینماید.
گیبس (1975) خشکی را معادل کمبود آب در نظر گرفته و آن را به مفهوم عدم توزان بین عرضه و تقاضا آب برای گیاه تلقی میکند.
رایجترین تعریف خشکی در کشاورزی توسط آدمیدس و همکاران (1989) مطرح شده است. آنها معتقدند که کمبود یا تنش رطوبت هنگامی افزایش مییابد که تقاضای تبخیر اتمسفر بالای برگها (یعنی تبخیر و تعرق پتانسیل) ETP از ظرفیت و توانایی ریشهها برای استخراج آب از خاک (یعنی تبخیر و تعرق واقعی) ETA تجاوز نموده و فراتر میرود. در کشاورزی منظور از خشکی کمبود آب بصورت طبیعی است. اگر گیاه بطور مصنوعی در معرض تنش آب قرار داده شود، واژه «تنش کمبود آب» ETA بکار میرود. در نهایت در مورد گیاه زراعی خشکی را میتوان بعنوان عدم تعادل بین عرضه و تقاضای آب تعریف کرد . چنانچه در اثر خشکی هوا رطوبت داخلی گیاه کمتر از 50 درصد مقدار عادی خود شود، گویند گیاه دچار «کمبود آب» Water Dessication یا از دست دادن آب شده است و چنانچه رطوبت گیاه کمتر از مقدار عادی خود ولی بالاتر از 50 درصد مقدار عادی باشد «گیاه پسابیده» Evaporative Dehidration شده است. تنش خشکی که موجب از دست دادن آب بصورت مایع شود را تنش اسمزی گویند. بنابراین تنش خشکی به تنهایی مفهوم دقیقی ندارد. (سرمدنیا ، 1372 ) .
انواع خشکی
نوع خشکی در مناطق مختلف در طول فصل زراعی متفاوت است و ممکن است :
1ـ پیوسته بوده و شدت آن دائماً زیاد شود.
2ـ فقط در اوایل فصل باشد .
3ـ فقط در اواخر فصل مصادف
|
تنش شوری بر ذرت
تنش هاي محيطي از جمله عواملي هستند كه ما را دراستفاده از حداكثر پتانسيل آب ، خاك و گياه در جهت حداكثر توليد دچار محدوديت مي كند .از مهمترين اين تنش ها ، تنش شوري است . اراضي شور و بسيار شور حدود ۱۰ %از كل اراضي كشاورزي دنيا را شامل شده كه به منظور بهره برداري از اين اراضي، كه درآن ها گياه با تنش شوري روبرو است ، ملزم به استفاده از مديريت هاي خاص مي باشيم( ۱). تاثير شوري در گونه هاي مختلف و در مراحل مختلف رشدي يك گياه متفاوت است . يك گونه ممكن است در يك مرحله حساس به شوري و در مرحله اي ديگر مقاوم به شور ي باش د( ۹). ولي به طور كل در اكثر گياهان زراعي مراحل اوليه ي رشد از جمله جوانه زني حساس ترين مرحله ي رشد نسبت به شوري مي باشد ( ۶). گياه ذرت در اين زمينه متفاوت بوده، يعني در مرحله ي جوانه زني نسبت به شوري مقاوم و در مراحل بعدي حساس مي باشد ( ۸).استرس اسمزي حاص ل از پايين بودن پتانسيل اسمزي آب خارج گياه (خشكي فيزيولوژيك )،اثر اسمزي و سمي يك يون به خصوص (اثر سمي ) و تاثير غير مستقيم يك يون بر روي متابوليسم كه به دليل وجود يك يون بيش از حد در محدوده ي ريشه كه با ايجاد اختلال در جذب ساير يون ها همراه است ،مواردي هستند كه تحت شرايط تنش شوري، رشد ومتابوليسم گياه را تحت تاثير قرار داده و با كاهش سرعت رشد كاهش اندام هوايي ،كاهش دوره ي رشد و تسريع در ورود به فاز زايشي ،در نهايت باعث كاهش عملكرد مي شود ( ۴).آستانه ي شوري در ذرت 1/8 دسي زيمنس بر متر مي باشد و با افزايش آن به 2/7، 6/8 و 8/4 و 15/3 دسي زيمنس برمتر عملكرد ذرت به ترتيب ۲۵ و ۵۰ و ۱۰۰ درصد كاهش مي يابد. ، (۶).به طور كل آب هاي با هدايت الكتريكي كمتر از 0/75 ميلي موس بر سانتي متر جهت آبياري مناسب هستند و جهت استفاده از آب هاي با شوري بالا تر راه كار هاي متفاوتي از جمله كاشت گياهان مقاوم ،كاهش فاصله ي آبياري ،مصرف آب بيشتر به منظور آبشوئي ،شخم عميق ،انتخاب محل دقيق قرار كيري بذر در خاك ،زهكشي مناسب،بهبود وضعيت نفوذ پذيري خاك و تلفيق آب شور وشيرين ارائه شده است (1؛ 3و4) هدف اصلي تحقيق پيش رو نحوه ي مديريت آبياري با آب شور از نقطه نظر اين كه مقدار آب شور مورد ، استفاده به چه ميزان باشد تا حداكثر محصول با حداقل اثرات سوء زيست محيطي ناشي از استفاده از آب هاي شور حاصل شود.
اثر تنش شوري بر ميزان جذب عناصر غذايي خاك توسط ذرت
يكي از اثرات تنش شوري بر گياه اثرات اختصاصي آن است. اين نوع تاثير بيشتر در اثر تراكم زياد يك يون نسبت به بقيه يونها در محلول خاك مي باشد، بطوري كه رقابت يوني مانع جذب ساير يونها توسط گياه شده و بدين طريق موجبات كاهش رشد و نمو گياه را فراهم مي سازد. پتاسيم جزء عناصر پر مصرف گياه است و جذب آن توسط گياه به صورت يون ميباشد. پتاسيم جزء لاينفك اندامهاي گياهي نبوده، بلكه نقش آن عمدتا كاتاليزوري است. با كمبود پتاسيم سوخت و ساز نوري كاهش و ميزان تنفس افزايش مي يابد و نتيجه آن كاهش كربوهيدراتهاست.
گياهان داراي پتاسيم فراوان در مقايسه با نباتات مبتلا به كمبود آن، داراي بافتهاي نگه دارنده قوي تر خواهند بود و در اثر وجود اين بافتها، پايدار غلات در برابر ورس افزايش مي يابد. كلسيم و منيزيم دو عنصر دو ظرفيتي بوده و به همان صوورت هم توسط گياه جذب مي شوند.
باربر نشان داد كه وجود پكتات كسيم درديواره سلولي براي زنده ماندن گياه الزامي بوده و علاوه بر نقشهاي متعددد، متعادل كردن ساير مواد غذايي به عهده كلسيم است.
تيسدال خاطر نشان كرد كه كلسيم در تشكيل و افزايش پروتئين در درون ميتوكندري دخالت دارد. با توجه به نقش ميتوكندري ها در تنقس هوازي و در نتيجه جذب عناصر غذايي مي توان چنين نتيجه گرفتكه رابطه مستقيم بين مقدار كلسيم و جذب عناصر غذايي بوسيله گياهان وجود دارد.
وجود منيزين براي تداوم سوخت و ساز نوري، فعال كردن آنزيمهاي متعدد در رابطه با سوخت و ساز كربوهيدراتها و نقش آن در چرخه اسيد سيتريك در تنفس سلولي اهميتي حياتي دارد. كمبود منيزيم در گياه به صورت ناقص الخلقه بودن گياه ظاهر مي شود و از آنجا كه منيزيم جزئي از ساختمان سبزينه به شمار مي رود كمبود آن رنگ پريدگي برگها را به دنبال دارد.
ايگارچا و همكارانش با مطالعه بر روي ذرت و تاثير تنش شوري بر جذب عناصر در آن به نتيجه رسيدند كه افزايش سديم گياه در تيمار شوري در مقايسه با تيمار شاهد بسيار معني دار بوده است. همچنين دريافتند كه غلظت پتاسيم بسيار مهني دار بوده است. همچنين دريافتند كه غلظت پتاسيم، كلسيم در تيماري شوري بطور معني داري نسبت به تيمار شاهد از خود كاهش نشان داده است.
موسوي و لساني (1376) اثر شوري را بر جذب عناصر در گياه زيتون مورد بررسي قرار دادند. آنها دريافتند كه افزايش شوري به طور بسيار معني داري ميزان كلسيم، منيزيم و پتاسيم را در بافتهاي برگ، ساقه و ريشه كاهش داده است. همچنين اظهار داشتند كه اثرات متقابل شوري بر روي نسبت پتاسيم، به سديم در بافتهاي گياهي معني دار بوده است.
تنش خشکی مانع از تظاهر کامل پتانسیل ژنتیکی گیاهان زراعی می شود و از اینرو موجب کاهش تولیدات کشاورزی می گردد. در مقاومت به خشکی سه مکانیزم دخالت دارند که عبارتند از فرار از خشکی، اجتناب از خشکی و تحمل به خشکی. صفات مختلف مورفولوژیکی، فیزیولوژیکی و بیوشیمیایی باعث ایجاد مقاومت به خشکی می شوند. نحوه توارث (تک ژنی و چند ژنی بودن) و نوع عمل ژن (افزایشی و غیرافزایشی بودن) در صفات مورفولوژیکی و فیزیولوژیکی متفاوت است. با این حال، ژنهای مسؤل بیوسنتز انواع مواد محلول سازگار (compatible solutes) شناسایی و از موجودات مختلفی همچون گیاهان، مخمر، موش و انسان همسانه سازی (کلون) شده اند. روشهای اصلاحی مختلفی برای مقاومت به خشکی وجود دارند که هر یک دارای مزایا و معایبی هستند. در هر برنامه اصلاحی وجود روشهای کارآمد برای شناسایی و انتخاب ژنوتیپ های مناسب ضروری می باشد.
شناسایی و انتقال ژنهای مسئول بیوسنتز متابولیت های متعددی همچون پرولین، ترهالوز، و پلی آمینها از موجودات مختلف به گیاهان زراعی از طریق مهندسی ژنتیک بطورموفقیت آمیزی صورت گرفته است. به عنوان مثال، ژن hva1 جو که مسئول سنتز پروتئین های فراوان در اواخر دوره جنین زایی (Late embryogenesis abundant proteins) می باشد از طریق روش انتقال تصادفی (shotgun) به برنج منتقل شده و منجر به تولید برنج تراریخت گردیده است. فقدان یک رهیافت تلفیقی و روشهای دقیق غربال کردن، دانش کم درباره اساس ژنتیکی مقاومت به خشکی، همبستگی منفی بین مقاومت به خشکی و عملکرد، و نبود ژنهای مناسب برای تولید گیاهان تراریخت از عوامل اصلی محدود کننده اصلاح ژنتیکی مقاومت به خشکی می باشند. در برنامه های تحقیقاتی آینده برای مقاومت به خشکی لازم است موارد زیر لحاظ شود: جستجو برای یافتن تنوع ژنتیکی وسیع در صفات مرتبط با مقاومت به خشکی، انتقال همزمان چندین ژن از طریق روشهای اصلاحی متداول یا مهندسی ژنتیک، استفاده از تکنیک RNA ناهمسو ، ارزیابی پلی پپتید های القاء شده در شرایط تنش خشکی واستفاده از یک رهیافت تلفیقی.
خشکی در واقع یک رویداد هواشناختی است که با عدم وقوع بارندگی در یک دوره زمانی همراه می باشد، دوره ای که به اندازه کافی بلند است تا باعث تخلیه رطوبتی خاک و تنش کمبود آب همراه با کاهش پتانسیل آب در بافتهای گیاهی گردد. اما از دیدگاه کشاورزی، خشکی عبارت است از ناکافی بودن مقدار و توزیع آب قابل استفاده در طی دوره رشد گیاه که این امر موجب کاهش بروز توان کامل ژنتیکی گیاه می گردد. خشکی عامل اصلی محدود کننده تولیدات کشاورزی می باشد که گیاه را از رسیدن به حداکثر توان محصولدهی باز می دارد . اثر خشکی بر عملکرد و درآمد نهایی زارع کاملا شناخته شده است. اغلب گیاهان زراعی بویژه در طی دوره گلدهی تا نمو بذر به تنش کمبود آب حساسند. حتی گیاهانی مانند ارزن دم روباهی، سورگوم و لوبیا چشم بلبلی نیز که در نواحی خشک و نیمه خشک کشت می شوند در مرحله زایشی تحت تاثیر تنش خشکی قرار می گیرند.
در کشاورزی، مقاومت به خشکی عبارت است از توانایی یک گیاه زراعی برای تولید محصول اقتصادی با حداقل کاهش عملکرد در شرایط تنش نسبت به شرایط بدون تنش. برای اینکه متخصص ژنتیک بتواند ژنوتیپ های برتر را از طریق روشهای متداول اصلاح نباتات و یا با استفاده از بیوتکنولوژی اصلاح نماید لازم است درک درستی از اساس ژنتیکی مقاومت به خشکی داشته باشد.
مکانیزم های مقاومت به خشکی
از نظر ژنتیکی، مکانیزم های مقاومت به خشکی را می توان به سه دسته تقسیم کرد که عبارتند از فرار از خشکی، اجتناب از خشکی و تحمل به خشکی. با این وجود، گیاهان زراعی معمولا بیش از یک مکانیزم را برای مقاومت در برابر خشکی بکار می گیرند. اجتناب از خشکی عبارت است از توانایی یک گیاه برای کامل کردن چرخه زندگی خود قبل از گسترش تنش کمبود آب در خاک و گیاه. این مکانیزم شامل توسعه سریع فنولوژیک (زود گلدهی و زود رسی)، انعطاف پذیری نموی (تنوع در طول دوره رشد بسته به شدت تنش کمبود آب) و انتقال فراورده های فتوسنتزی ما قبل گلدهی به دانه.
اجتناب از خشکی عبارت است از توانایی گیاه برای حفظ پتانسیل آب نسبتا بالا در بافتها علی رغم وجود کمبود رطوبت در خاک. تحمل به خشکی عبارت است از توانایی گیاه برای مقابله با کمبود آب با پایین آوردن پتانسیل آب بافتها. اجتناب از خشکی از طریق مکانیزم های بهبود جذب آب، ذخیره سازی آب در سلولهای گیاهی و کاهش از دست رفتن آب تحقق می یابد. واکنش گیاهان در برابر تنش کمبود آب تعیین کننده میزان تحمل به خشکی آنهاست. به عنوان مثال، برخی ژنوتیپ های چغندر قند که ریشه های عمیق تری دارند قادر به جذب آب بیشتری بوده و دیرتر پژمرده می شوند و در شرایط جشکی تنوع ژنتیکی برای میزان پژمردگی، سرعت رشد برگ، تنظیم اسمزی و هدایت روزنه ای در واریته های مختلف چغندر قند مشاهده شده است.
اجتناب از خشکی با دو روش صورت می گیرد: ۱) حفظ آماس با افزایش عمق ریشه، سیستم ریشه ای کارآمد و افزایش هدایت هیدرولیکی، ۲) کاهش هدر رفتن آب با کاهش هدایت اپیدرمی (روزنه ای و عدسی)، کاهش جذب نور از طریق لوله ای شدن یا تاخوردن برگها، و کاهش سطح برگ برای پایین آوردن میزان تبخیر.در شرایط تنش خشکی، گیاهان با متعادل کردن حفظ آماس و کاهش هدر رفتن آب زنده می مانند. مکانیزم های تحمل به خشکی عبارتند از حفظ آماس از طریق تنظیم اسمزی (فرایندی که باعث تجمع مواد محلول در سلول می گردد)، افزایش اتساع پذیری سلول، کاهش اندازه سلول و تحمل در برابر آب کشیدگی از طریق مقاومت پروتوپلاسمی.
متاسفانه اغلب این سازگاریها دارای معایبی هستند. ژنوتیپی که دوره رشد کوتاهی دارد معمولا کم محصول تر از ژنوتیپ دیگری با دوره رشد معمولی می باشد. مکانیزم هایی که باعث مقاومت به خشکی از طریق کاهش هدررفتن آب می شوند (مانند بسته شدن روزنه ها و کاهش سطح برگ) معمولا منجر به کاهش جذب دی اکسید کربن می گردند. تنظیم اسمزی با حفظ آماس گیاه مقاومت به خشکی را افزایش می دهد اما افزایش غلظت مواد محلول که تنظیم اسمزی را موجب می شود می تواند علاوه بر انرژی لازم برای تنظیم اسمزی اثرات نامطلوبی نیز درپی داشته باشد. درنتیجه، سازگاری گیاه باید ضمن حفظ محصولدهی مناسب، منعکس کننده تعادل میان فرار، اجتناب و تحمل به خشکی باشد.
ژنتیک مقاومت به خشکی
مقاومت به خشکی صفت پیچیده ای است که بروز آن بستگی به عمل و عکس العمل میان صفات مختلف مورفولوژیکی (زودرسی، کاهش سطح برگ، لوله ای شدن برگ، میزان موم، سیستم ریشه ای کارآمد، ریشک دار بودن، پایداری عملکرد و کاهش پنجه زنی)، فیزیولوژیکی (کاهش تعرق، افزایش راندمان مصرف آب، بسته شدن روزنه ها و تنظیم اسمزی)، و بیوشیمیایی (تجمع پرولین، پلی آمین، ترهالوز و غیره، افزایش فعالیت آنزیم نیترات ردوکتاز وافزایش ذخیره سازی کربوهیدراتها) دارد. مکانیزم های ژنتیکی کنترل کننده این صفات چندان شناخته شده نیستند.
شناسایی ژنهای کنترل کننده صفات مورفولوژیکی و فیزیولوژیکی و محل آنها در روی کروموزومها امکان پذیر بوده و نحوه توارث آنها و ماهیت عمل ژن گزارش گردیده است. توارث چندژنی خصوصیات ریشه بوسیله Ekanayake و همکاران گزارش شده است. طول و تراکم ریشه ها بوسیله آللهای غالب و ضخیم بودن راس ریشه بوسیله آللهای مغلوب کنترل می شود. با این وجود، لوله ای شدن برگ و تنظیم اسمزی وراثت تک ژنی نشان داده اند. Tomar و Prasad یک ژن مقاومت به خشکی بنام Drt1 را در برنج گزارش دادند که با ژنهای ارتفاع بوته، رنگدانه و ریشک دار بودن پیوستگی دارد و دارای اثر پلیوتروپی بر روی سیستم ریشه می باشد. در لوبیا چشم بلبلی نیز گزارش شده است که مقاومت به خشکی بوسیله یک ژن غالب کنترل می شود .
اگرچه گزارشات دیگری در این زمینه برای سایر صفات وجود دارد، تحقیقات بیشتری لازم است تا کنترل ژنتیکی صفات مورفولوژیکی و فیزیولوژیکی موثر در مقاومت به خشکی روشنتر شود.
علاوه بر تغییرات مورفولوژیکی و فیزیولوژیکی، تغییرات بیوشیمیایی نیز از جمله القای بیوسنتز مواد محلول سازگار روشی برای بیان وقوع تنش خشکی می باشد. در شرایط تنش خشکی، گیاهان سعی می کنند محتوای آب خود را با انباشته کردن مواد محلول متعدد که غیر سمی بوده و خللی در فرایندهای گیاه ایجاد نمی کنند حفظ نمایند. به این خاطر این مواد را مواد محلول سازگار می نامند. بعضی از آنها عبارتند از فروکتان، ترهالوز، پلیول ها، گلایسین بتایین، پرولین و پلی آمینها. ژنهای مختلفی که مسئول آنزیمهای دخیل در بیوسنتز این مواد محلول هستند شناسایی شده و از موجودات مختلف از جمله باکتریها، مخمر، انسان و گیاه همسانه سازی شده اند که در قسمت های بعدی همین مقاله مورد بحث قرار خواهند گرفت.
اصلاح مقاومت به خشکی
سه روش برای اصلاح مقاومت به خشکی وجود دارد. روش اول عبارت است از اصلاح برای عملکرد بالا در شرایط بدون تنش. از آنجایی که انتظار می رود حداکثر پتانسیل ژنتیکی عملکرد در شرایط بدون تنش تحقق یابد و همبستگی مثبت بالایی بین عملکرد در شرایط تنش و بدون تنش وجود دارد، ژنوتیپی با عملکرد بالا در شرایط بدون تنش عملکرد نسبتا" بالایی نیز درشرایط تنش خواهد داشت. این فلسفه اصلی این روش می باشد. با این وجود، مفهوم بروز حداکثر پتانسیل ژنتیکی در شرایط بدون تنش مورد بحث می باشد زیرا اثر متقابل ژنوتیپ و محیط می تواند مانع از رسیدن ژنوتیپ پر محصول به عملکرد بالا در شرایط تنش خشکی گردد. بنابراین، روش دوم یعنی اصلاح برای عملکرد بالا در شرایط تنش خشکی واقعی پیشنهاد شده است اما مشکل این روش آن است که شدت تنش خشکی از سالی به سال دیگر و در نتیجه، فشار انتخاب محیطی بر روی مواد اصلاحی از نسلی به نسل دیگر بسیار متغیر است. این مسأله همراه با وراثت پذیری پایین عملکرد موجب پیچیدگی و کند شدن برنامه اصلاحی می گردد.
روش سوم که می تواند جایگزینی برای دو روش مذکور باشد عبارت است از اصلاح مقاومت به خشکی در ژنوتیپ های پر محصول با وارد کردن مکانیزم های مورفولوژیکی و فزیولوژیکی مقاومت به خشکی. اما انتقال مقاومت به خشکی به ژنوتیپ های پر محصول پیچیده است زیرا اساس فیزیولوژیکی و ژنتیکی سازگاری به شرایط تنش خشکی کاملا" معلوم نیست. برعکس، اصلاح پتانسیل عملکرد یک ژنوتیپ مقاوم می تواند روش امیدبخش تری باشد به شرط اینکه تنوع ژنتیکی در داخل چنین ژنوتیپی وجود داشته باشد. برای دستیابی به ژنوتیپ های مقاوم به خشکی و پرمحصول می توان از انتخاب همزمان در محیطهای بدون تنش برای عملکرد و در شرایط تنش خشکی برای پایداری عملکرد استفاده کرد.
روش اصلاحی بکار رفته برای مقاومت به خشکی همان روشی است که برای سایر اهداف اصلاحی استفاده می شود. بطور کلی، می توان از روشهای انتخاب شجره ای و بالک (دسته جمعی) برای اصلاح گیاهان خودگشن و از روش انتخاب دوره ای برای اصلاح گیاهان دگرگشن استفاده کرد. با این وجود، اگر هدف ما انتقال چند صفت مؤثر در تحمل به خشکی به یک ژنوتیپ پرمحصول باشد، تلاقی برگشتی روش مناسبی است. از طرف دیگر، تلاقی دو والدی (هاف سیب یا نیمه خواهری و فول سیب یا تمام خواهری) موجب حفظ پایه ژنتیکی وسیع شده و امکان تهیه ژنوتیپ های مطلوب مقاوم به خشکی را فراهم می سازد. با این حال، موفقیت هر برنامه اصلاحی، بویژه برای مقاومت به خشکی، بستگی به وجود روش مناسب ارزیابی یا غربال کردن دارد.
روشهای ارزیابی مقاومت به خشکی
هر اقدامی برای اصلاح ژنتیکی مقاومت به خشکی با استفاده از تنوع ژتنیکی موجود نیاز به یک روش ارزیابی یا غربال کردن کارآمد دارد که باید سریع بوده و قادر به ارزیابی عملکرد گیاه در مراحل حساس رشدی و غربال کردن یک جمعیت بزرگ فقط با استفاده از تعداد محدودی مواد گیاهی باشد. همانطوری که قبلا اشاره شد مقاومت به خشکی نتیجه برهمکنش صفات مختلف مورفولوژیکی، فیزیولوژیکی و بیوشیمیایی است و بنابراین می توان از این اجزای مختلف به عنوان شاخصهای گزینش برای غربال کردن تیپ ایده ال (ایدئوتیپ) گیاهی استفاده کرد. بجای یک صفت ساده باید ترکیبی از صفات مختلف که رابطه مستقیم با مقاومت به خشکی دارند به عنوان معیارهای گزینش مورد استفاده قرار گیرد.
Ludlow و Muchow (۶) مزیت صفات مختلفی را که باعث ایجاد مقاومت به خشکی می شوند رتبه بندی کردند. McCreeو همکاران و Johnson و همکاران چارچوبی را تعیین کردند تا بر اساس آن بتوان ارزیابی کرد که چه ترکیبی از صفات در وضعیت آب و رشد گیاه مؤثرند و این می تواند فیزیولوژی را به برنامه جامع بهنژادی گیاهان پیوند بزند. اهمیت تهیه یک روش غربال کردن قابل اعتماد از مدتها قبل درک شده است. روشهای مختلفی که تاکنون برای غربال کردن مورد استفاده قرار گرفته اند عبارتند از:
۱ (استفاده از دماسنج مادون قرمز برای غربال کردن ژنوتیپ هایی که کارایی بالایی در جذب آب دارند.
۲ (پخش نواری علف کش متریبوزین در عمق معینی از خاک و استفاده از ید-۱۳۱ و کشت هیدروپونیک (آب کشتی) تحت تنش ۱۵ بار برای غربال کردن رشد ریشه.
۳ (استفاده از روش سایکرومتری برای ارزیابی تنظیم اسمزی.
۴) استفاده از پورومتر انتشاری برای اندازه گیری میزان هدایت آب برگ.
۵) استفاده از تکنیک مینی رایزوترون برای اندازه گیری میزان نفوذ، توزیع و تراکم ریشه در مزرعه با حداقل دست خوردگی.
۱) عکسبرداری هوایی مادون قرمز برای اندازه گیری میزان به تعویق افتادن آب کشیدگی.
۲) استفاده از تبعیض ایزوتوپهای کربن برای انتخاب ژنوتیپ های دارای راندمان مصرف آب بالا.
۳) از آنجایی که کاهش عملکرد نگرانی اصلی زارع می باشد متخصصین اصلاح نباتات بر عملکرد در شرایط تنش خشکی تاکید می کنند. از یک شاخص تنش خشکی که معیاری از خشکی را بر اساس کاهش عملکرد در شرایط تنش نسبت به شرایط بدون تنش فراهم می نماید برای غربال کردن ژنوتیپ های مقاوم به خشکی استفاده شده است. همچنین، از یک محیط تنش خشکی که بطور مصنوعی ایجاد شده است می توان برای انتخاب ژنوتیپ برتر از داخل یک جمعیت بزرگ استفاده کرد. رتبه بندی ظاهری یا اندازه گیری بلوغ، لوله ای شدن برگ، طول و زاویه برگ، شکل ظاهری ریشه و سایر خصوصیات مورفولوژیکی که ارتباط مستقیم با مقاومت به خشکی دارند نیز مورد توجه قرار گرفته اند.
رهیافت بیوتکنولوژیکی برای مقاومت به خشکی
از روشهای دست ورزی ژنتیکی در گیاهان زراعی برای شناسایی ژنهای مقاومت به خشکی و انتقال آنها استفاده شده است. اساسا" با استفاده از دو روش یعنی روش هدفمند و روش تصادفی می توان گیاهان تراریختی را تولید کرد که دارای مقاومت به خشکی هستند.
روش هدفمند
مسیرهای متابولیکی که شامل سنتز پلی آمین، کربوهیدرات، پرولین، گلیسین بتایین و ترهالوز می باشند با مقاومت به خشکی درارتباطند. در این روش که اساس آن متکی بر وجود اطلاعات لازم درباره واکنش بیوشیمیایی برای سنتز این متابولیتها می باشد ژنهای مربوطه را از منابع مختلف به گیاهان زراعی انتقال می دهند. این رهیافت دقیقتر و روشمند تر است و از احتمال موفقیت بیشتری نسبت به روش تصادفی برخوردار است.
در سالهای اخیر، انتقال ژنهای القاء شده در شرایط تنش خشکی که در مسیرهای بیوشیمیایی مختلفی دخالت دارند، از منابع مختلف به گیاهان حساس به عنوان یکی از روشهای امیدبخش درآمده است. به عنوان مثال، ژن TPS1 که در مخمر یافت شده است فعالیت آنزیم ترهالوز-۶- فسفات سینتتاز را کنترل می کند و در بیوسنتز ترهالوز دخالت دارد. این ژن به توتون منتقل شده است. با اندازه گیری میزان هدررفتن آب از برگهای جداشده یا با تعیین اثر قطع آبیاری بر روی مرگ و آسیب دیدگی برگ معلوم شده است که گیاهان تراریخت دارای مقاومت به خشکی بالایی هستند. ژن دیگری بنام P5CS فعالیت آنزیم پیرولین-۵- کربوکسیلات سینتتاز را که در سنتز پرولین دخالت دارد کنترل می کند و تولید بالای پرولین مقاومت به خشکی را در پی دارد. توتون تراریختی که ِژن P5CS منتقل شده از باقلا را بیش از حد بیان می کرد مقدار بالایی از آنزیم مذکور را نشان داد و میزان تولید پرولین در آن نسبت به گیاه شاهد ۱۸-۱۰ برابر بیشتر بود. تولید بیش از حد پرولین وزن تر ریشه و نمو گل در شرایط خشکی را افزایش داد .
ژن باکتریایی SacB که در Bacillus subtilis یافت می شود فعالیت لوان سوکراز را که در سنتز فروکتان دخالت دارد کنترل می نماید. زمانی که این ژن به توتون منتقل شد گیاه تراریخت حاصله تولید فروکتان نمود و در مقایسه با شاهد از عملکرد بالایی در شرایط خشکی ایجاد شده بوسیله پلی اتیلن گلیکول (PEGبرخوردار بود. ژنهای betAو betB که به ترتیب فعالیت کولین دهیدروژناز و بتایین آلدهید دهیدروژناز را کنترل می نمایند در بیوسنتز گلیسین بتایین دخالت دارند و تجمع گلیسین بتایین مقاومت به خشکی را به گیاه می دهد(٨). Holmstrom و همکاران ژن betB را از باکتری اشرشیا کولی به توتون منتقل کردند.
با در دسترس بودن ژنهای مسئول بیوسنتز پلی آمین مانند ADC (که فعالیت آرژنین دهیدروژناز را کنترل می کند)، ODC (که فعالیت اورنیتین دکربوکسیلاز را کنترل می کند) و SAMDC (که فعالیت اس-آدنوزیل- متیونین دکربوکسیلاز را کنترل می نماید)، اکنون می توان میزان پلی آمین را با استفاده از سازه های همسو و ناهمسوی این ژنها در گیاهان تراریخت دستکاری کرد. گیاهان توتون که با انتقال ژن ODC از مخمر و موش، ژنADC از چاودار و ژنSAMDC از انسان، تراریخت شده اند گزارش گردیده اند اما در مورد اینکه آیا گیاهان تراریخت تحمل به خشکی نشان می دهند یا نه مطالعات کافی صورت نگرفته است. فقط میزان بیان پلی آمینها در گیاهان مورد مطالعه قرار گرفته است. با این وجود، ژن SOD (سوپراکسیداز دیسموتاز) از نخود فرنگی به توتون منتقل شده و گیاهان تراریخت مقاوم به خشکی بدست آمده است.
روش تصادفی
در این روش که روشی غیر مستقیم برای بدست آوردن ژن مورد نظر می باشد تغییراتی که در فرایند سلول و بیان ژن در اثر تنش خشکی ایجاد می شود مورد تجزیه و تحلیل قرار می گیرد. ژنهایی که تحت تنش خشکی بیان می شوند و هیچ نقش خاصی برای آنها پیدا نشده است شناسایی شده اند. اگرچه این روش از دقت کمی برخوردار بوده و احتمال موفقیت در آن پایین است اما می تواند حتی موقعی که هیچ اطلاعات قبلی درباره ژن یا فراورده ژنی وجود ندارد کارساز باشد. بنابراین، به نظر میرسد که روش تصادفی به علت وجود اطلاعات کافی درباره تغییرات بیوشیمیایی در سلول، انتخاب بهتری برای مقاومت به خشکی می باشد. به عنوان مثال، برنج تراریخت حامل ژن hva1 جو که با این روش تولید شده مقاومت به خشکی نشان داده است (٨). ژن hva1 سنتز یک گروه سه پروتئینی LEA (پروتئینهای فراوان در اواخر جنین زایی) را که در طی دوره تنش در اندامهای رویشی انباشته می شوند کنترل می کند.
روش کشت بافت نیز دارای قابلیت ایجاد تنوع سوماکلونال برای مقاومت به خشکی می باشد اما مشکلاتی که در انتخاب واریانت مورد نظر وجود دارد استفاده از این روش را محدود می سازد.
انتخاب به کمک نشانگر
در اغلب برنامه های اصلاحی، اصلاح ژنتیکی مقاومت به خشکی از طریق انتخاب برای عملکرد صورت می گیرد ولی به علت وراثت پذیری پایین عملکرد تحت شرایط تنش و تغییرات زمانی و مکانی در محیط مزرعه، روشهای سنتی اصلاح نباتات از سرعت کندی برخوردار بوده است. نشانگرهای مولکولی مانند چندشکلی در طول قطعات حاصل از برش آنزیمی DNA (RFLP)، DNA چندشکل حاصل از تکثیر تصادفی (RAPD) و آیزوزایم ها موجب افزایش کارایی در تهیه ژنوتیپ های مقاوم به خشکی می گردد زیرا بیان آنها مستقل از اثرات محیطی است.
بعد از شناسایی نشانگرهای مولکولی که با عملکرد یا سایر صفات مورفولوژیکی مرتبط با مقاومت به خشکی درارتباطند می توان از آنها به عنوان معیارهای گزینش برای مقاومت به خشکی استفاده کرد. انتخاب به کمک نشانگر در تهیه ژنوتیپ های مقاوم به خشکی به کار رفته است. بطور مثال، نشانگرهای RFLP مرتبط با تنظیم اسمزی، دوام سبزینگی و صفات ریشه شناسایی شده است.
محدودیت ها
پژوهشگران تعداد بسیار زیادی صفت مرتبط با مقاومت به خشکی را پیشنهاد کرده اندکه می توان از آنها در انتخاب برای مقاومت به خشکی استفاده کرد و تنوع ژنتیکی نیز برای آنها در گیاهان مختلف وجود دارد اما میزان موفقیت در دستیابی به ژتونیپ های مقاوم به خشکی پایین است. این عدم موفقیت احتمالا ناشی از مجموعه ای از عوامل زیر است):
۱) عدم وجود یک رهیافت چند بخشی برای درک واکنشهای تلفیقی گیاه به تنش خشکی و پیچیده بودن کنترل ژنتیکی مکانیزم های مختلف مقاومت به خشکی.
۲) عدم وجود روشهای غربال کردن دقیق و تکرار پذیر.
۳) درباره صفات قابل اعتمادی که بتوان به عنوان شاخصهای مقاومت به خشکی استفاده کرد و همچنین معیارهای گزینش و تاثیر محیط بر روی صفات مرتبط با خشکی اطلاعات کاملی وجود ندارد.
۴) به نظر می رسد سازگاری های مختلفی که موجب کاهش هدر رفتن آب در شرایط تنش خشکی می شوند دارای اثر منفی بر روی عملکرد هستند. به عنوان مثال، لوله ای شدن برگ و بسته شدن روزنه ها هر دو آب گیاه را حفظ می کنند اما میزان جذب نور و ورود دی اکسید کربن به درون برگ را محدود می سازند و اینها به نوبه خود عملکرد را کاهش می دهند. بنابراین، این صفات برای اصلاح مقاومت به خشکی مفید نیستند.
۵) خشکی جذب عناصر غذایی را کاهش می دهد و با تنش گرمایی و در ارتفاعات با تنش سرما ارتباط دارد. این ارتباط برنامه اصلاحی را پیچیده تر می کند.
۶) علی رغم اهمیت راندمان مصرف آب و وجود تنوع ژنتیکی برای این صفت، انتخاب برای راندمان مصرف آب بالا غالبا با کاهش میزان رشد گیاه همراه است. در اغلب موارد، گیاهان راندمان مصرف آب را از طریق کاهش تعرق افزایش می دهند. از آنجایی که تولید ماده خشک رابطه قوی با تعرق کل دارد هر کاهشی در تعرق منجر به کاهش میزان رشد گیاه می گردد.
۷) محدودیت بکارگیری مهندسی ژنتیک در این زمینه به نبود اطلاعات کافی درباره مناسب ترین ژن برمی گردد.
راهکارهای آینده
برنامه های تحقیقاتی آینده برای مقاومت به خشکی باید راهکارهای زیر را مدنظر قرار دهد:
۱) هرچه سریعتر لازم است ذخایر ژنتیکی گیاهان برای صفات مرتبط با مقاومت به خشکی مورد جستجو قرار گیرد و خصوصیات آنها شناسایی شود تا امکان انتقال صفات مطلوب از طریق روشهای سنتی اصلاح نباتات یا بیوتکنولوژی فراهم گردد.
۲) یک صفت تنها نمی تواند مقاومت به خشکی را در حد رضایت بخشی به گیاه اعطا نماید. بنابراین، هدف برنامه اصلاحی برای مقاومت به خشکی باید جمع آوری تعدادی صفت مرتبط با مقاومت به خشکی در یک گیاه باشد.
۳) دست ورزی ژنتیکی فقط توانسته گیاهانی را ایجاد نماید که در تمام موارد تنها با یک ژن تراریخت شده اند. بنابراین، لازم است تعداد زیادی ژن مختلف را که مسئول بیوسنتز مواد محلول سازگار و اسمولیت های مختلف مرتبط با مقاومت به خشکی هستند بطور همزمان به یک گیاه زراعی منتقل کرد.
۴) درک بهتر اساس ژنتیکی مقاومت به خشکی از طریق تکنیک RNA نا همسو باید مورد توجه قرار گیرد، تکنیکی که در آن اثر میزان بیان آنزیمها یا پروتئینهای مختلف در مسیرهای بیوشیمیایی مختلف بر روی مقاومت به خشکی مورد مشاهده قرار می گیرد.
۵) بعضی از پروتئینها مانند LEA، دهیدرین و غیره در شرایط تنش خشکی سنتز شده و در بافتهای گیاهی انباشته می شوند. می توان با مقایسه ژنوتیپ های حساس و متحمل به خشکی از نظر پلی پپتیدهای مختلفی که در پاسخ به تنش خشکی تولید می شوند یک نشانگر پروتئینی را شناسایی کرد که می تواند به تولید گیاهان تراریخت مقاوم به خشکی کمک نماید.
۶) یک رهیافت چند بخشی که شامل ژنتیک، بیوشیمی، بیوتکنولوژی، فیزیولوژی، اصلاح نباتات و زراعت می باشد برای ارزیابی واکنش پیچیده و تلفیقی گیاهان به تنش خشکی و تهیه ژنوتیپ های برتر مقاوم به خشکی مناسب خواهد بود.
گرسیوز
|
نگه کرد گرسیوز نامدار |
|
سواران ترکان گزیده هزار |
|
خنیده سپاه اندرآورد گرد |
|
بشد شادمان تا سیاووش گرد |
|
سیاوش چو بشنید بسپرد راه |
|
پذیره شدش تازیان با سپاه |
|
گرفتند مر یکدگر را کنار |
|
سیاوش بپرسید از شهریار |
|
به ایوان کشیدند زان جایگاه |
|
سیاوش بیاراست جای سپاه |
|
دگر روز گرسیوز آمد پگاه |
|
بیاورد خلعت ز نزدیک شاه |
|
سیاوش بدان خلعت شهریار |
|
نگه کرد و شد چون گل اندر بهار |
|
نشست از بر بارهی گام زن |
|
سواران ایران شدند انجمن |
|
همه شهر و برزن یکایک بدوی |
|
نمود و سوی کاخ بنهاد روی |
|
هم آنگه به نزد سیاوش چو باد |
|
سواری بیامد ورا مژده داد |
|
که از دختر پهلوان سپاه |
|
یکی کودک آمد به مانند شاه |
|
ورا نام کردند فرخ فرود |
|
به تیره شب آمد چو پیران شنود |
|
به زودی مرا با سواری دگر |
|
بگفت اینک شو شاه را مژده بر |
|
همان مادر کودک ارجمند |
|
جریره سر بانوان بلند |
|
بفرمود یکسر به فرمانبران |
|
زدن دست آن خرد بر زعفران |
|
نهادند بر پشت این نامه بر |
|
که پیش سیاووش خودکامه بر |
|
بگویش که هر چند من سالخورد |
|
بدم پاک یزدان مرا شاد کرد |
|
سیاوش بدو گفت گاه مهی |
|
ازین تخمه هرگز مبادا تهی |
|
فرستاده را داد چندان درم |
|
که آرنده گشت از کشیدن دژم |
|
به کاخ فرنگیس رفتند شاد |
|
بدید آن بزرگی فرخ نژاد |
|
گرسیوز | |
|
کیستی : |
شخصیت شاهنامهای |
|
تبار : |
|
|
منصب : |
فرماندهٔ سپاه توران |
|
نام اَوستایی : |
کَرِسیوَزدَ |
|
نام خانوادگی : |
وَگیرَگان |
|
جنسیت : |
مرد |
|
پدر او : |
|
|
برادران : |
|
|
کار مهم : |
دسیسهٔ کشتن سیاوش |
گَرسیوَز وَگیرَگان در شاهنامه فردوسی فرمانده سپاه توران است. او برادر کوچکتر افراسیاب و پسر پشنگ است. افراسیاب دو برادر داشت یکی اَغریرَث و دیگری گرسیوز. اغریرث در داستان نقشی مثبت و گرسیوز نقشی منفی دارد.
گرسیوز در حماسهٔ بانوگشسبنامه نیز نقش دارد.
نام
این نام در اوستا کَرِسیوَزدَ آمده است و به معنای کم استقامت میباشد (کَرسیه= لاغر و اندک، وَزدَه=نیرو و پایداری).[۱] نام خانوادگی وگیرگان برای او در کتاب دینکرد آمده. نام وگیرگان منسوب به کوهی به نام وگیر است که مقر افراسیاب بودهاست.[۲]
کارها
او به افراسیاب نزدیک است و افراسیاب با او رایزنی و رازگویی میکنند. معاشرت نزدیک سیاوش، شاهزادهٔ ایرانی با افراسیاب تورانی، رشک گرسیوز را برمیانگیزد و او سرانجام موجب کشته شدن سیاوش میشود. کیخسرو شاه ایران و پسر سیاوش او را به کینخواهی پدرش کشت.[۱]
در شاهنامه گرسیوز در آغاز تصویر مثبت دارد ولی در ادامه داستان از او با عناونی «گرسیوز دامساز»، «گرسیوز فریبكار» و «حیلهساز» یاد میشود.[۱] صفتهای دیگر او در شاهنامه عبارتاند از تیغزن و شیرگیر و در بانوگشسبنامه از او با صفات تیزچنگ و بدفعال یاد شده.
در آغاز کتاب هفتم دینکرد درباره او نوشته: «آمد به کیخسرو سیاوخشان که با آن افراسیاب تور جادو و خویشاوند نابکار او گرسیوز وگیرگان و بسیاری دیگر میرانندگان بدتر جهان را شکست داد و زد.»[۳]
افراسیاب در مرحلهای برای اعلام آشتی به سیاوش گرسیوز را با اسبان و هدایای گرانبها به همراهی دویست تن از نخبۀ سپاهیان نزد او فرستاد و پیشنهاد صلح کرد. سیاوش و رستم پس از یک هفته رایزنی این پیشنهاد را پذیرفتند.[۴]
در داستان بیژن و منیژه دستگیری بیژن به فرمان افراسیاب و توسط گرسیوز انجام میگیرد.
ذرت خوشه ای
نوعی از حبوب غذائی بومی آفريقا و هند و بالای آن گاه به چهار تا پنج گز رسد
ذرت خوشهای قندی دارای ساقهای آبدار و شيرين میباشد که به منظور سيلو و تغذيهٔ دام کشت میشود. اين گياه خودگشن است. برگ آن از ذرت معمولی کوچکتر ولی بريده بريده است. اگر در معرض دمای کمتر از ۹٫۵ قرار بگيرد ممکن است انباشت اسيد پروسيک در بافتهای آن به سطحی برسد که برای چهارپايان سمی است. همچنين خشکی طولانی نيز باعث افزايش آن میگردد. ذرت خوشهای، گياهی است روز کوتاه، کمينهٔ جوانه زنی آن در دمای ۱۲ تا ۱۵ درجه میباشد و در روزهای کوتاه به گل مينشيند.
در برابر خشکی بسيار مقاوم است و قدرت فعاليت ريشه آن در جذب آب بيش از دو برابر ذرت است. در مناطقی که فصل رشد کوتاه و روزها بلند است از گونهٔ زودرس و در مناطقی که فصل رشد طولانی و روزها بسيار کوتاه هستند از گونهٔ ديررس استفاده ميگردد. بر عکس ديگر غلات هنگام جوانه زنی تنها يک ريشهٔ بذری توليد ميکند. هرچه دانه رسيدهتر باشد ميزان ماده خشک بيشتر و اسيد پروسيک کمتر است. برگهای بوتهٔ جوان خوشه و سوداتگراس حاوی اسيد پروسيک میباشد ولی سيلو شدهٔ آن چنين نيست.
مقاومترين غله به خشكی است و آنرا شتر غلات هم ناميده اند. بهترين کيفيت علوفه و نيز سيلو، زمانی است که دانهها در مرحلهٔ شيری باشند. برای توليد شاخ و برگ بيشتر به کودهای ازته نياز دارد و چون زمين را فقير میکند لذا بايد در تناوب به ذراعت بعدی کود کافیی داد. [۲]
سورگوم زراعی با نام علمی Moench (L) Sorghum bicolor گیاهی از خانواده غلات است که در ایران ذرت خوشهای نامیده میشود. با توجه به شباهت ظاهری این گیاه با ذرت و ارزن که باعث شده آمار سطح کشت این دو گیاه با هم مخلوط شود، برای ایجاد تمایز میان این دو از اسم سورگوم که یک اسم جهانی برای این گیاه است استفاده میشود.
سورگوم از نظر اهمیت در بین غلات در دنیا بعد از گندم، برنج، ذرت و جو در مقام پنجم قرار دارد.
آمار سطح زیر کشت سورگوم در ایران در سال ۱۳۶۵ فقط شش هکتار گزارش شده که در سال ۱۳۸۲ به حدود ۴۰ هزار هکتار افزایش یافتهاست.
تودههای زراعی بومی سورگوم در ایران در مناطق جنوب خراسان، سیستان، کرمان، اصفهان، یزد، گیلان، مازندران و بنادر جنوبی بطور پراکنده وجود دارد.
سازگاری در ایران
سورگوم با شرایط آب و هوایی ایران به ویژه مناطق گرم و خشک و معتدل آن سازگاری خوبی دارد. این گیاه در سنجش با ذرت دارای سیستم ریشهای افشان خیلی وسیع است که در حجم زیادی از خاک نفوذ کرده و رطوبت بیشتری جذب میکند. این گیاه برای رشد و نمو نسبت به سایر غلات به آب کمتری نیاز دارد. چنان که آزمایشات نشان دادهاست که سورگوم برای تولید یک کیلوگرم ماده خشک به ۳۳۲ لیتر آب نیاز دارد در صورتی که این نیاز آبی برای ذرت ۳۶۸ لیتر، جو ۴۳۴ لیتر و گندم ۵۱۴ لیتر است. رشد سورگوم در دوره خشک در مواجه با کم آبی متوقف میشود و با شروع بارندگی یا آبیاری، دوباره شروع میشود. این گیاه رطوبت بیش از حد را نیز بهتر از سایر غلات منهای برنج تحمل میکند. در مقایسه با ذرت که درصورت زیادی آب در پای بوته از بین میرود، سورگوم در چنین شرایطی، به رشد خود ادامه میدهد. سورگوم تحمل خوبی نسبت به شوری آب و خاک، خشکی و مسمومیت آلومینیوم دارد.
موارد مصرف سورگوم
موارد مصرف دانه سورگوم به موازات مصارف ذرت و جو است، از آن به عنوان غذای انسان و تهیه خوراک برای دام و طیور و همچنین در صنایع نشاسته و الکل سازی استفاده میشود. ترکیبات شیمیایی دانه سورگوم بسته به ارقام مختلف، متفاوت است. میزان پروتئین آنها از ۸ تا ۱۶ درصد تغییر میکند و ارقام تجارتی دارای ۱۰ تا ۱۳ درصد پروتئین است مقادیر لیزین، میتونین، فیبر خام، خاکستر و فسفر سورگوم به طور متوسط مشابه ذرت است.
مصرف در بعد مکانی
سورگوم در کشورهای پیشرفته به عنوان خوراک دام و طیور مورد استفاده قرار میگیرد.
این دانهها دارای مادهای به نام تانن هستند که کمتر از دو درصد آن یک عامل مثبت در تغذیه به حساب میآید. میزان تانن ارقام موجود در کشور کمتر از یک درصد و در ارقام اصلاح شده در ایران کمتر از ۵/۰ درصد است. امروزه تانن در تغذیه نشخوارکنندگان باعث جذب بیشتر پروتئین و نشاسته خوراک دام میشود و به عنوان یک آنتی اکسیدان و آنتی بیوتیک طبیعی عمل میکند و ضمن پیشگیری از عارضه اسیدوز باعث افزایش تولید شیر، درصد چربی، پروتئین و لاکتوز شیر میشود. زمانی که ۵۰ درصد خوراک ماکیان از سورگوم دانهای تشکیل شده باشد در مرغهای گوشتی باعث بهبود صفات کیفی نظیر کاهش چربی محوطه بطنی و افزایش کیفیت گوشت میشود. عملکرد سورگوم دانهای بسته به ارقام مختلف، حاصلخیزی خاک، شرایط آب و هوایی از ۱۱-۲ تن در هکتار متغیر است و عملکرد ارقام اصلاح شده در ایران ۱۱- ۵ تن در هکتار است.
برداشت و مصرف
زمانی که دانه سورگوم میرسد و آماده برداشت میشود، ساقه و برگ این گیاه هنوز سبز و آبدار است که با توجه به کمبود علوفه در ایران از آنها میتوان به عنوان علوفه استفاده کرد. در کشورهای پیشرفته این بقایا را با ماشینآلات خرد کرده و به خاک بر میگردانند که ضمن افزایش کیفیت خاک از فرسایش بادی و آبی نیز جلوگیری به عمل میآورند.
سورگوم علوفهای چنانچه از نام آن بر میآید برای مصرف علوفه به صورت سیلو، چرای مستقیم و یا برداشت به صورت علوفه تر و یا خشک برای مصرف در خارج مزرعه مورد استفاده قرار میگیرد. واریتههای با ظرفیت تولید بالا در شرایط آب و هوایی مناسب در ایران در ۳-۲ تن و در چین ۱۰۰ تا ۱۵۰ تن در هکتار علوفه تر تولید میکنند که ۲۵-۲۰ درصد آن ماده خشک است. میزان پروتئین سورگوم علوفهای بسته به ارقام مختلف متفاوت است و از ۹ تا ۱۸ درصد تغییر میکند. سورگوم علفی دارای ساقههای نازک است که منهای سیلو کردن سایر موارد مصرف سورگوم علوفهای را دارا است.
در ساقه اکثر سورگومها مقداری قند وجود دارد و میزان قند در ساقه سورگوم شیرین بیشتر از سایر سورگومهاست این موضوع در طی سالیان دراز به اثبات رسیده است اما به صورت کریستال در آوردن قند آن هنوز مشکلات زیادی دارد. اما از شیره آن میتوان به صورت شربت در کمپوت سازی، نوشابه سازی، داروسازی و سایر صنایع استفاده کرد. مزیت این شربت در کمپوتسازی در این است که چون به راحتی بلورین نمیشود بنابراین شکرک نمیزند. کشتوکار سورگوم شیرین در مقایسه با نیشکر و چغندر قند خیلی راحت و کم هزینه، ولی استحصال قند از آن در مقایسه با آنها خیلی پرهزینه است.
علفهای هرز ذرت خوشه ای
دم روباهي باريك
Alopecurus myosuroides
Foxtail grass(Slender foxtail)
از علفهاي هرز يكساله با ساقه هاي باريك است.از خانواده poaceae كه توسط بذر تكثير مي يابد .با ساقه هايي كه درازاي ان تا60سانتي متر ميرسد و به صورت توده هاي نزديك به هم ديده ميشوند.در انتهاي هرساقه، سنبله باريك و طويل ريشكدار به طول 3-10سانتيمتر قرار دارد.گل اذين از نوع Spike و متراكم ،شبيه به دم روباه است. برگها داراي ليگول غشايي و محل اتصالشان به ساقه متورم است
گلومهاي آن نوك تيز و مايل به سفيد است كه سه رگبرگ سبزرنگ،ان را از گلوم ساير گندميان متمايز ميكند،پوشينه هاي دم روباهي باريك،به درازاي گلوم آن است و ريشكهاي ان نيز خميده هستند.در محل غلاف،زبانك بزرگ غشايي ديده ميشود.
از گونه هاي ديگر دم روباهيA.agrestis,A.pratensisرا ميتوان نام برد.
دم روباهي از علفهاي هرز مزارع گندم،جو،بادام زميني،ذرت،باغهاي سبزي و صيفي و نيز زمينهاي ايش است.
روشهاي کنترل:
در مزارع غلات از علفكش فلم پروپ-ام-ايزوپروپيل(EC20%) (سافیکس بی دیلیو) به ميزان3ليتر در هكتار در مرحله2-4برگي علف هرز استفاده ميشود
بو مادران
Achillea Spp
Western yarrow
بومادران گياهي است معطر و دوساله،از خانواده Asteraceae (Composite) كه از طريق بذر و ريزوم تكثير مي يابد.با ساقه هايي به ارتفاع30تا60سانتي متر،پوشيده از كركهاي ظريف و ريزي كه از ريزوم هاي رونده ضعيفي به وجود مي ايند.برگهاي پرمانند،نرم و نيزه اي شكل،با بريدگي هاي متعدد و باريك به فواصل مساوي از يكديگر،روي محور ساقه قرار دارند.
گل اذين به صورت كلاپرك كه مجموع انها گل اذين ديهيم را در انتهاي ساقه و انشعابات ان به وجود مي اورد.قطعات گل 5تايي است.تعداد پرچم ها5عدد و مادگي از دو برچه تشكيل شده ،مجموعه گلها به رنگ زرد مشاهده مي شود،ميوه فندقه،بذر كوچك و مسطح،بيضي شكل به رنگ سفيد مايل به خاكستري به طول تقريبي 2ميليمتر مي باشد.بومادران بويي زننده و تند دارد و به عنوان گياهي دارويي مورد استفاده قرار مي گيرد.
از گونه هاي ديگر ان كه رفتار علف هرزي دارند شاملA.lanulosa ,A.santolina ,Amicrantha مي باشد.
بومادران از علفهاي هرز مزارع،گندم،جو،توتون، پنبه،چغندرقند، سبزي و صيفي و باغهاي ميوه و زمينهاي باير محسوب مي شود
مقدمه
جو یکی از غلات مهم در جهان است که به عنوان غذا مورد استفاده بشر و حیوانات قرار می گیرد. این گیاه علفی متعلق به خانواده گرامینه (گندمیان) می باشد. و دارای انواع زراعی و وحشی می باشد.
گونه های زراعی جو سه دسته هستند: شش پر، دوپر و جوی چهار پر. این گیاه نسبت به گندم سازگارتر بوده و در همه نواحی معتدل و در بسیاری از نقاط سردسیر هم به عمل می آید. در دیم زارهایی که رطوبت خاک و بارندگی برای رشد گندم ناکافی باشد، جو می تواند جایگزین آن شود.
ساقه جو مانند دیگر گندمیان، توخالی بوده و ارتفاع آن بر حسب شرایط محیطی، بین 30 تا 120 سانتی متر است. این ساقه بین 5 تا 10 برگ دارد که به طور متناوب در دو طرف ساقه قرار گرفته اند. برگ جو هم مانند دیگر گندمیان، دارای غلاف، پهنک، زبانک و گوشواره است. غلاف علاوه بر انجام فعالیت فتوسنتزی، در استحکام ساقه هم نقش دارد.
در امتداد ساقه، محور سنبله قرار دارد. سنبله از مجموع سنبلچه ها و هر سنبله از یک گلچه تشکیل یافته است. دانه، داخل گلچه تشکیل می گردد. پوشینک های داخلی و خارجی گلچه، هنگام رسیدن دانه به آن چسبیده و حتی موقع برداشت هم جدا نمی شوند. زمانی که دانه به تدریج رطوبت خود را از دست می دهد، حجم آن کم شده و پوشینک داخلی چین می خورد. میزان این چین خوردگی، مرغوبیت محصول جو را نشان می دهد، بدین ترتیب که هر چه چین ها بیشتر باشد به همان اندازه پوشینک نازک تر است و در نتیجه بهتر می توان از این نوع دانه جو در صنایع تخمیر استفاده نمود (چون نرم تر است).
تاریخچه
منشاء واقعی جو هنوز ناشناخته است. اما بسیاری از محققین، خاستگاه این گیاه را کوه های زاگرس در غرب ایران، آناتولی جنوبی و فلسطین می دانند. بر پایه نظریه والیوف، مبداء جوی ریشک دار و غلاف دار، کشور اتیوپی و شمال آفریقا و مبداء نوع بدون ریشک، ریشک کوتاه و کلاهک دار، آسیای جنوب شرقی، به ویژه چین، ژاپن و تبت است.
جو برای تعداد زیادی از مردمان نواحی سردسیر و خشک (به خصوص خاور میانه و شمال آفریقا) منبع غذایی مهمی به شمار می رود. البته امروزه بیشتر برای خوراک دام و تهیه ی فراورده های تخمیری از این گیاه استفاده می کنند.
سازگاری گیاه جو
جو یکی از سازگارترین غلات است که در شرایط آب و هوایی مساعد، در خاک حاصلخیز که قابلیت نگهداری آب در آن زیاد باشد، و همچنین در خاک هایی که پ.هاش آنها بین 7 تا 8 باشد تولید می شود. این گیاه نسبت به گندم در برابر خشکی مقاوم تر است و بنابراین در آب و هوایی که آب، سبب محدود کردن تولید غلات می شود، جو می تواند بیشترین محصول را تولید کند. در شرایط دیم هم عملکرد جو بهتر از گندم و چاودار می باشد. تولید جو در همه نوع زمینی با بارندگی سالیانه 200 تا 250 میلیمتر امکان پذیر است.
جو نسبت به دمای بالا (بیش از 32 درجه سانتی گراد) مقاوم است. اما در شرایط آب و هوای مرطوب، در برابر دمای بالا بسیار حساس است.
دانه جو نسبت به گندم برای جوانه زدن به رطوبت کمتری نیاز دارد. در مواردی که پس از جوانه زدن دانه، گیاه به علت کمبود رطوبت خشک شود، با فراهم شدن شرایط مساعد رطوبتی، گیاه رشد مجدد خود را با شدت بیشتری آغاز می نماید.
جو از لحاظ مقاومت به سرما، نسبت به گندم در ردیف پایین تری قرار می گیرد. بنابراین به نظر می رسد که کشت جوی پاییزه در مناطق سردسیر چندان اطمینان بخش نباشد.
در مقایسه با سایر غلات، جو نسبت به شوری خاک، چه در مرحله جوانه زنی و چه در مراحل دیگر مقاوم تر است.
انواع جو
در خصوص واکنش به دما، سه نوع جو موجود است:
1. نوع بهاره که به سرما حساس بوده و بنابراین در بهار کاشته می شود.
2. نوع پاییزه که در فصل پاییز کاشته می شود و تا فرا رسیدن فصل بهار، سنبله تولید نمی کند.
3. نوع حد واسط که نسبت به سرما مقاومت کمتری داشته و در نقاط نسبتاً گرمسیر در هر دو فصل بهار و پاییز کشت می شود.
جوی بهاره و پاییزه را نمی توان همچون گندم بهاره و پاییزه که تفاوت دانه آنها کاملاً مشخص است، تشخیص داد.
جوی پاییزه در بسیاری از نواحی نیمه خشک که بارندگی آنها غالباً در فصول گرم سال (بهار و تابستان) انجام می شود، تقریباً 10 تا 14 روز زودتر از گندم پاییزه کاشته می شود. جوی بهاره را هم تا آنجا که امکان دارد باید زودتر کاشت. البته جو نسبت به سرمای بهاره (دمای زیر صفر) نسبت به گندم حساس تر است. کشت زودتر جوی بهاره سبب می شود که محصول جو قبل از فرا رسیدن ایام گرم و خشک، برسد. تأخیر در کشت جو سبب لاغری دانه، عملکرد پایین و... می شود.
کود
جو هم مانند دیگر گیاهان خانواده گندمیان، مراحل رشد مختلفی دارد که زمان هر مرحله تحت تأثیر عوامل مختلف قرار می گیرد. یکی از عوامل مؤثر در رشد گیاه، خاک و البته استفاده از کود می باشد. نیازهای کودی جو مشابه گندم است. پایین بودن میزان نیتروژن و فسفر و تا حدی پتاسیم خاک، می تواند عملکرد جو را محدود نماید. البته استفاده از کود به منظور تولید حداکثر محصول، باید بر مبنای آب قابل مصرف برای گیاه باشد. همچنین برای تولید جو به عنوان خوراک دام، میزان کود مصرفی معمولاً زیادتر از کود مصرفی برای گیاه جو است که برای مصارف دیگر از جمله تهیه ی فراورده های تخمیری کشت می شود. معمولاً مصرف 50 تا 60 کیلوگرم نیتروژن در هر هکتار، می تواند عملکرد جو را به نحو مطلوبی افزایش دهد.
آفات و بیماری های جو
جو نسبت به بیماری های قارچی فوق العاده حساس است. سیاهک یکی از مهم ترین این بیماری هاست.
· سیاهک پنهان جو، عامل قارچی به نام U.hordei می باشد. در این بیماری، توده ای از اسپورهای سیاه رنگ جای محتویات دانه را می گیرد. اسپور بیماری در سطح دانه یا داخل خاک قرار می گیرد. زمانی که بذر جوانه می زند، اسپور هم جوانه زده و به گیاه جوان حمله می نماید. شیوع این بیماری در خاک های اسیدی بیش از خاک های خنثی یا خاک های آهکی (پ.هاش بیشتر از 7) است.
· سیاهک آشکار، به وسیله ی قارچی به نام U.gnuda ایجاد می شود. در این بیماری، توده ای از اسپورهای سیاه رنگ، جای همه اعضای گل را می گیرند. پس از متلاشی نمودن گل، اسپور سیاهک با باد و باران پخش شده و به تمام کلاله های بوته های آلوده نشده هم می رسد و انتشار می یابد.
زنگ ساقه، زنگ برگ و زنگ های نواری هم از دیگر بیماری های قارچی هستند که به خصوص در نقاط گرم و مرطوب زیان های فراوانی به جو وارد می کنند.
جو نسبت به حمله سفیدک که عامل آن Erysiphia grarninis است بسیار حساس است. این بیماری، معمولاً در خاکی که میزان نیتروژن آن بالا باشد، بیشتر انتشار می یابد. البته گرد گوگرد می تواند این بیماری را کنترل نماید.
از سایر بیماری های جو می توان پوسیدگی ریشه، لکه سیاه، سوختگی و انواع بیماری های ویروسی را نام برد.
برداشت جو
معمولاً جو را هنگامی که رطوبت دانه بین 30 تا 40 درصد باشد، برداشت می کنند. در این میزان رطوبت، دانه ها چاق تر است. با توجه به این که میزان رطوبت برای انبار کردن دانه بالاست، باید به طرق مصنوعی دانه را خشک نمود تا از گرم شدن و فساد بعدی دانه جلوگیری به عمل آید.
موارد مصرف جو
از جو استفاده های مختلفی می کنند. بخش قابل توجهی از آن را به صورت درسته یا نیم کوب به عنوان خوراک دام مورد استفاده قرار می دهند. ارزش غذایی دانه جو به دلیل غلاف و پوشینک های داخلی و خارجی غیر مغذی آن، تقریباً 5 درصد از دانه ذرت کمتر است. البته امروزه سعی می شود با اصلاح نژاد جو، انواعی با میزان بیشتری پروتئین و اسید آمینه های ضروری به خصوص لیسین تولید شود.
از جو در پخت و پز برای تهیه ی انواع نان و سوپ استفاده می شود. برای تهیه ی برخی غذاهای کودک هم از جو استفاده می کنند. بعضی انواع جو را پوست کنده یا نیم کوب می کنند و پس از جدا نمودن غلاف، در تهیه سوپ به کار می برند.
در صنعت نانوایی ایران از جو بسیار کم استفاده می کنند. در صورتی که مهندسین ژنتیک بتوانند ارزش غذایی این دانه خوراکی را بهبود بخشند، جو می تواند به عنوان یکی از غلات مهم همچون گندم در تهیه ی انواع غذاها و نان ها به کار رود.
در برخی کشورها از جو در فراورده های تخمیری استفاده می شود. مثلاً از دانه جو برای تهیه ی مالت استفاده می نمایند. معمولاً از دانه های چاق و یکنواخت و همچنین دانه هایی که شکسته نباشند و پوست آنها کنده شده باشد، در تهیه ی این فراورده ها استفاده می کنند. همچنین روشن بودن رنگ دانه، داشتن قدرت جوانه زنی سریع و یکنواخت و همچنین داشتن 10 تا 13 درصد پروتئین در دانه، از جمله خصوصیات جوهایی محسوب می شود که در تهیه ی این گونه فراورده ها از آنها استفاده می شود.
علفهای هرز جو
خارشتر
Alhagi psuedalhagi
Camelthorn
خارشتر گياهي است علفي و چند ساله از خانوادهLeguminosae،تكثير ان توسط بذر و ريزوم صورت ميگيرد.داراي شاخه هايي انبوه و در هم، ساقه سبز رنگ است. اين گياه برگهاي ساده اي دارد كه2تا4ميليمتر عرض و2تا10 ميليمتر طول دارند. برگها به شكل بيضي كشيده هستند كه در پايه خارها قرار گرفته اند.گلها به طور منفرد يا دوتايي در طرفين شاخه ها قرار دارند. كاسه گل تقريبا 2 ميليمتر طول دارد و بدون كرك است.دندانه هاي كاسه نوك تيزوتخمدان نيز بدون كرك است. ميوه اين گياه باريك و بدون كرك بوده سطح رويي ان صاف و سطح زيرش بند بند است.رنگ گلها صورتي يا صورتي مايل به بنفش است. دمگل 1 تا 3 ميليمتر است.
اين علف هرز به شوري مقاوم بوده و بيشتر در نواحي خشك وبياباني وجود دارد گوسفندان و شتر از آن تغذيه ميكنند.از گونه هاي ديگر ان ميتوان A.persarum را نام برد.
خارشتر از علفهاي هرز مزارع پنبه،نيشكر،چغندرقند،گندم، جو،سبزي و صيفي است.
روشهاي کنترل:
خارشتر را ميتوان با سم پاشي با علفكش تو-فور-دي پس از سبز شدن در مزارع غلات به نسبت 5 ليتر در هكتار كنترل كرد. مصرف علفكشها قبل از سبز شدن تاثير چنداني در كنترل اين گياه ندارد
بيدگياه(علف گندمي
Agropyrum repens
Quack grass
گياهي است علفي چندساله و ريزوم دار كه مبارزه با ان كار چندان ساده اي نيست.از خانواده Poaceae كه از طريق بذر و ريزوم تكثير مي يابد.اين ريزوم ها تا اندازه اي آبدار،سفيد مايل به زرد با انتهاي تيز و مقاوم بوده وقادر به نفوذ در خاكهاي سخت و حتي در غده ها و ريشه هاي گياهان ديگر است.
بيد گياه داراي گوشك كوچك بوده و در مرحله رويشي، برگهايش در نزديك نوك ، به صورت افقي مچاله شده است. گل آذين آن از نوع سنبله است و سنبلچه هاي آن به صورت دو رديف بلند مانند تخت خوابيده، بر روي ساقه قرار گرفته اند.هر سنبلچه از دو پوشينه يا گلوم بزرگ و مشخص تشكيل شده است.
ساقه ها راست ،منشعب،برگها به صورت شل و ول(Lax leaves) و سبزرنگند. در قسمت بالايي برگها تعداد كمي وجود دارد و داراي ليگول غشايي است كه روي هم قرار گرفته اند(Clasping)و داراي4-7گلچه كه در هر خوشه چه قسمتهاي پهن در مقابل محور خوشه قرار گرفته اند.
بيد گياه از علفهاي هرز مزارع گندم و جو ميباشد.
در مورد مبارزه با اين گياه كار تحقيقاتي انجام نشده و در حال حاضر وجين دستي انجام ميشود
مقدمه
ذرت با نام علمی Zea mays یکی از غلات گرمسیری و از خانواده گندمیان (گرامینه) متعلق به گیاهان تک لپه میباشد. گیاه ذرت ، تنها غلهای است که در کشور مکزیک و گواتمالا تکامل یافته است. ذرت پرمحصولترین غله دنیا به حساب میآید و از لحاظ مقدار تولید ، پس از گندم و برنج قرار میگیرد. امروزه ذرت در تغذیه بسیاری از مردمان دنیا نقش اساسی دارد.
مشخصات گیاه شناسی
ذرت گیاه تک لپهای ساقه بلندی است. برگهای آن بطور متناوب و به صورت افتاده در دو طرف ساقه قرار گرفتهاند. زاویه بین برگ و ساقه ، 90 درجه میباشد. در اوایل رشد گیاه ، بعضی از یاختههای موجود در بخش بالایی ساقه اصلی ذرت از شاخههای فرعی متمایز میشود. در انتهای این شاخهها ، عضوی به نام بلال بوجود میآید که در واقع ، گل ماده گیاه ذرت است.
این شاخهها ، میان گرههای بسیار کوتاهی دارند که از این گرهها ، برگهای تغییر شکل یافتهای بوجود میآید که هم دیگر و بلال را میپوشانند. بیرونیترین این برگها ، برگی است کامل که غلاف ، زبانک ، گوشواره و پهنک دارد. اما برگهای زیرین غیر کاملند. موقعی که ارتفاع ساقه ذرت به 80 تا 120 سانتیمتر رسید، کلالههای ابریشم مانند یا کاکل ذرت به تعداد دانههای ذرت موجود در بلال ، نمایان میشوند.
تولید کنندههای ذرت
کشورهای عمده تولید کننده ذرت عبارتند از: ایالات متحده آمریکا ، یوگسلاوی و رومانی ، روسیه ، ایتالیا ، چین، آرژانتین، برزیل و آفریقای جنوبی. در ایران ذرت معمولا در گرگان و گنبد ، خوزستان ، کرمانشاه ، خراسان ، گیلان و مازندران تولید میگردد.
تاریخچه
بررسیهای باستان شناسی و فسیل شناسی گیاهی نشان میدهد که ذرت پیوسته به صورت یک گیاه زراعی عمده تقریبا از 5000 سال پیش در مکزیک و گواتمالا کشت میشده است و بومی این نواحی است. کریستف کلمب ، یک سال پس از ورود به قاره آمریکا ، بذر ذرت را با خود به اسپانیا برد. این گیاه از آنجا به پرتقال و سپس به دیگر کشورهای اروپایی برده شد. از آنجا هم این گیاه به قاره آفریقا و تعدادی از کشورهای آسیایی از جمله هند و ژاپن راه یافت.
انواع ذرت
ذرت نژادهای متعددی دارد که این گروهها بر اساس ویژگیهای بافت آندوسپرم دانه طبقه بندی میشوند.
ذرت بو داده
نوعی ذرت است که احتمالا بر اثر موتاسیون بوجود آمده است. پریکارپ آن نازک است که این صفت برای تولید ذرت شیرین با پوست لطیف مناسب است. در این نوع ذرت ، لایه ضخیمی از آندوسپرم سخت ، آندوسپرم نشاستهای را دربرگرفته است. دانههای نشاسته آندوسپرم این نوع ذرت نسبت به انواع دیگر ، رطوبت بیشتری دارند که در موقع حرارت دادن، منبسط شده و تبدیل به بخار میشوند.
بخار آب حاصل شده درون دانه نمیتواند به راحتی از لایه بیرونی سخت آندوسپرم خارج شود. به ناچار فشار زیادی به این لایه وارد میآورد و دانه را منفجر نموده و دانه پف میکند. این ذرت معمولا برای تهیه پاپ کورن یا ذرت بو داده مورد استفاده قرار میگیرد. بهترین میزان رطوبت دانه برای حداکثر پف کردن، 14 درصد میباشد.
ذرت سخت
تمام آندوسپرم این نوع ذرت که در مرکز دانه میباشد، با لایه سختی از آندوسپرم پوشیده شده است. دانههای رسیده این نوع ذرت ، گرد ، صاف و کهربایی هستند. دوره رشد آنها هم 80 تا 100 روز است. بلالهای بدست آمده باریک بوده و تقریبا 8 ردیف دانه دارد.
ذرت دندان اسبی
این نوع ذرت دارای مخلوطی از نشاسته نرم و سخت میباشد. آن قسمت آندوسپرم که دارای نشاسته سخت است، پروتئین بیشتری دارد. این نوع ذرت معمولا در نواحی ذرت خیز ایالات متحده آمریکا به عمل میآید. بلال ذرت دندان اسبی نسبتا بزرگ بوده و 16 تا 30 ردیف دانه دارد. از خصوصیات ظاهری دانه آن، میتوان به وجود نقطهای فرو رفته در طرف تاج دانه اشاره نمود که به دلیل خشک شدن آندوسپرم نشاستهای بوجود میآید.
ذرت نرم یا آردی
بخش عمده آندوسپرم این نوع ذرت ، نشاسته است. تنها لایه نازکی از آندوسپرم سخت این نشاسته را دربرمیگیرد. دانههای آن بر خلاف نوع دندان اسبی فرو رفتگی ندارد. این ذرت تنها به دلیل این که به رنگهای مختلف یافت میشود، برای تزئین غذاها از آن استفاده میشود. همچنین چون آندوسپرم آن نرم است، میتوان به همان شکل و بدون خرد و له کردن آن ، در تغذیه دام بکار برده شود.
ذرت شیرین
آندوسپرم این نوع ذرت شیرین ، قندی و براق بوده و برخلاف آندوسپرم ذرتهای دیگر ، حالت نشاستهای ندارد. پریکارپ آن نازک بوده که در زمان رسیدن دانه ، مواد قندی آن به نشاسته و سپس به دکسترین تبدیل میشود. ذرت شیرین انواع مختلفی دارد که به صورت تازه ، کنسرو شده و منجمد مورد مصرف قرار میگیرد.
ذرت مومی
آندوسپرم ذرت مومی ظاهرا به شکل موم میباشد. برخلاف ذرتهای دیگر که نشاسته آندوسپرم آنها 71 تا 72 درصد آمیلوپکتین و 28 تا 29 درصد آمیلوز دارد، آندوسپرم ذرت مومی تماما از آمیلوپکتین تشکیل شده که حالت چسبندهای دارد و نرم هم هست. ذرت مومی جدا از مصرف خوراکی ، در صنایع چسبسازی هم استفاده میشود.
شرایط لازم برای رشد گیاه
دما
ذرت با وجود آن که یک گیاه گرمسیری است، نمیتواند آب و هوای بسیار گرم را تحمل کند. مناسبترین محیط برای کشت آن ، ناحیهای است که دمای آن دست کم به مدت 3 تا 4 ماه متوالی ، 21 تا 32 درجه سانتیگراد باشد. در صورتی که دمای اواسط تابستان ناحیه کشت ذرت ، کمتر از 18 درجه سانتیگراد باشد یا میانگین دمای تابستان کمتر از 13 درجه باشد، میزان رشد گیاه کاهش یافته و در صورت طولانی شدن کاهش دما ، کشت ذرت غیر ممکن خواهد بود.
آب
معمولا در مراحل گسترش برگها ، گرده افشانی و تشکیل دانه که اغلب در ماههای گرم تابستان صورت میپذیرد، گیاه ذرت به آب زیادی نیاز دارد. تعداد دفعات آبیاری تحت تأثیر خاک ، آب و هوا و... قرار دارد که بین 2 تا 15 بار متغیر است. زراعت ذرت در مناطقی که بارندگی سالیانه 250 تا 2500 میلیمتر دارند به صورت دیم هم امکانپذیر میباشد.
خاک
میزان عملکرد ذرت در خاکهای عمیق ، حاصلخیز و زهکشی شده با بافت متوسط بیشتر است. ذرت نسبت به کمبود اکسیژن که ناشی از رطوبت یا وجود لایههای فشرده زیرزمینی میباشد، بسیار حساس است. همچنین ذرت قادر است در خاکهایی با PH حدود 5.5 تا 8 هم رشد نماید. البته PH مناسب برای آن 6 میباشد. PH کمتر از 6 معمولا میزان جذب کلسیم را در گیاه کاهش میدهد.
زمان کاشت ذرت
بهترین زمان برای کاشت ذرت ، زمانی است که دمای خاک در عمق 7 تا 8 سانتیمتری به مدت 3 تا 4 روز متوالی در فصل بهار ، تقریبا 13 درجه سانتیگراد باشد. اگر کشاورز قادر نیست که دمای خاک را اندازهگیری نماید، میتواند از میانگین دمای هوا در ساعت 7 صبح و 12 ظهر استفاده کند.
کود
کود شیمیایی ، بویژه کودهایی که دارای نیتروژن ، فسفر، پتاسیم، کلسیم، منیزیم و گوگرد و همچنین ، منگنز، آهن، روی و مولیبدن باشند برای بالا بردن سطح تولید ذرت بسیار ضروری هستند. مناسبترین زمان برای استفاده از کود ، در بهار و قبل از بذرکاری یا هم زمان با آن است. بهترین روش برای ریختن کود ، به فاصله 5 سانتی از بذر و به عمق 3 تا 5 سانتی متری از بذر میباشد.
آفات و بیماریهای ذرت
از بیماریهای مهم گیاه ذرت ، سیاهک ذرت و سیاهک خوشه ذرت میباشد. عامل این دو بیماری به ترتیب ، U.maydis و Sphacelotheca reiliana میباشند. بیماری سیاهک معمولی ، برگها و ساقهها را آلوده نموده و سیاهک بلال ذرت ، گل ماده یا بلال را آلوده نموده و تودهای از اسپورهای قارچ را جانشین بافتهای سالم گیاه میکند. بیماریهای عمده برگ ذرت عبارتند از: زنگ برگ و پژمردگی باکتریایی ، پوسیدگی دانه ، خوشه ، ریشه و ساقه هم از بیماریهای قارچی هستند که بندرت دیده میشوند. ضدعفونی نمودن بذر ذرت با تیزام ، ارتوساید و ارازان در کنترل این بیماریها مفیدند.
برداشت محصول
برای برداشت محصول ، رطوبت دانه باید بین 20 تا 25 درصد باشد. اگر قرار باشد که محصول برداشت شده را مورد مصرف دام قرار دهند، ذرت را میتوان با رطوبت 25 تا 28 درصد هم برداشت کرد. امروزه برداشت بلال را با دستگاههای بلال چین و همچنین جدا نمودن دانههای ذرت را از بلال ، با دستگاه دانه کن انجام میدهند. دستگاه بلال چین ، بلالها را از بوته میچیند و غلافهای آن را جدا میکند. دستگاه دانه کن هم دانههای ذرت را از بلال جدا مینماید. برای انبار کردن دانههای بلال ، باید رطوبت آنها را به 17 درصد رساند. دمای انبار نباید بیش از 10 درجه سانتیگراد باشد. البته دانههای با رطوبت بیش از 17 درصد را میتوان در دماهای بالاتر هم نگهداری نمود.
موارد استفاده از ذرت
دانه ذرت به رنگ سفید ، زرد یا مخلوطی از این دو یافت میشود. خوراکهایی که با ذرت سفید تهیه میشوند، معمولا مرغوبترند. دانه ذرت دارای سه بخش آندوسپرم ، گیاهک و پریکارپ است. پروتئین موجود در دانه به عوامل مختلفی از جمله محیط ، نوع گیاه و شرایط کشت و زراعت بستگی دارد و بین 8 تا 15 درصد متغیر است. پروتئین عمده ذرت زئین میباشد نقش مهمی در تغذیه انسان ایفا می کنند.
میزان روغن دانه ذرت ، 4 درصد بوده که بیشتر در گیاهک قرار دارد. از گیاه ذرت استفادههای مختلفی میکنند. از آسیاب نمودن دانه ذرت ، آرد ذرت تهیه می کنند که خود در تهیه غذاهای مختلف بکار میرود. از ساقه و برگهای ذرت در صنایع کاغذ و مقوا سازی و همچنین تولید کاغذ دیواری استفاده میکنند. از آرد ذرت در تولید چسب ، صابون و از نشاسته آن در صنایع رنگرزی ، داروسازی ، مرکب سازی و پلاستیک سازی استفاده مینمایند.
علفهای هرز ذرت
مرغ(بندواش(
Cynodon dactylon
Bermudagrass(stargrass)
گياهي است چندساله و چهار كربنه كه توسط بذر،ريزوم و استولون تكثير مي يابد.از خانواده poaceae كه به ان پنجه مرغي و بندواش نيز مي گويند.علفي با ريزومهاي فلسي كه قسمتهاي هوايي از ريزوم ها خارج ميشود و زمين را مثل چمن ميپوشاند اين گياه در برابر لگدكوبيها مقاومت زيادي دارد.ارتفاع ساقه هاي مرغ بين10تا30سانتيمتر و طول برگهاي ان به10تا20سانتيمتر ميرسد.برگها به رنگ خاكستري تا سبز مايل به ابي هستند.
گل آذين پنجه مرغي سنبله چندتايي به طول14تا30سانتيمتر است كه حاوي4تا6سنبله متصل به هم بوده كه در قسمت انتهايي ساقه قرار دارند.بذر اين گياه بسيار كوچك است.در هر كيلوگرم بذر مرغ بين3ميليون تا4ميليون و گاهي تا بيش از اين مقدار دانه وجود دارد قدرت جوانه زدن بذر مرغ غالباً ضعيف است.
پنجه مرغي در خاكهاي حاصلخيز با عمق كافي به سرعت رشد ميكند.در هر دو نوع خاك رسي سنگین و ماسه اي سبك رشد كرده و در برابر غرقاب شدن تا حدودي مقاوم است ولي در زمينهايي كه سطح اب در آنها بالا باشد رشد خوبي ندارد.اين گياه به اسيد، قليا،و تا حدودي به نمك سازگاري دارد. در زمينهايي كه كود داده ميشود واكنش ان در برابر كود بسيار مساعد است.
مرغ از علفهاي هرز مزارع: برنج،گندم، توتون، چغندرقند، پنبه، بادام زميني،ذرت، يونجه، جو، مراتع و باغهاي سبزي و صيفي است.
روشهاي کنترل:
براي مبارزه با اين علف هرز ميتوان از علفكشهايي مانند دالاپون به ميزان 4تا 8كيلوگرم در هكتار و اميترول به ميزان2.5كيلوگرم در هكتار و گليفوزيت به ميزان2.3تا4.5كيلوگرم در هكتار استفاده كرد. روش مبارزه در مزارع مختلف متفاوت است
اقتصاد اسلامی
علم اقتصاد عبارت است از دانشی که به تخصیص بهینه کالاها و فراوردهها میپردازد. به عبارت دیگر ، علمی است که به تفسیر حیات اقتصادی و پدیدههای آن و ارتباطشان با عوامل کلّی آنها اهتمام می ورزد.
نظام اقتصاد اسلامی عبارت است از مجموعه قواعد کلّی ارائه شده در اسلام در زمینه روش تنظیم حیات اقتصادی و حلّ مشکلات اقتصادی ، در راستای تامین عدالت اجتماعی.
مسألهٔ اقتصاد، به عنوان یکی از مهمترین مسائل زندگی بشری، مطرح است، و اسلام نیز نگرش خاصی به آن دارد.
نگاه ویژهٔ اسلام
اقتصاد اسلامی بر خلاف اقتصاد غربی، بر قناعت و پرهیز از مصرفگرایی تأکید دارد. اقتصاد غربی نیازهای انسان را نامحدود و منابع و امکانات جهان را محدود میداند؛ در حالی که در اسلام منابع و امکانات نامحدود معرفی شدهاند. وَإِن تَعُدُّواْ نِعْمَتَ اللّهِ لاَ تُحْصُوهَا
قرآن،سوره ابراهیم، آیه ۳۴
و اگر بخواهید نعمتهای خداوند را در شمار بیاورید نمیتوانید نعمتهای خداوند را به حد و حصری محدود کنید
|
اسلام مسألهٔ اقتصاد را(بر اساس اصالت انسان) به عنوان جزئی از مجموعه قوانین خود که تنها میتواند قسمتی از نواحی حیات انسانی را تنظیم کند، مورد توجه قرار داده و حل مشکلات اقتصادی را در اصلاح مبانی عقیدتی و اخلاقی مردم میداند |
وَ لَوْ أَنَّ أَهْلَ الْقُرى آمَنُوا وَ اتَّقَوْا لَفَتَحْنا عَلَيْهِمْ بَرَكاتٍ مِنَ السَّماءِ وَ الأَْرْضِ
قرآن مجید، آیهٔ ۹۶
و اگر مردم ایمان آورده و پرهیزگار بودند، ما ابواب بركات زمین و آسمان را بر آنها گشوده بودیم...
اسلام اقتصاد را در جهت اهداف عالیهٔ بشر دانسته و بر این اساس، نگرش سوسیالیستی و یا سرمایهداری که اقتصاد را مبنا قرار میدهند، رد میکند.
جایگاه اقتصاد اسلامی
در تفسیر و تحلیل رشد و توسعه اقتصادی ، پیروان مکاتب اقتصادی کلاسیک ، نئو کلاسیک ، مکتب کینز و امثال آنها ؛ دیدگاههای خاص خود را در جهت طراحی نظام اقتصادی مطرح نموده اند.
به عنوان نمونه ، کلاسیکها در مورد بازار آزاد ، نئو کلاسیکها در زمینه کارآفرینی ، پیروان مکتب شیکاگو در زمینه نقش آموزش ، طرفداران فیزیوکراسی در خصوص کشاورزی و مکتب سوداگران (مرکانتلیسم) در زمینه مازاد صادرات ؛ نظرهای ارزشمندی را مطرح نموده اند.
آیین اسلام نیز ، در جهت تنظیم روابط اقتصادی بین انسانها که برای تأمین نیازهای اقتصادی (یا رفع مشکلات اقتصادی) تدوین گردیده و با عدالت اجتماعی مرتبط میباشد ، قواعدی کلی ارائه نموده که در ابواب اقتصادی فقه اسلامی به تفصیل بیان گردیده است.
اصول روش اسلام در توزیع ثروت
اصول روش اسلام در توزيع ثروت ، در درجه اول ، صیانت از عدالت اجتماعی ، حفظ حقوق مردم ، تقسیم مالکیت به سه بخش (ملی ، خصوصی و دولتی) است. در این راستا ، به تحريم راههای نامشروع مانند ربا میپردازد و حل مشکلات اقتصادی را در چهارچوب قوانینی مانند استفاده از عقود اسلامی میداند. برخی از این قوانین در ابواب مضاربه ، مزارعه ، مساقات، بیع ، اجاره، جعاله و امثال آن بیان گردیده است.
اقتصاد اسلامی در ایران
در سال ۱۹۷۸، روح الله خمینی ادعا کرد که شرکتهای چندملیتی اقتصاد ایران را در دست گرفتهاندو محمدرضاشاه به طور برنامهریزی شدهای کشاورزی را به نابودی میکشد تا به خارجیان فعال در حوزه کشاورزی تجاری کمک کند؛ وی اعلام کرد که هدف اصلیش را در اقتصاد کم شدن وابستگی ایران به غرب قرار خواهد داد؛ و این که اقتصاد بر اساس تعالیم اسلام پایهریزی خواهد شد.[نیازمند منبع]
سلف یا سلف صالح (عربی: السلف الصالح) به معنی پیشگامان درستکار و عادل است.در اصطلاح خاص اسلامی، سلف به سه گروه زیر اطلاق میشود.
سلف در نظر اهل سنت
اقتدا به سلف صالح و پیروی از ایشان از اصول اعتقادی اهل تسنن است با این تفاوت که اهل سنت اعتقاد به عدل صحابه دارند اما تابعین را عادل نمیدانند. اقتدا به سلف صالح در نظر اهل سنت به معنی پیروی کورکورانه نیست. از ابوحامد محمد غزالی نقل شدهاست که: «آن چه از پیامبر صلی الله علیه و سلم به ما رسید آن را به سر و دیده گرفتیم، آن چه از صحابه رسید بعضی گرفتیم و بعضی نهادیم، و اما آن چه از تابعین رسید، بدانید که ایشان مردانند و ما مردانیم»
سلف در احادیث
تنها حدیثی که به اندیشه سلف صالح اشاره دارد از صحیح بخاری است که ابوسعید خذری از قول محمد پیامبر اسلام نقل کردهاست که: «بهترین مردم اینها هستند در عصر من زندگی میکنند، و پس از ایشان کسانی که پس از اینان میآیند، و آن گاه کسانی که پس از آن خواهند آمد»
سلف در قرآن
واژه سلف دو بار در قرآن ذکر شدهاست.
«اما هنگامی که ما را به خشم آوردند، از آنها انتقام گرفتیم و همه را غرق کردیم.و آنها را پیشگامان(اسلاف) در عذاب و عبرتی برای دیگران قرار دادیم.»(زخرف، ۵۵ و ۵۶)
«به آنها که کافر شدند بگو: ?چنانچه از مخالفت باز ایستند، (و ایمان آورند،) گذشته آنها بخشوده خواهد شد; و اگر به اعمال سابق بازگردند، سنت خداوند در گذشتگان(اسلاف)، درباره آنها جاری میشود (;و حکم نابودی آنان صادر میگردد).» (انفال، ۳۷ و ۳۸)
هیچ یک از این دو آیه با تعبیر اهل سنت از سلف تطابق و هماهنگی ندارد.